

Весничка Phylloscopus trochilus – излюбленный объект орнитологических исследований. Связано это с обычностью вида на пространстве Северной Евразии, лёгкостью обнаружения гнёзд, простотой учёта гнездящихся пар, многочисленностью на путях пролёта, возможностью содержания этих птиц в неволе. К сожалению, нет монографического описания экологии этого вида в северо-западной Сибири, которую населяет северный подвид Phylloscopus trochilus acredula (Linnaeus, 1758), при наличии большого числа статей по отдельным сторонам его экологии, а также небольших очерков в фаунистических сводках. Северная весничка неоднократно была объектом сравнительных исследований, чаще всего в сопоставлении с таловкой Phylloscopus borealis или группой населяющих кустарники воробьиных Нижнего Приобья и Южного Ямала. Здесь следует выделить исследования М.Г. Головатина, В.К. Рябицева и С.В. Шутова. Последний в 1988 году защитил кандидатскую диссертацию «Популяционная экология пеночки-веснички и пеночки-таловки в Южной Субарктике», материал для которой собирал в полевых отрядах В.К. Рябицева (стационары Хадыта и Кожим) и моём (стационары Собь и Октябрьский). Основная часть материала для этой работы собрана С.В. Шутовым на Приполярном Урале в долине реки Кожим в период самостоятельного исследования и на стационаре Октябрьский при нашей совместной работе. Диссертационная работа не была опубликована в виде монографии, в увидевших свет статьях представлены лишь некоторые разделы, в том числе и в соавторстве с руководителями полевых отрядов (Рыжановский, Шутов 1980; Рябицев, Шутов, Ольшванг 1980; Шутов, Рябицев, Рыжановский 1984). В начале 1990-х годов С.В. Шутов ушёл из науки. Автор настоящего сообщения продолжал изучать экологию воробьиных птиц Нижнего Приобья, в том числе и экологию веснички. Имеющиеся в моём распоряжении материалы по экологии веснички частично являются общими с материалом С.В. Шутова, что позволяет их объединить в общий блок большого очерка. Текст очерка написан мной, но материалы из рукописи диссертации цитируются весьма широко. В очерке приводятся также материалы из опубликованных работ М.Г. Головатина, С.П. Пасхального, В.К. Рябицева и других коллег по совместной работе в полевых отрядах. Они иллюстрируют и дополняют наши сведения, и цитируются в общем порядке.
Материал и методы
Основной район сбора материала – окрестности города Лабытнанги (Приобская лесотундра, стационары Харп и Октябрьский), среднее течение реки Собь в районе железнодорожной станции Красный Камень (стационар Собь), лесной остров в нижнем течении реки Хадытаяха (стационар Хадыта), а также разные районы полуострова Ямал.
В моём распоряжении имеется гнездовой материал (свыше 200 гнездовых карточек), данные по отловам птиц паутинными сетями на стационарах Собь, Харп, Октябрьский, данные по отловам большой ловушкой на стационаре Октябрьский; результаты картирования пар птиц на территории стационара Харп в 1971-1984, 2002-2005 и 2012 годах на площади 180-380 га (вместе с озёрами) или 117-300 га (без озёр) в разные годы; на пробной площадке стационара Октябрьский площадью 22 га в 1978-1983 годах, 38 га в 2002-2004 годах; на участке площадью 20 га в кустарниковой тундре плакора (водораздел) стационара Октябрьский в 1978 и 1980 годах; результаты маршрутных учётов птиц в долине Соби в 1977, 2002-2004 годах, результаты картирования пар в разных частях Ямала в 1974-1983 и 1999 годах; результаты вскрытия птиц, погибших в сетях; материалы экспериментов по передержке в неволе весничек, выкормленных с 10-дневного возраста, до сентября при разных фотопериодических условиях, передержанных при 10-часовом дне в лаборатории в зимнее время.
При определении дат начала кладки использовали сведения по гнёздам, найденным в период кладки и применяли расчёт исходя из сроков вылупления первого птенца. Во втором случае дату начала кладки вычисляли по средней продолжительности насиживания. Продолжительность насиживания определяли по гнёздам, найденным с неполной кладкой, а продолжительность выкармливания птенцов – по датам вылупления первого птенца и ухода из гнезда последнего слётка. В течение одного полевого сезона птенцов и взрослых птиц от гнёзд метили комбинациями цветных пластиковых колец и контролировали их дальнейшее перемещение по участку, в другие годы птенцов метили стандартными кольцами.
Отлов птиц паутинными сетями мы проводили в долине Соби с середины июля в 1976 году; всё лето, с начала мая по октябрь, в 1977 году, весь июнь и начало июля в 1978 году. В долине Оби, в окрестностях посёлка Октябрьский, отлов птиц начат в 1978 году и с перерывами продолжается по настоящее время. Общая площадь территории наблюдений и поиска гнезд превышает 1 км2, но с 1990 года все работы сосредоточились на участке, прилегающем к посёлку. Интенсивные полевые наблюдения здесь проводили в 1978-1983 годах, экспериментальные – в 1985-1992 годах; отдельные стороны экологии продолжали изучать вплоть до настоящего времени. В первый период исследований с конца мая вдоль южной границы участка выставлялась линия паутинных сетей длиной 80-100 м. С 1983 года в полосе высоких кустарников вдоль берега протоки с конца мая до конца июня устанавливалась ориентированная на юг большая ловушка рыбачинского типа (длина 80 м, ширина входа 25 м, высота 8 м). С середины июля птиц ловили по участку площадью 8 га в 1978 году, 6 га – в 1979-1982, выставляя ежедневно от 80 до 230 м паутинных сетей. Сначала отлавливались местные птицы, пойманные и окольцованные у гнёзд, слётки с кольцами, затем начинали ловиться кочующие и мигрирующие особи. С 1979 до 1982 года на северный край участка вдоль берега протоки была поставлена ориентированная входом на север рыбачинская ловушка. Сетями и ловушками в отдельные дни августа ловили до 300 птиц. За годы работы в послегнездовое время поймано и окольцовано свыше 7 тыс. птиц 15 видов, в том числе свыше 1000 весничек. Поскольку отлов и мечение птиц проводились постоянно, на участке наблюдений и отлова накапливалось много окольцованных птиц, которые попадались повторно. Весьма высокая частота повторных регистраций позволила применить метод «мечение – повторный отлов» для определения динамики численности в разные дни послегнездового периода. Расчёты проводились по формуле Бейли: N = M (n+1/m+1), где N – численность популяции; M – число меченых животных в популяции; m – число повторно пойманных животных; n – общая численность выборки (Коли 1979). Часть птиц отлавливалась повторно в последующие после мечения годы.
Значительная часть исследований была посвящена линьке. Описывали состояние оперения (Носков, Рымкевич 1977) молодых и взрослых птиц, пойманных в природе; 40 птиц выкормили с 8-9-дневного возраста и передержали их при разных фотопериодических условиях до окончания линьки. Часть содержавшихся в летний период птиц (n = 5) осенью перевезли в лабораторию, где зимой они жили при фотопериоде 10С:14Т до середины марта, затем при растущем дне. К середине мая длина дня в помещении достигла 24 ч. В конце июня птиц выпускали.
При обработке материалов применялись общепринятые методы статистики с использованием программы Statistika v. 6.0 (StatSoft Ink.,1984-2003). Для определения статистической значимости различий применяли t-критерий Стьюдента.
Пространственное и биотопическое распределение и плотность гнездования
В настоящее время северная граница гнездовой части ареала пеночки-веснички на полуострове Ямал, вероятно, проходит по пятнам пойменных ивняков центральной части полуострова, близ 71° с.ш. При этом граница постепенно сдвигается в северном направлении. В 1974 году веснички в небольшом числе встречены на реке Сеяха Мутная, одна, вероятно залётная, особь встречена на побережье в устье реки Харасавей. Однако в 1975 году недалеко от Мутной, в среднем течении реки Ясавейяха (северный приток реки Сеяха-Зелёная, 70°10ґ с.ш. 71° 30ґ в.д.) в течение месяца стационарных работ в пойме и на плакоре весничек не видели и не слышали. Не было их и в районе посёлка Сеяха (70° с.ш. 72° в.д.). В 2006 году веснички оказались обычными в ивняках вокруг и в самом этом посёлке (Рябицев и др. 2006). В 1988-1990 годах веснички найдены достаточно обычными в районе посёлка Бованенково (70°30ґ с.ш. 67°30ґ в.д.). Южнее, в кустарниковых тундрах полуострова Ямал, в лесотундре и северной тайге Нижнего Приобья, в предгорьях и горах Полярного Урала рассматриваемый вид регулярно встречается и гнездится.
Для веснички характерен очень широкий спектр местообитаний, который сужается близ северной границы ареала. В подзоне типичных тундр веснички встречаются в ивняках травяно-моховых пойм и водоразделов и ивняково-моховых тундрах водоразделов (Мониторинг…1997). Они отсутствуют в кустарничковых тундрах водоразделов, на травяно-моховых болотах, пойменных лугах. В подзоне кустарниковых тундр весничка – обитатель достаточно высоких ивняков и ерников водоразделов и пойм. В лесотундре занимает все виды лесных и кустарниковых биотопов, особенно в поймах рек и по берегам ручьёв, озёрных котловин, в которых лесная и кустарниковая растительность наиболее развита. На плакоре гнездится неохотно, преимущественно при наличии высоких кустарников и в лиственничном редколесье, где ивняки и ерники повыше. В северной тайге сплошных темнохвойных лесов весничка избегает, предпочитая разреженные смешанные и лиственные леса. На Полярном Урале (Головатин, Пасхальный 2005) эта пеночка придерживается мест с достаточно большими группами кустарников: в основном у подножья гор, по берегам рек и ручьёв. За пределами распространения сплошных зарослей весничка селится редко.
В низкорослом ивняке и ернике она встречалась только в верховьях ручьёв, на пределе распространения высоких кустарников. Максимальная высота, на которой М.Г. Головатин и С.П. Пасхальный (2005) встречали весничек – 500 м н.у.м. Это были отдельные пары, поселившиеся в истоках ручьёв; большинство же весничек не поднимается выше 300-400 м н.у.м.
Не избегает весничка и антропогенных ландшафтов Заполярья. По данным С.П. Пасхального (2004), в городах Лабытнанги и Салехарде эти птицы встречались в самых разных местах – в небольших парках, палисадниках у домов, на огородах, кладбищах, пустырях, в долинах ручьёв с кустарниково-древесной растительностью, на участках леса в черте города. Гнездились веснички и на территории производственных объектов при наличии там подходящих для них мест.
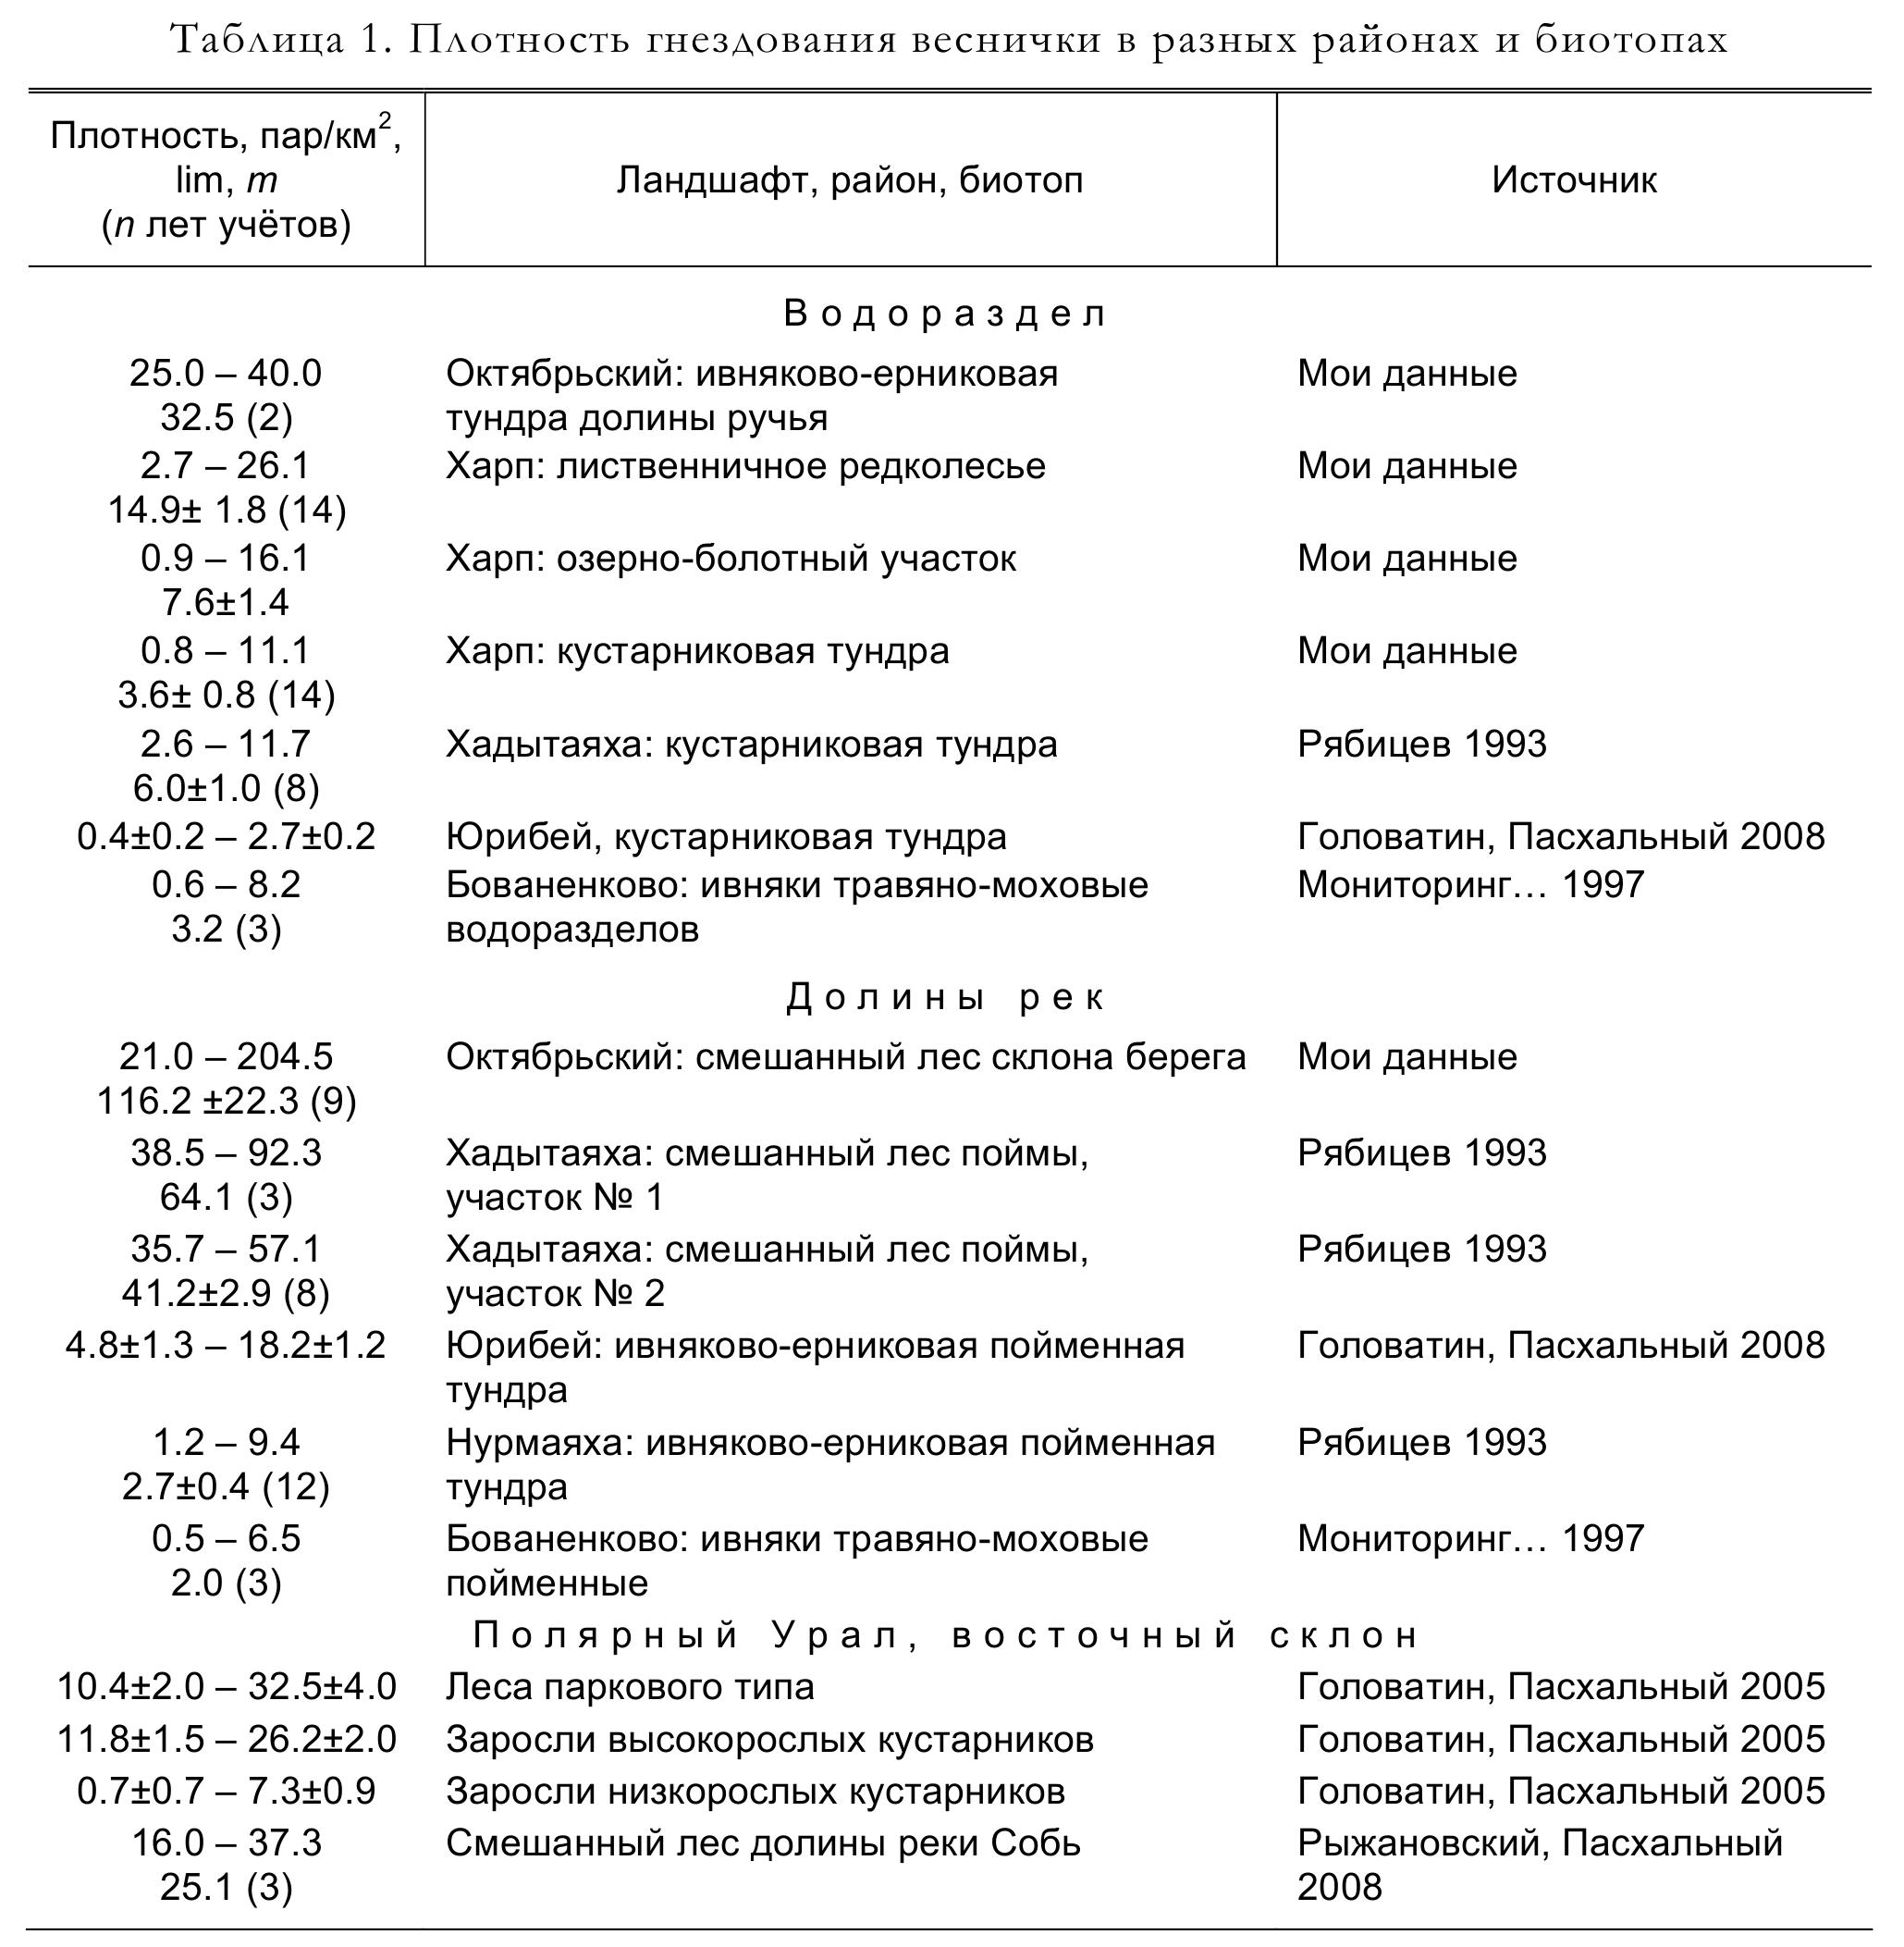
Показателем биотопического предпочтения вида в гнездовой период является плотность гнездования (табл. 1) и доля птиц данного вида в общей фауне биотопа. В оптимальных биотопах Нижнего Приобья весничка лидирует по обилию, иногда занимая первое место по числу гнёзд воробьиных на учётных площадках. На севере подзоны кустарниковых тундр она становится малочисленной (6-8-е места), а в мохово-лишайниковых тундрах редка. Дополнительные данные по плотности населения веснички следующие: средняя плотность гнездования в подзоне редкостойных лесов левобережья Нижней Оби, в нижнем течение реки Войкар за 15 лет – 11.0±1.1 пар/км2, локальная плотность 42.7±10.7 пар/км2. В долине верхнего течения реки Лонготъеган (50 км к северо-западу от стационара Октябрьский) локальная плотность достигала 63.4±11.2 пар/км2 (Головатин, Пасхальный 2005). Для северной тайги Обь-Пуровского междуречья, т.е. тайги правобережья Оби, Л.Г. Вартапетов (1998) приводит оценку плотности в 4-44 ос./км2. В среднем течении реки Щучьей веснички гнездились с плотностью 20 и 30 пар/км2 в ольшаниках и лиственничниках (Кучерук и др. 1975). В водораздельной тундре среднего течения Порсяхи в 1976 году веснички гнездились с плотностью 3.3 пар/км2, в закустареной пойме реки – 14.5 пар/км2 (Данилов и др. 1984).
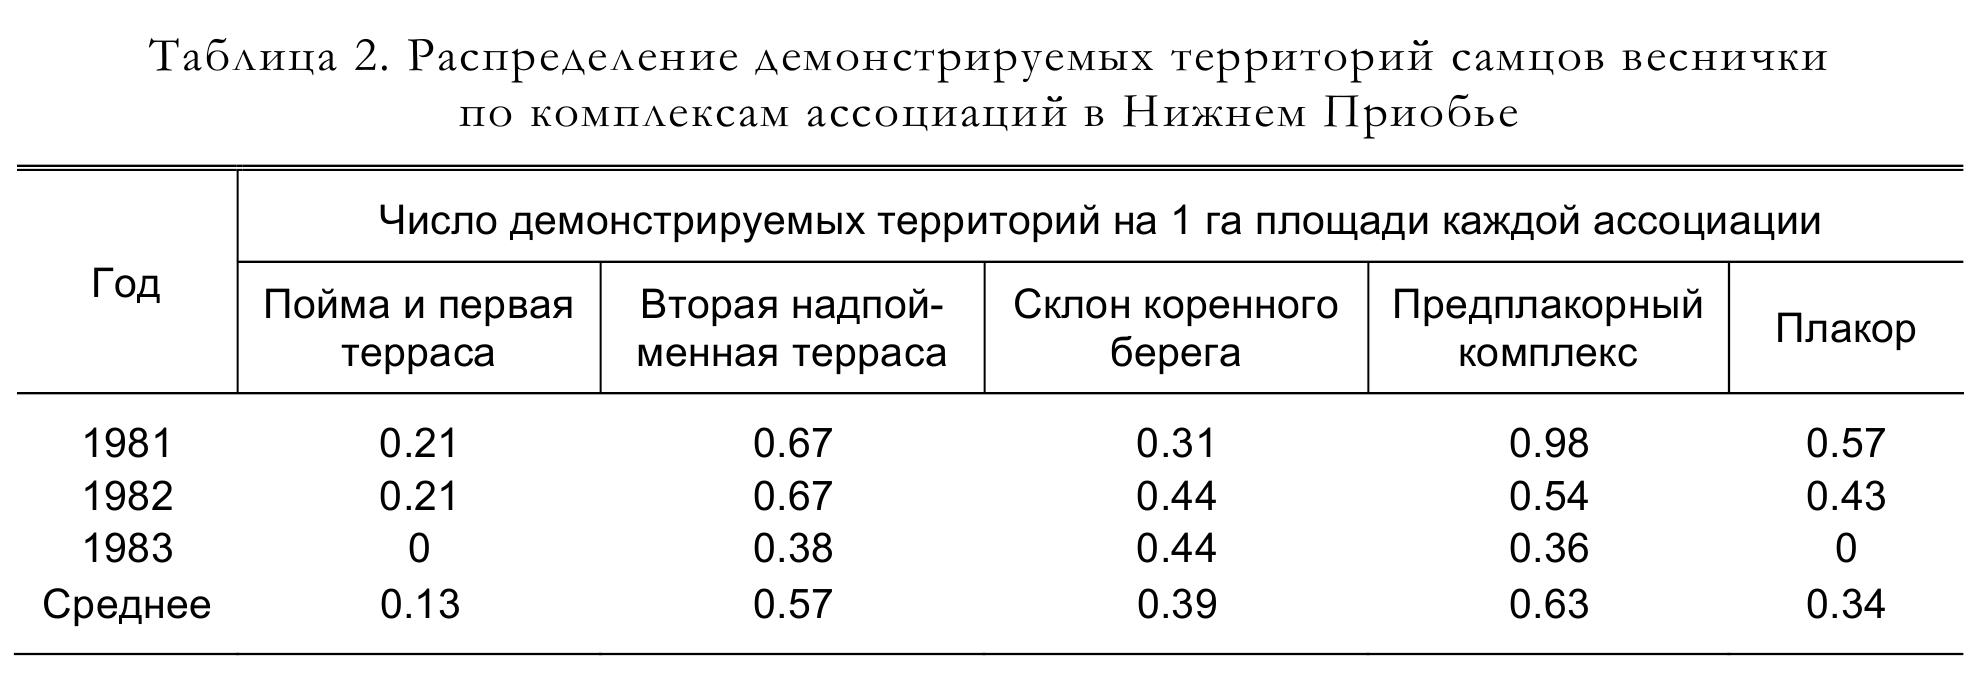
С.В. Шутов (1988) более детально рассмотрел распределение рекламируемых самцами территорий веснички по опытному участку стационара Октябрьский. На участке выделяется пойма и первая надпойменная терраса, занятые ивняком, осоковым подболоченным и осоково-злаковым лугом; вторая надпойменная терраса занятая лесной растительностью: елово-березовым злаково-осоковым подболоченным лесом и берёзовым с единичными елями моховым лесом с зарослями кустарников и небольшим лугом. Склон коренного берега занимали елово-берёзовые леса и ольшаники. Верхнюю часть склона занимал комплекс предплакорных ассоциаций – ерниковые моховые поляны с куртинами ольхи, берёзы, пятнами лиственниц. Часть учётной территории, расположенная на плакоре, была занята лиственничным редколесьем с карликовой берёзкой и багульником. По материалам этого автора, на контрольной территории участки самцов с наибольшей частотой встречались на второй надпойменной террасе и в предплакорном комплексе ассоциаций, реже на первой надпойменной террасе и участках затопляемой весной поймы. Занятость территории на склоне коренного берега и на плакоре была примерно одинакова (табл. 2).
Таким образом, наибольшим предпочтением у весничек пользуются участки многоярусного разреженного полянами леса и редколесья с подростом. Птицы избегают сплошных ивняков, особенно затопляемых в многоводные годы.
Поскольку демонстрируемая самцом территория не всегда совпадала с гнездовым участком (Рябицев 1977), С.В. Шутов (1988) проанализировал также встречаемость гнёзд в выделенных комплексах растительных ассоциаций на стационаре Октябрьский (табл. 3).

В целом распределение гнёзд по этой территории соответствует распределению самцов. И тех и других больше всего было в предплакорном комплексе, меньше всего – в пойме и на плакоре. Но на плакоре, в связи с удалённостью от лагеря, исследователи меньше времени искали гнёзда. В пойме и на первой надпойменной террасе гнёзда искали активно, но их действительно было меньше.
Избирательность весничек при занятии территории на участках кустарниковых тундр водораздела в нашем районе также имеет место. На стационаре Харп значительный по площади участок – более 100 га – занят ерниковой тундрой с кустарниками высотой 50-70 см и пятнами осоковых болот; участок тундры плакора в районе стационара Октябрьский частично занят ерниками высотой до 1 м с полосой более высоких, до 1.5 м, ив по берегам ручья, пересекающего участок. Как следует из таблицы 1, разница в плотности гнездования значительна: 0.8-11.1 пар/км2 среди низких кустарников и 25-40 пар/км2 среди высоких кустарников. Более того, В.К.Рябицев (1977) на основании опытов с «вакуум-территориями», где удалялись живущие там птицы, пришёл к выводу о существовании лесных и тундровых рас весничек. В пойменном лесу Хадытаяхи плотность гнездовых пар веснички была всегда выше, чем в прилегающей тундре, но освобождение участка в лесу путём отстрела поющих самцов не вызывало вселения на «вакуум-площадку» птиц из тундры. Происходило это в период формирования населения, когда птицы весьма охотно расширяют участки, но они всегда делают это либо в пределах леса, либо в пределах тундры. Освободившиеся участки быстро занимались новыми птицами. Поэтому многолетняя динамика плотности гнездования в разных местообитаниях может быть не синхронной.
Зональные различия плотности гнездования
Э.В. Рогачёва (1988) для Средней Сибири указывает, что весничка повсеместно редка в южной и средней тайге, повсеместно обычна в северной приенисейской тайге, многочисленна в лесотундре, встречалась повсеместно в кустарниковых тундрах, но доминировала только в куртинах карликовой берёзки. При этом максимальная встречаемость не превышала 56 ос./км2 в лесотундре и 31 ос./км2 в кустарниковых тундрах, что существенно ниже локальной плотности гнездования в пойменных лесах Нижней Оби и не выше локальной плотности гнездования в кустарниковых тундрах Южного Ямала.
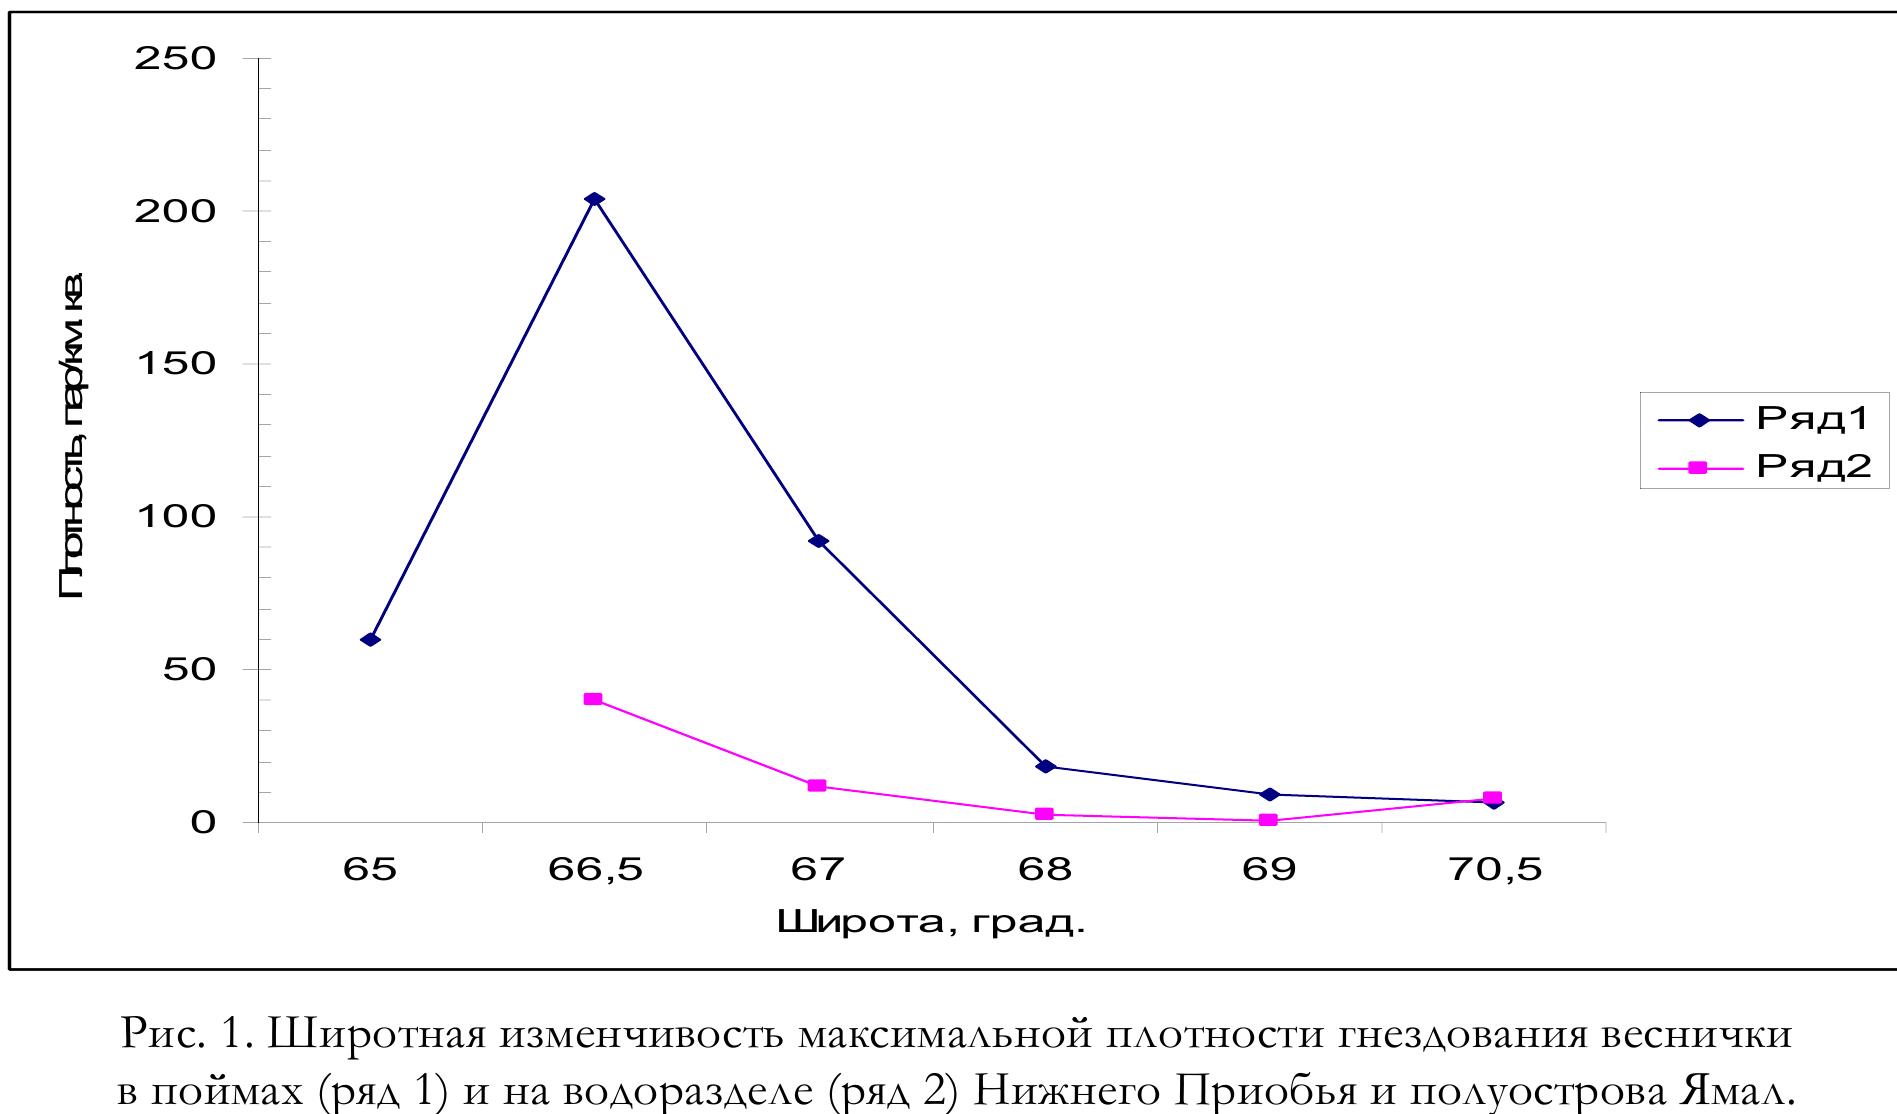
Э.В. Рогачёва отмечает также, что в средней тайге гнездование веснички приурочено к незональным биотопам, имеющим более северный характер. Наблюдается снижение плотности гнездования к югу и северу от лесотундры. По левому берегу Нижней Оби, как на водоразделе, так и в поймах максимальная плотность пар весничек также наблюдается в лесотундре со снижением её к северу и, вероятно, к югу, т.к. в долине реки Войкар (Головатин, Пасхальный 2005) максимальная локальная плотность вдвое ниже, чем на учётной площадке стационара Октябрьский, но близка к плотности в пойменном лесу среднего течения реки Хадытаяхи (северные пределы пойменных лесов). В поймах тундровых рек подзоны кустарниковых тундр, несмотря на произрастание высоких, выше 1.5 м, кустов, плотность гнездования веснички также существенно ниже, чем в подобных местообитаниях в лесотундре (участок плакора стационара Октябрьский). Следующее снижение плотности в поймах наблюдается в подзоне типичных тундр Ямала с последующим далее к северу выпадением веснички из фауны (рис. 1)
Динамика плотности гнездования
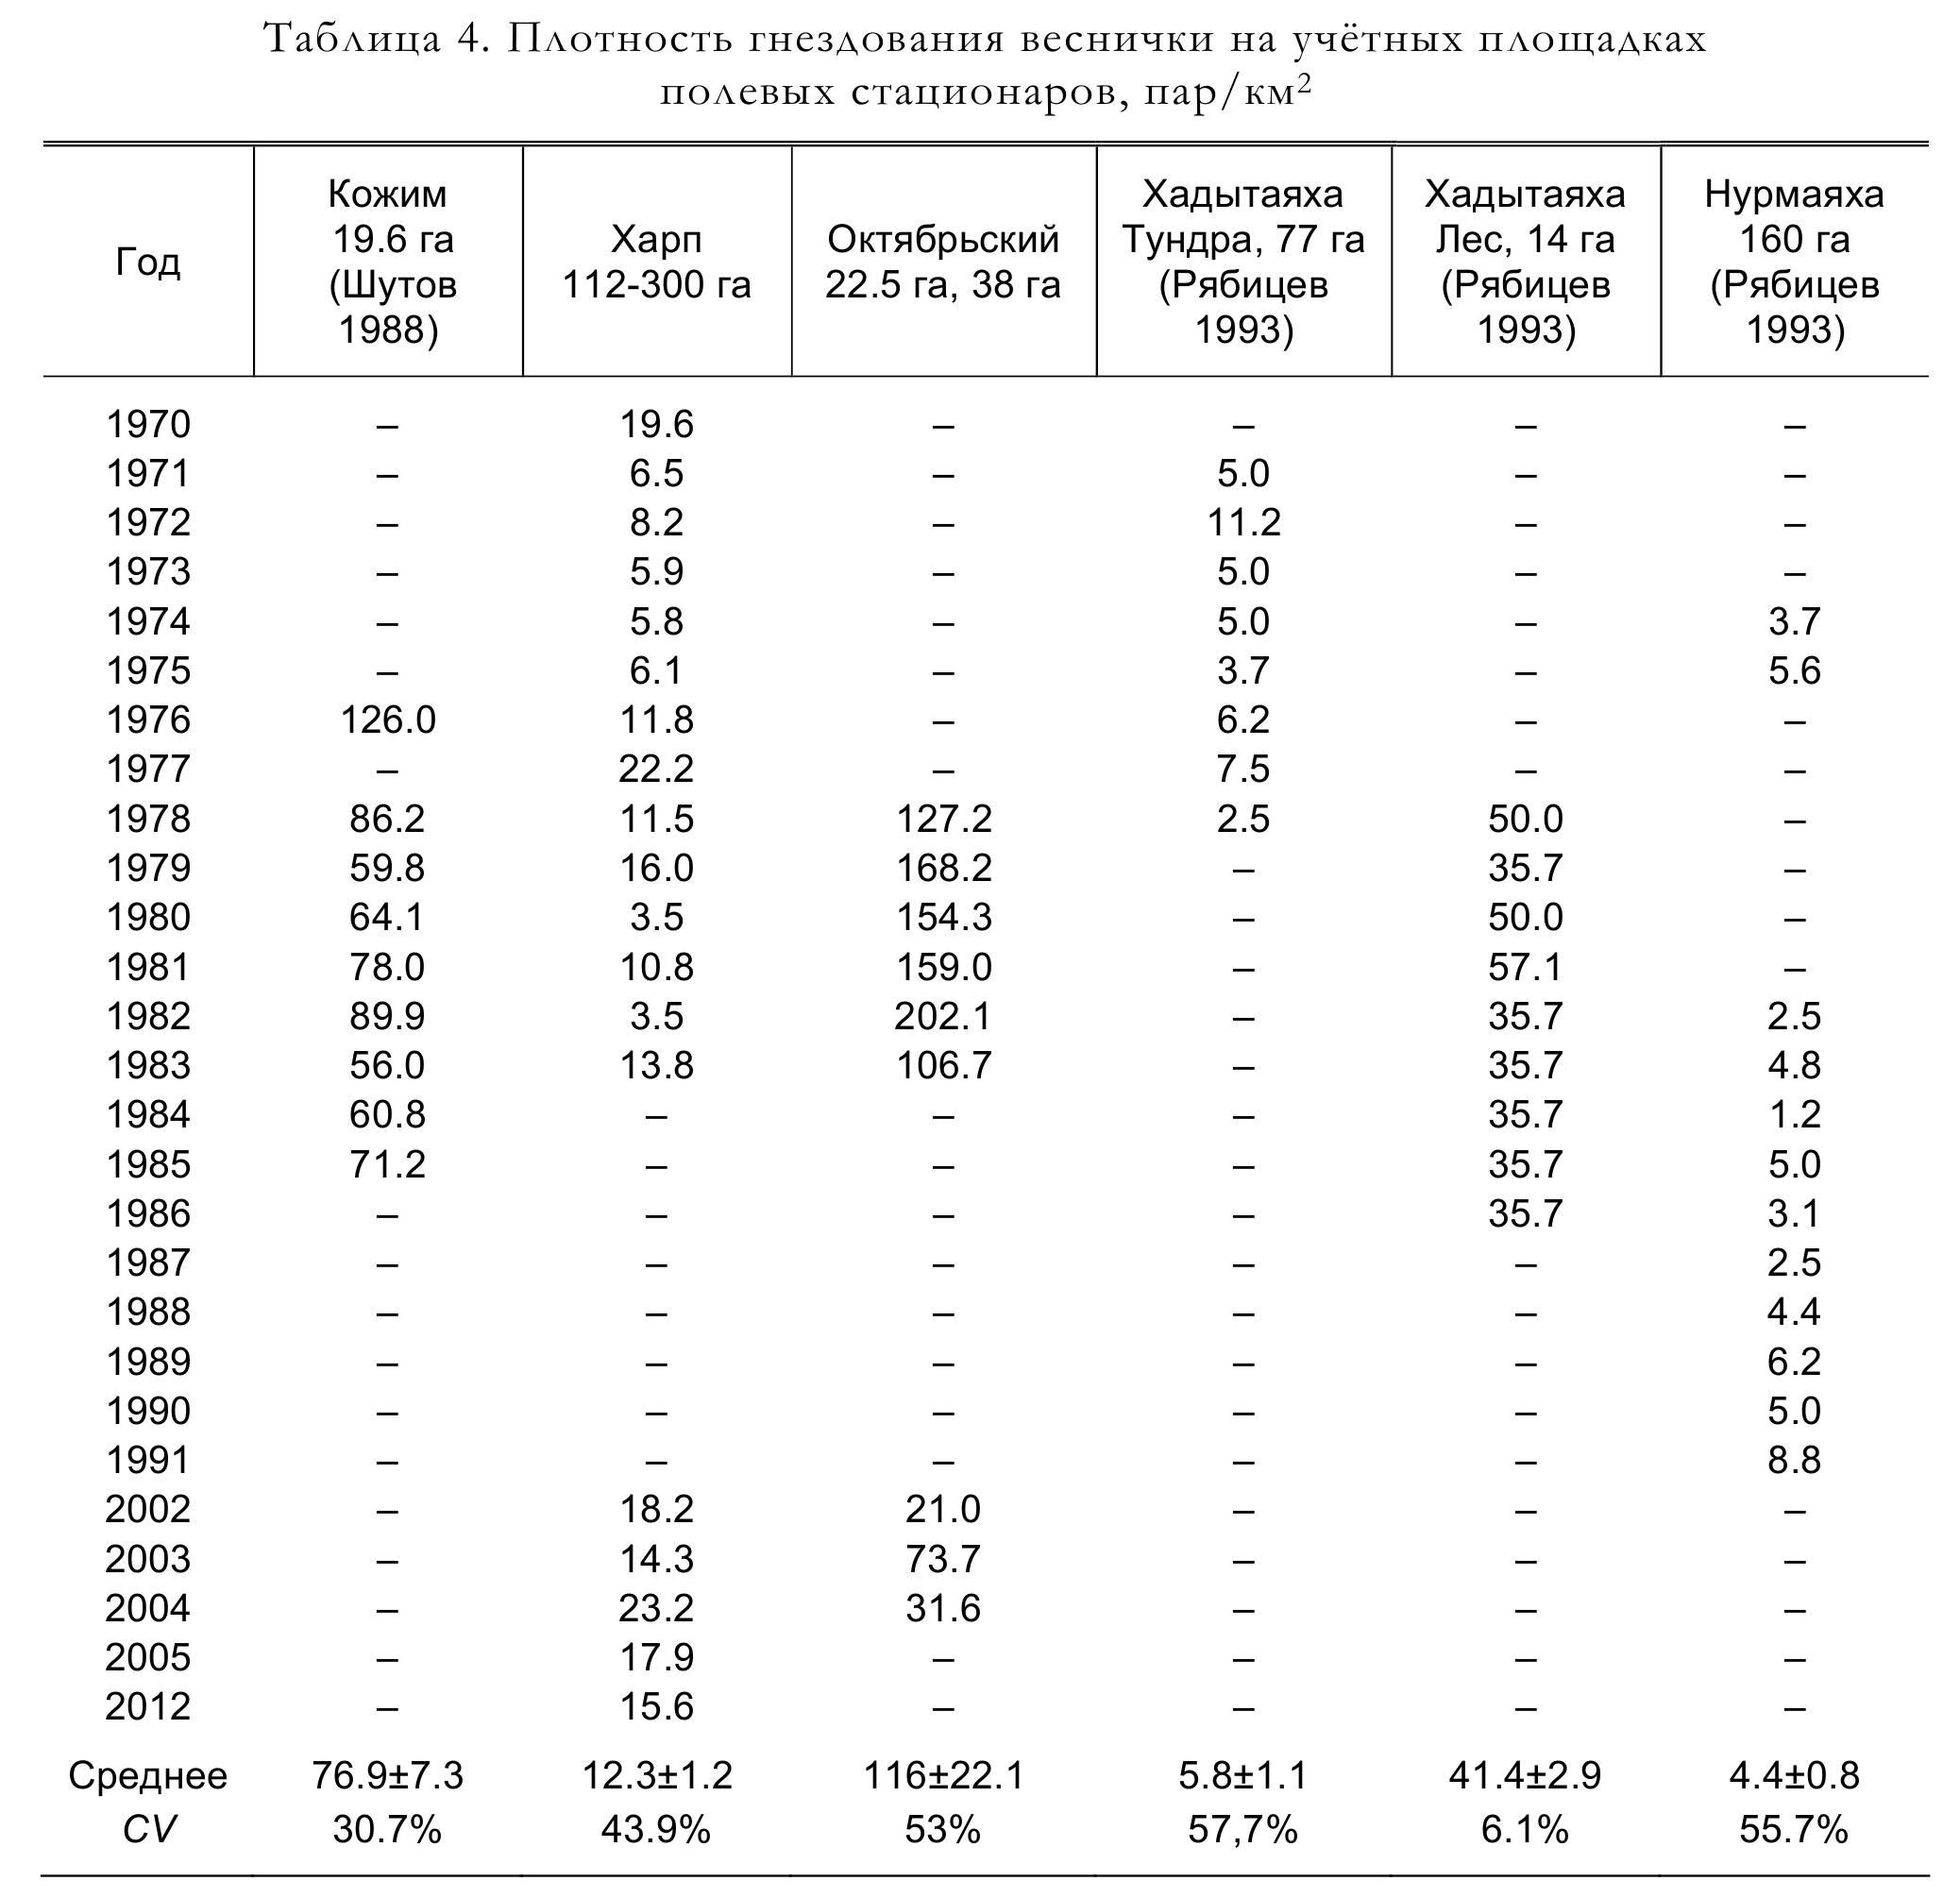
Ежегодные учёты птиц на орнитологических стационарах в лесотундре и южной тундре, проводившиеся орнитологами нашего института, позволяют рассмотреть динамику плотности гнездования веснички (табл. 4) не только на стационарах Харп и Октябрьский, но и в среднем течении Хадытаяхи (стационар Ласточкин берег – Рябицев 1993) и Нурмаяхи (Данилов и др. 1984; Рябицев 1993) и на западном склоне Приполярного Урала (стационар Кожим – Шутов 1988). Для всех стационаров характерны значительные колебания числа пар, гнездившихся на пробных площадках. Для стационара Октябрьский разница между минимальной и максимальной плотностью была 10-кратной, для других – 2-7-кратной и только в пойменном лесу Хадытаяхи плотность была практически постоянной, но, несомненно, при продолжении учётов были бы годы с как с более низкой плотностью, так и с более высокой. В частности, В.К. Рябицев (1993) приводит данные по другому участку в пойменном лесу Хадытаяхи, где в 1971 году учтено 92.3 пар/км2. Плотности ниже 36 пар/км2 он не зарегистрировал, но в лесу стационара Октябрьский в течение 6 лет (1978-1983) плотность была даже выше, чем в долине Хадытаяхи, а в следующий период учётов (2002-2004 годы) она снизилась до минимального для леса уровня – 21 пара/км2 в 2002 году.
Численность популяции определяется соотношением плодовитости и смертности (Зимин 1988) при определяющем значении изменений в уровне смертности молодых птиц (Данилов 1969). Выживаемость слётков, особенно на севере, зависит от обилия корма в послегнездовой период и от их физиологического состояния в момент ухода из гнезда (Головатин 2011). М.Г. Головатин (2011) на основе множественного регрессионного анализа выявил связь динамики численности весничек (точнее, плотности гнездования) на площадке «Войкар» в подзоне предлесотундровых редкостойных лесов с климатическими условиями предыдущего года, определяющего выживаемость молодых. Он не обнаружил достоверной связи численности (плотности гнездования) с перераспределением птиц в начале сезона, хотя число работ, посвящённых перераспределению птиц под влиянием ухудшения погоды в период прилёта в Субарктику велико (Данилов 1957; 1966; Леонович, Успенский 1965; Данилов и др. 1984; Рябицев 1993). Предполагается, что при ранней и тёплой весне птицы дружно летят к северной границе ареала, где плотность гнездования возрастает; поздняя весна может остановить птиц ближе к южной границе ареала. Доказательством этому служит изменение плотности гнездования на разных широтах гнездовой части ареала. С.В. Шутов (Шутов и др. 1988) при сопоставлении плотности гнездования веснички на стационаре Кожим, на стационаре Октябрьский и в долине Хадытаяхи (лес) за 1979-1983 годы (табл. 4) пришёл к выводу, что такой механизм работает. В годы уменьшения плотности пар весничек на Приполярном Урале наблюдалось достоверное увеличение плотности на стационаре Октябрьский (r = -0.85, P ≤ 0.05) и в долине Хадытаяхи (r = -0.93, P ≤ 0.05).
Отмечается также связь сроков массового прилёта с плотностью: при поздней весне 1979 года возрастала плотность гнездования на Приполярном Урале, при ранней весне плотность гнездования возросла в Нижнем Приобье и в долине Хадытаяхи. При этом С.В. Шутов (1988) указывает, что в перераспределении участвовали в основном первогодки, птицы старше года стремились вернуться в район предыдущего гнездования. Однако стационары Кожим и Октябрьский разделены Уральским хребтом, влияющим на местный климат, к тому же веснички, гнездящиеся на этих стационарах, могут принадлежать к разным популяциям. Веснички Нижнего Приобья и Южного Ямала, скорее всего, относятся к одной популяции, погодные условия на всём пространстве также близки, поэтому широтные перераспределения, если они имеют место, должны быть более наглядными.
На рисунках 2 и 3 представлены кривые изменения плотности гнездования на наших стационарах. На учётной площадке стационара Харп в 1971-1978 годах изменение плотности гнездования было синхронным с изменением плотности на тундровой площадке Хадытаяха при слабой недостоверной положительной корреляционной связи: r = 0.23. Колебания плотности гнездования весничек в лесу долины Хадытаяхи в 1978-1983 годах не коррелировали с изменением плотности в долине Оби: r = 0.14. Повышение плотности гнездования веснички на стационаре Харп сопровождалось снижением плотности на участке стационара Октябрьский (r = -0.79, Р ≤ 0.05). При этом корреляция между стационарами Кожим и Октябрьский была столь же высокой (r = -0.82, Р ≤ 0.05), как и при вычислениях С.В. Шутова.


Достаточно высокой, но с обратным знаком, была корреляция между площадками Кожим и Харп (r = 0.68, Р ≤ 0.1), при слабой недостоверной связи (r = 0.4) между площадками Кожим и Хадытаяха-лес. Асинхронность колебаний плотности между стационарами Харп и Октябрьский может быть следствием принадлежности тундровых и лесных весничек разным расам, как это предполагает В.К. Рябицев (1993). Сильная, с разными знаками, корреляция плотности птиц на стационаре Кожим, со стационарами Октябрьский и Харп, с учётом значительной удалённости западного склона Приполярного Урала от Нижнего Приобья, может быть следствием широтного перераспределения птиц, но скорее всего – это независимые изменения плотности.

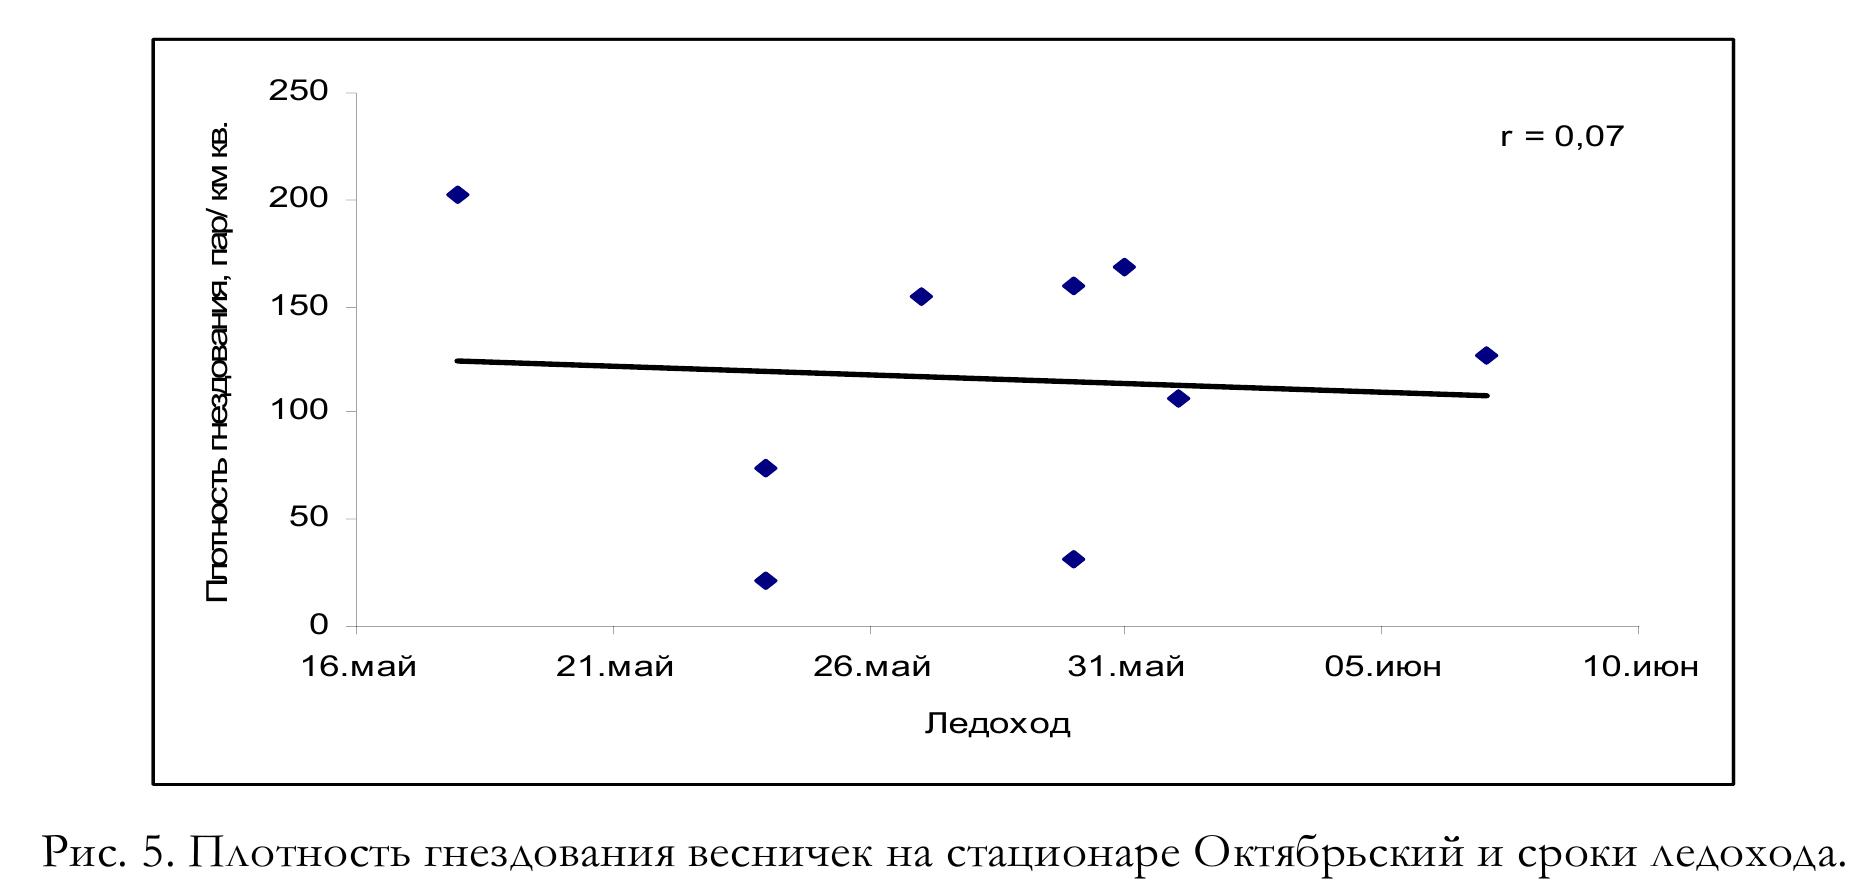
Причиной перераспределения птиц в высоких широтах, как уже говорилось, обычно считают сроки наступления весны. Если для населения весничек Нижнего Приобья характер весны имеет значение, должна быть связь между плотностью гнездования и сроками начала определённой фазы весны. Как будет показано ниже, прилёт весничек начинается с приходом фронта тёплого воздуха. В Нижнем Приобье тепло приносит полая вода, до прохода льда по Оби устойчивого потепления в долине Нижней Оби не бывает и все улучшения погоды до ледохода кратковременны. Поэтому дата ледохода у города Салехарда является хорошим фенологическим показателем. Вычисление корреляции между датой ледохода и плотностью гнездования на стационарах зависимости плотности от сроков ледохода не выявило (рис. 4, 5). При этом максимально высокая плотность гнездования – 22.2 пар/км2 в 1977 году на стационаре Харп и 20.2 пар/км2 в 1982 году на стационаре Октябрьский – была в ранневесенние годы, но поздневесенние годы (1972 и 1978) отличались средней плотностью гнездования. В 1982 году на стационаре Харп число весничек было минимальным, в то время как в долине Оби – максимальным. М.Г. Головатин (2011) для несколько более южного участка, расположенного в нижнем течении реки Войкар, выявил положительную связь динамики численности (плотности гнездования) весничек с численностью (плотностью) их в предыдущем году и климатическими условиями предыдущего лета. Автор объясняет это возвратом взрослых птиц в район прошлого гнездования и повышенным выживанием молодых птиц в тёплое лето. Проведение расчётов для весничек стационаров Харп и Октябрьский также выявило положительную корреляцию плотности гнездования текущего года с плотностью гнездования в предшествующий год на стационаре Харп (r = 0.28, не значимо) и на стационаре Октябрьский (r = 0.61, Р ≤ 0.1). Корреляцию между климатическими условиями предыдущего лета и плотностью весничек в текущем году не считали, но, вероятно, результаты также подтвердят расчёты М.Г. Головатина, т.к. для веснички характерен не только весьма высокий уровень верности гнездовой территории, но определённая верность району вылупления и послегнездовых кочёвок. Таким образом, можно согласиться с М.Г. Головатиным, что динамика плотности гнездования северной веснички находится больше под влиянием условий предыдущего лета, чем определяется перераспределением птиц в начале текущего сезона. Однако существование слабой корреляционной связи плотности гнездования и условий весны допускает возможность влияния и этого фактора.
Работа выполнена в рамках проекта № 12-П-4-1043 программы Президиума РАН.
Литература
• Вартапетов Л.Г. 1998. Птицы северной тайги Западно-Сибирской равнины. Новосибирск: 1-327.
• Головатин М.Г. 2011. Принципы организации населения птиц северных широт: динамический аспект. Автореф. дис. … докт. биол. наук. Екатеринбург: 1-40.
• Головатин М.Г., Пасхальный С.П. 2005. Птицы Полярного Урала. Екатеринбург: 1-564.
• Данилов Н.Н. 1966. Пути приспособлений наземных позвоночных животных к условиям существования в Субарктике Т. 2. Птицы. Свердловск: 1-140.
• Данилов Н.Н., Рыжановский В.Н., Рябицев В.К. 1984. Птицы Ямала. М.: 1-334.
• Зимин В.Б. 1988. Экология воробьиных птиц Северо-запада СССР. Л.: 1-184.
• Коли Г. 1979. Анализ популяций позвоночных. М.: 1-362.
• Кучерук В.В., Ковалевский Ю.С., Сурбанос А.Г. 1975. Изменения населения и фауны птиц Южного Ямала за последние 100 лет // Бюл. МОИП. Отд. биол. 80, 1: 52-64.
• Леонович В.В., Успенский С.М. 1965. Особенности климата и жизнь птиц в Арктике // Экология позвоночных животных Крайнего Севера. Свердловск: 141-148.
• Мониторинг биоты полуострова Ямал в связи с развитием объектов добычи и транспорта газа. 1997 / Л.Н.Добринский, ред. Екатеринбург: 1-191.
• Носков Г.А., Рымкевич Т.А. 1977. Методика изучения внутривидовой изменчивости линьки у птиц // Методика исследования продуктивности и структуры видов в пределах их ареалов. Вильнюс. 1: 37-48.
• Пасхальный С.П. 2004. Птицы антропогенных местообитаний полуострова Ямал и прилегающих территорий. Екатеринбург: 1-220.
• Рыжановский В.Н 2001. Гнездовой сезон как часть годового цикла воробьиных Субарктики // Гнездовая жизнь птиц. Пермь: 3-22.
• Рыжановский В.Н. 1997. Экология послегнездового периода жизни воробьиных птиц Субарктики. Екатеринбург: 1-288.
• Рыжановский В.Н., Алексеева Н.С., Шутов С.В. 1977. Некоторые особенности послебрачной линьки воробьиных птиц Полярного Урала // Информ. материалы Ин-та экол. раст. и животн. Свердловск: 59.
• Рыжановский В.Н., Пасхальный С.П. 2007. Динамика населения птиц Нижнего Приобья в связи с глобальным потеплением климата // Науч. вестн. 6 (50) 2: 58-74.
• Рыжановский В.Н., Рябицев В.К., Шутов С.В. 1983. Плотность гнездования птиц в тундрах полуострова Ямал // Экология 4: 37-42.
• Рыжановский В.Н., Шутов С.В. 1980. Особенности линьки пеночки-таловки в Нижнем Приобье // Информ. материалы Ин-та экол. раст. и животн. Свердловск: 78-79.
• Рябицев В.К. 1977. Продуктивность и этологические механизмы регуляции плотности гнездования и численности птиц на Южном Ямале // Биоценотическая роль животных в лесотундре Ямала. Свердловск: 104-133.
• Рябицев В.К. 1993. Территориальные отношения и динамика сообществ птиц в Субарктике. Екатеринбург: 1-296
• Рябицев В.К. 2001. Птицы Урала, Приуралья, и Западной Сибири: справочник-определитель. Екатеринбург: 1-605.
• Рябицев В.К.. Шутов С.В. Ольшванг В.Н. 1980. Анализ конкурентных отношений пеночки-веснички и пеночки-таловки (с обсуждением специфики экосистем) // Экология 1: 83-92.
• Шутов С.В. 1988. Популяционная экология пеночки-веснички и пеночки-таловки в Южной Субарктике. Автореф. дис. … канд. биол. наук. Свердловск: 1-14.
• Шутов С.В., Рябицев В.К., Рыжановский В.Н. 1984. Ежегодное перераспределение пеночки-таловки и пеночки-веснички в северной части ареала // Продуктивность видов в пределах ареала. Свердловск, 2: 89-90
Вячеслав Николаевич Рыжановский. Институт экологии растений и животных УрО РАН, ул. 8 марта, д. 202, Екатеринбург, 620219, Россия. E-mail: ryzhanovsky@ecology.uran.ru
Источник
Русский орнитологический журнал 2013, Экспресс-выпуск 835. стр. 31-44.