

Обобщены данные по биотопическому распределению, численности, фенологии жизненного цикла и гнездованию вида, собранные за последние 45 лет, преимущественно в лесостепной части Сумской области. В настоящее время чечевица здесь немногочисленна, распространена спорадически. Прилет отмечен 8.05 – 21.05, в среднем 14.05 ± 0,7 дня (n = 22). Пролет слабо выражен. Отлет в июле. Первые яйца кладок появляются между 22.05 и 17.06, в 81,0 % случаев – с 22.05 по 10.06 (n = 21). Первые птенцы в гнездах появляются в 1-й декаде июня, последние – в начале июля. Гнезда на кустарниках и подросте на высоте 0,20–1,50 м от земли, в среднем – 0,86 ± 0,08 м (n = 22). В полных кладках 4–6 яиц, в среднем 4,56 ± 0,15 (n = 18). Размеры яиц, мм: 19,2–22,4 Ч 13,5–15,6, в среднем 20,58 ± 0,14 Ч 14,57 ± 0,09 (n = 30). Общая успешность размножения 46,4 %, продуктивность – 1,9 ± 0,8 слетков на пару. Гибель потомства 53,6 %, в том числе на фазах яйцекладки – 7,2 %, насиживания – 46,4 %. Неоплодотворенные яйца и гибель птенцов не отмечались, эмбриональная смертность – 7,1 %. Отмечены случай паразитирования кукушки, хищничество лесной сони, гибель кладки во время ливня, исчезновение отдельных яиц.
Обыкновенная чечевица (Carpodacus erythrinus) в Украине, несмотря на довольно широкое распространение – гнездится в лесной и лесостепной зонах, в северной части Степи и на юге Крыма (Цвелых, 1993; Фесенко, Бо котей, 2002), в биологическом плане изучена весьма поверхностно. И если в Правобережной Украине это можно как-то связать с низкой численностью и определенной спо радичностью распространения (Страутман, 1963; Бо котей, 1991; Новак, Савчук, 1992; Хлебешко, Цицюра, 1993; Носаченко, 2008), то уж совсем непонятно такое положение дел для Левобережья Днепра, в том числе в северо-восточном регионе страны, где чечевица довольно обычна. Например, в современном экологофаунистическом обзоре вьюрковых птиц Харьковщины (Кривицкий, Чаплыгина, 2010) почему-то отсутствуют какие-либо сведения об этом виде. Не попала чечевица и в сводку по редким и малоизученным птицам северной подзоны Степной зоны Левобережной Украины (Гудина, 2009). Немного сведений и по фенологии миграций; наверное, с этим связано ошибочное утверждение о прилете чечевиц в Украину в период с конца марта (!) до начала мая (Тайкова, 2003). К тому же практически все начальные даты прилета установлены на севере и северо-востоке Украины (Сомов, 1897; Аверин, 1910; Грищенко, 1987, 2008; Белик, Москаленко, 1992; Марисова и др., 1992; Книш, 2006; Гаврись та ін., 2007; Матвиенко, 2009).
Специальные работы по биологии размножения обыкновенной чечевицы в Украине отсутствуют, незначителен и список работ, где есть хотя бы минимальные сведения о гнездовой жизни этой птицы. Следует упомянуть описания 4 гнезд чечевицы в Полтавской области (Дебелий, 2004; Шаповал, 2014), нескольких случаев гнездования вида в Сумской области (Книш, 1998; Матвиенко, 2009), находки 1 гнезда в Изюмском уезде бывшей Харьковской губернии (Аверин, 1910), 4 гнезд в Серебрянском лесничестве Луганской области (Панченко, 2007) и еще одного гнезда в окрестностях Львова (Бокотей, 1991). В региональных сводках материалы по гнездованию вида прак тически отсутствуют (Сомов, 1897; Гавриленко, 1929, 1970; Афанасьев и др., 1992; Носаченко, 2008; Нанкинов, 2011; Баник и др., 2013 и др.). Между тем в других частях своего обширного ареала чечевица в экологическом отношении изучена довольно полно, особенно ее номинативный подвид (Птушенко, Иноземцев, 1968; Нанкинов, 1974; Па евский, 1981, 2008; Мальчевский, Пукинский, 1983; Сотников, 2008; Payevsky, 2008; Чернышов, 2011 и др.) и подвид C. e. ferghanensis, распространенный в пределах Тянь-Шаня (Ковшарь, 1979; Иовченко, 1986 и др.).
Цель настоящей работы – пополнить и детализировать сведения по биологии обыкновенной чечевицы в украинской части ее ареала и привлечь внимание отечественных орнитологов к этому виду.
Материал и методика
Основу обработанных материалов составляют данные по биотопическому распределению, плотности населения, фенологии явлений жизненного цикла и гнездованию обыкновенной чечевицы, собранные за последние 45 лет в Сумской области, главным образом в ее лесостепной (южной) части. Количество птиц учитывали по общепринятым методикам на нескольких постоянных и временних площадках площадью от 1,2 до 450 га с картированием гнезд и гнездовых участков, реже – на маршрутно-учетных линиях в характерних для вида биотопах. Длина учетных полос 2–6 км, ширина – 150 м. Каждого поющего самца принимали за гнездящуюся пару. В период гнездования обследованы и находились под постоянным или частичным наблюдением 22 гнезда: 20 – в Сумском районе (сюда включен и случай гнездования, описанный М.Е. Матвиенко (2009)), 2 – в Шосткинском районе. Сроки начала яйцекладки установлены в 21 случае, в том числе по откладке яиц (11 гнезд), степени их насиженности (6) и срокам вылупления птенцов (4). Этих данных вполне достаточно, чтобы реконструировать фенологию явления с точностью до декады. Определена величина 18 полных кладок, промерено 30 яиц. Результаты гнездования и причины гибели яиц и птенцов прослежены в 7 случаях.
При анализе фенологических явлений календарные даты переводились в непрерывный ряд. Все даты из цитированных работ Н.Н. Сомова (1897) и В.Г. Аверина (1910) приведены по новому стилю.
Результаты и обсуждение
Размещение и численность. В пределах Северо-Восточной Украины распространение обыкновенной чечевицы приурочено к речным долинам, в первую очередь к заболоченым поймам с кус тарниковой растительностью. Гидрографическая сеть Сумской области сравнительно густая, на каждые 5 км2 площади приходится 1 км протяжения рек (Демченко, 1947). Естественно, не везде имеются подходящие биотопы, также много мест, на первый взгляд вполне благоприятных, где за многие годы эта птица ни разу не наблюдалась. На неравномерность распространения и немногочисленность чечевицы на всей территории Сумской области указывает М.Е. Матвиенко (2009). Подобная картина наблюдается и в некоторых других частях ареала. Так, например, в западной Финляндии чечевицы занимают всего лишь 35 % площади пригодных биотопов (Stjernberg, 1979). Селится чечевица отдельными парами, расстояние между которыми в оптимальных биотопах не менее 200–300 м (Матвиенко, 2009; наши данные).
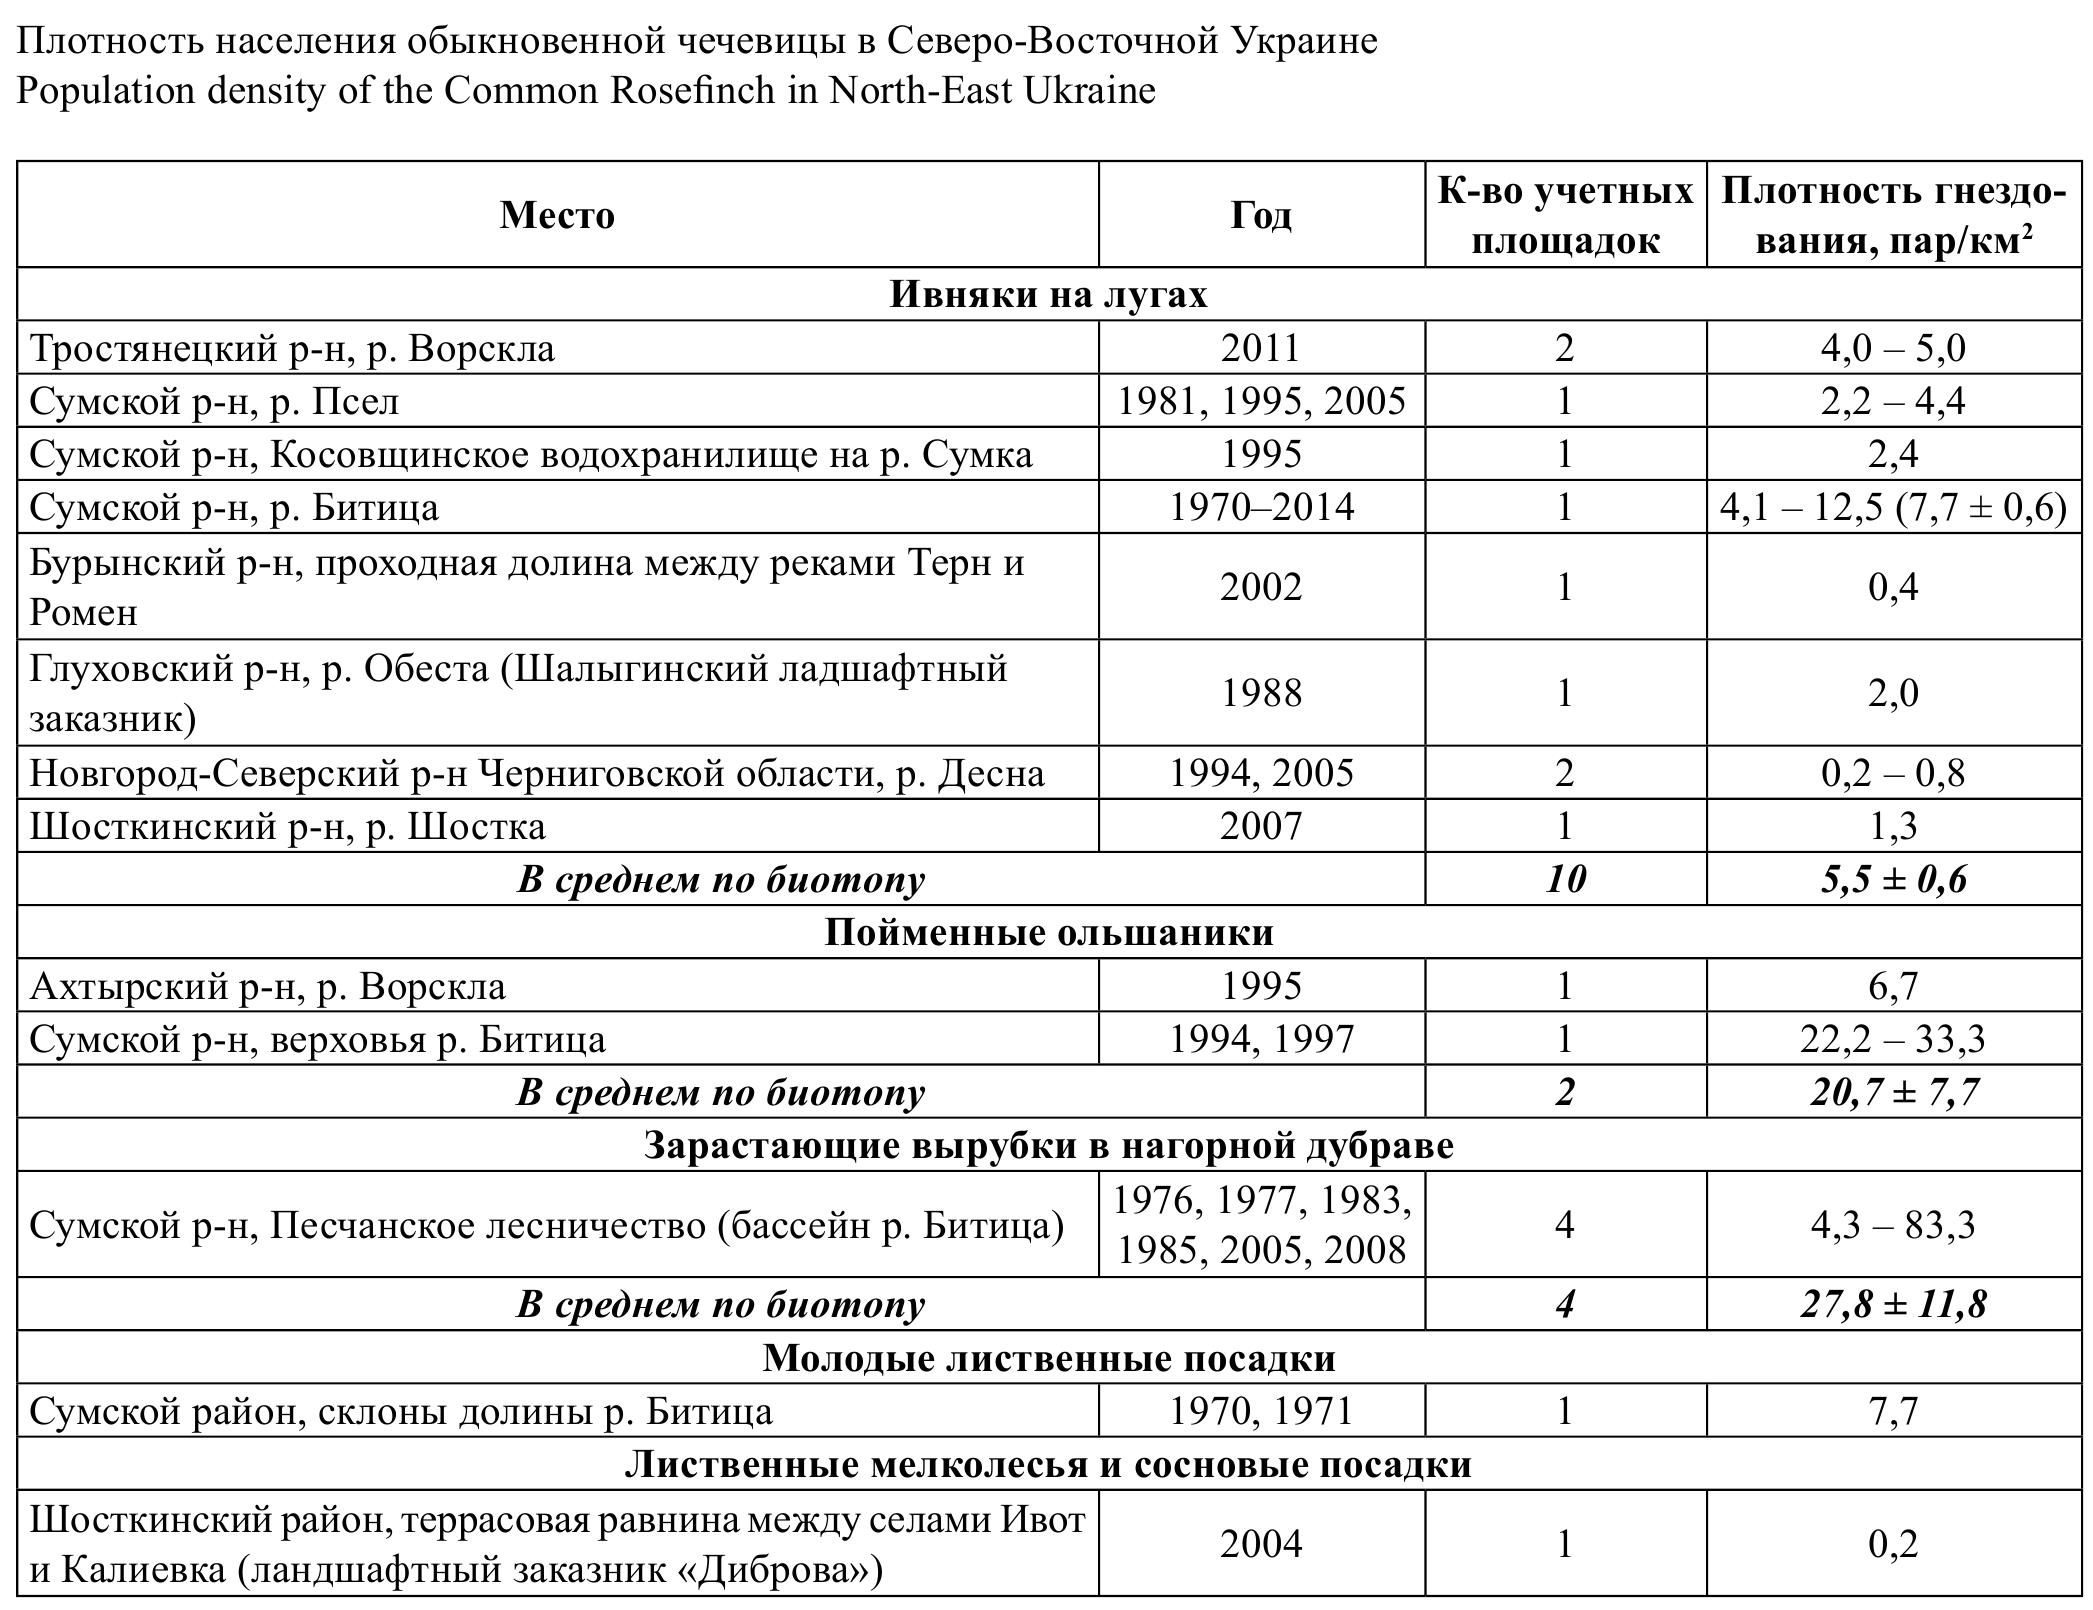
Типичный гнездовой биотоп чечевицы – разреженные малозатененные кустарниковые ивняки, граничащие с заболоченными луговыми или тростниковыми участками, а также осветленные опушки ольшаников. Не менее характерны молодые зарастающие вырубки лиственных лесов. Именно в таких условиях плотность населения вида наибольшая (табл. 1). В этом плане заметно выделяются «уютные» поймы небольших речек (притоков 1–2-го порядка крупных рек региона). Показательны три участка р. Битица (правый приток р. Псел) в окрестностях с. Вакаловщина Сумского района, наиболее затронутые нашими исследованиями.
1. Верховья речки. Узкая полоса луга с лентой заболоченного ольшаника вдоль водотока внутри большого массива нагорных дубрав. Длина участка 1,2 км, площадь – 9,0 га. В 1994 г. – 2, в 1997 г. – 3 пары, соотвественно 22,2 и 33,3 пар/км2.
2. Пойма за пределами дубравы. Растительность мозаичного типа: участки влажного луга, тростниковое болото с несколькими плесами, полосы и куртины кустарниковых ивняков и ольшаника общей площадью 24,5 га. В разные годы гнездовая плотность чечевицы колебалась от 4,1 до 12,5 пар/км2, в среднем (по 15 годам) – 7,7 ± 0,6.
3. Зарастающие вырубки (площадью от 1,2 до 23,2 га) внутри массива нагорных дубрав на склонах долины р. Битица и впадающих в нее балок, местами с выходом на межбалочные возвышенности («шпили»). На четырех вырубках учеты дали от 4,3 до 83,3 пар/км2, в среднем (по 6 годам) – 27,8 ± 11,8.
Локально, в стесненных условиях небольших вырубок, окруженных спелой дубравой, плотность гнездования может быть очень высокой (островной эффект!). Так, на зарастающей вырубке (300 Ч 40 м, площадь 1,2 га) в лесной балке в 0,5 км от ее устья в 1983 г. были найдены 2 гнезда (167,7 пар/км2), в 1985 г. – 1 пара (83,3 пар/км2).
Вместе с тем, есть вырубки, где чечевицы ни разу не наблюдались. На сильную приверженность обыкновенной чечевицы к молодым насаждениям лесных срубов указывают В.Г. Аверин (1910) и Н.И. Гавриленко (1929), они связывают рост численности и быстрое расселение вида на Харьковщине и Полтавщине с увеличением площади и числа срубов.
По литературным данным, на небольших участках пой менных лесов площадью от 3 до 10 га в Путивльском, Сумском и Ахтырском районах плотность населения чечевицы в репродуктивный период достигает 20 особей на 75 га (27 ос./км2), доля участия в населении – 0,9 % (Матвиенко, 1970), в пойме Десны на территории ДеснянскоСтарогутского национального природного парка (НПП) – 70 ос./км2, на Старогутском участке парка – 1,24 ос./км2 (Гаврись та ін., 2007).
Численность чечевицы в северо-восточном регионе Украины не ниже, чем в средней полосе России. Так, в Костромской области плотность ее гнездового населения в разных биотопах варьирует от 1,3 до 24 пар/км2 (Преображенская, 1998, цит. по: Сотников, 2008), в Московской – доходит до 4–5, в Рязанской в пойме р. Ока – до 8–9 пар/км2 (Птушенко, Иноземцев, 1968). Далее к востоку чечевица местами становится многочисленной: в пойменных дубравах Нижегородской области отмечается 18–100 пар/км2; в Кировской области на зарастающих вырубках – 25–85, в осиннике-жердняке на гари – 60–80, смешанном лесу – 25–120, в ряде других биотопов – от 1 до 50 пар/км2 (Воронцов, 1967, Шустов, 1981, цит. по: Сотников, 2008).
На исследованной территории межгодовые колебания численности чечевицы были невелики, хотя местами плотность ее населения могла изменяться в 2–3 раза. Локальные флуктуации численности определяются антропогенной трансформацией биотопов и изменениями (включая возрастные) растительных сообществ, что особенно заметно на зарастающих вирубках и в посадках. Не исключена связь с более масштабными процесами циклического характера. Определенная депрессия численности вида наблюдалась в 2005 г.
Фенология миграций
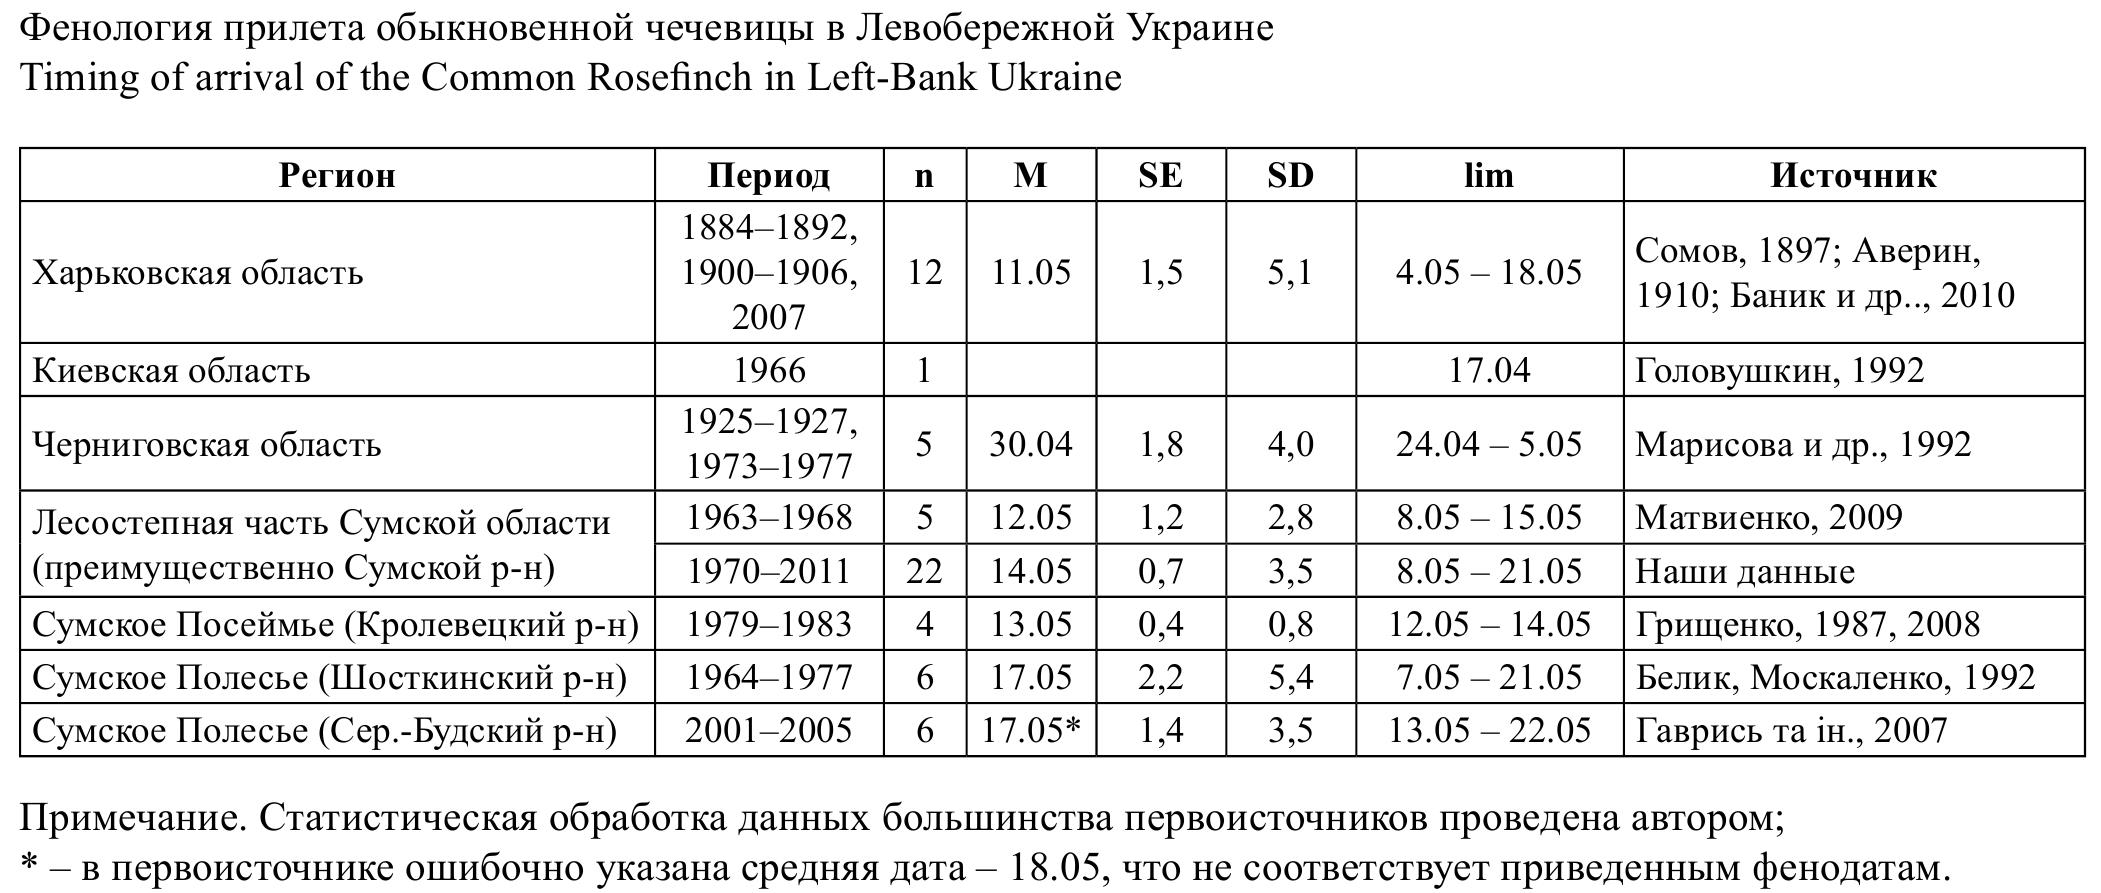
Обыкновенная чечевица – птица, прилетающая поздно. Даже на юге страны – в Крыму, где вид является исключительно редким, крайние даты весенних встреч 30.04.1997 (Карадаг) – 22.05.1999 (с. Портовое) и 25.05.1972 (г. Опук) (Костин, 1983; Кинда и др., 2003). В лесостепной части Сумской области (преимущественно в Сумском районе) прилет (первые случаи пения) чечевиц отмечен: 13.05.1963, 13.05.1965, 8.05.1966, 15.05.1967, 10.05.1968 (Матвиенко, 2009), а также, по нашим наблюдениям, – 14.05.1970, 14.05.1976, 9.05.1981, 13.05.1984, 21.05.1987, 18.05.1988, 14.05.1991, 12.05.1992, 15.05.1993, 17.05.1994, 13.05.1995, 13.05.1996, 11.05.1997, 12.05.1998, 19.05.1999, 17.05.2000, 8.05.2001, 18.05.2002, 14.05.2004, 13.05.2005, 8.05.2010, 18.05.2011. Обобщенные данные по началу прилета чечевицы в Сумской и других областях Левобережной Украины представлены в таблице 2.
Вызывают интерес очень ранние регистрации птиц в окрестностях Киева – 17.04.1966 (Головушкин, 1992), и в Черниговской области – 24.04.1925, 30.04.1927, 5.05.1973, 1.05.1974, 29.04.1977 (Марисова и др., 1992).
Здесь возможны два объяснения: некорректный отбор из ряда ежегодных фенодат только самых ранних из них для большой территории, или же в широкой долине Днепра чечевицы действительно появляються раньше, чем восточнее – в Харьковской и Сумской областях. Разобраться в ходе миграций чечевицы на территории Украины помогут будущие исследования.
Пролет чечевиц на Сумщине выражен слабо и обычно фиксируется по появлению отдельных самцов в негнездовых биотопах: 14.05.1970 г. – на окраине сельского парка, 18.05.1988 г. – в г. Сумы во дворе частной застройки (самец интенсивно пел под холодным моросящим дождем), 20.05.1969 г. – в г. Сумы на небольшом старом кладбище, 22.05.1996 г. – на нежилой усадьбе в селе.
Иногда поющие самцы появляются на короткое время в гнездовых биотопах, но затем исчезают (28.05.1997 г., 18.05.2002 г.). Иной характер пролета отмечается в других частях ареала чечевицы, например в Кировской области РФ, где часто наблюдаются группы и стайки из 3–4 и 8–15, а однажды (в середине июня 1999 г.) – 30–40 особей (Сотников, 2008).
Продолжительность пролета на Сумщине, вероятно, короче, чем в других, более северных, регионах. Так, в Московской области первые чечевицы отмечаются 10–23.05, а пролет продолжается иногда даже в первых числах июня (Птушенко, Иноземцев, 1968). В южной Карелии пролет и прилет на места размножения у чечевицы растянуты не менее чем на месяц. Часть местных самок, а также самцов-первогодков появляется здесь, когда передовые птицы уже приступают к размножению (Зимин, 1981, цит. по: Мальчевский, Пукинский, 1983).
По окончанию репродуктивного периода чечевицы незаметно исчезают. Уже в середине июля найти их очень трудно. Последние встречи старых (красных) самцов нами зафиксированы 11.07.2001 г. (птица в обношенном оперении) на луговине в пойме р. Псел (Сумской район) и 27.07.2011 г. – в пойме р. Сейм на луговой опушке в высоких зарослях молочая болотного (Euphorbia palustris) в заповедном урочище «Боромля» Конотопского района.
Кроме того, 16.07.1930 г. на Десне в окр. с. Пироговка Шост кинского района А.К. Шепе добыл сеголетка (Пекло, 2002). Самые поздние встречи чечевицы на Сумщине зафиксированы 23.08.1965 и 3.09.1966 гг. (Матвиенко, 2009), на Харьковщине – одинокая молодая птица отмече на 24.08.1889 г. (Сомов, 1897).
В северных и восточных частях арела (Подмосковье, Ленинградская область, Барабинская лесостепь) чечевицы начинают исчезать с середины или последней декады июля, в первой половине августа взрослые самцы уже очень редки, самки и сеголетки задерживаются до конца первой декады сентября (Птушенко, Иноземцев, 1968; Мальчевский, Пукинский, 1983; Чернышов, 2011). В Кировской области в 2003 г. они регулярно отмечались до 27.09 (Сотников, 2008). Отдельные молодые особи могут быть встречены и позже: 27.10.2011 г. на окраине СанктПетербурга в паутинную сеть одновременно с чечетками (Acanthis flammea) и зеленушками (Chloris chloris) была поймана молодая чечевица (Федоров, 2011).
Репродуктивный период
Самцы обыкновенной чечевицы начинают петь еще на пролете, а в местах гнездования их слышно со дня появления до конца периода размножения. Но иногда их можно услышать только дней через 5 после начальной даты прилета, как, например, в 1973 г. в Сумском Полесье (Белик, Москаленко, 1992).
В литературе описан один цикл пения у чечевицы с одним или двумя максимумами активности (Денисова и др., 1977). По этим данным, в Подмосковье интенсивность пения наибольшая на фазе насиживания, затем постепенно снижается и едва заметно оживляется с вылетом птенцов.
Под Воронежом первый подъем активности пения предшествует постройке гнезд, а второй совпадает со временем насиживания. По нашим данным, самцы наиболее интенсивно поют сразу по прилету и во время строительства гнезд, затем пение ослабевает, но несколько усиливается после вылета птенцов. В одном случае самец пел в течение9 дней после вылета последнего птенца (вероятно, столько времени слетки пребывали под опекой родителей). Последние случаи затухающего пения чечевиц в лесостепной части Сумщины зафиксированы 25.06.1986, 4.07.1987, 5.07.1989, 27.06.1991, 11.07.1992, 30.06.1995, 5.07.1996, 14.07.1997, 5.07.1998, 1.07.2004, 2.07.2007, 22.07.2011 г.; средняя дата — 5.07 ± 2,3 дня (n = 12).
Брачные пары чечевиц образуются не сразу, между прилетом и началом гнездования наблюдается разрыв, вызванный неодновременностью прилета самцов и самок, первых особей и основной массы птиц. Так, в 1998 г. прилет отмечен 12.05, а первые птицы в паре — только через 10 дней (старый самец и самка, совместно кормившиеся семенами одуванчика (Taraxacum officinale)). В другом случае поющий самец появился на гнездовом участке 23.05, самка — 29.05 (в этот день самец свистел особенно энергично, даже на земле рядом с самкой), а 9.06 в построенном этой парой гнезде появилось первое яйцо.
Таким образом, самец холостяковал 6 дней, а с момента формирования пары до начала яйцекладки прошло еще 11 дней. Время ушло на консолидацию пары и строительство гнезда. В одном из гнезд первое яйцо было отложено через 2 дня после завершения строительства.
В редких случаях чечевицы делают ложные гнезда (набросы, или «точкиґ»). По наблюдениям в Полтавской области (Дебелий, 2004), на гнездовом участке чечевиц находилось 4 наброса, сложенные из прошлогодних стеблей частухи подрожниковой (Alisma plantago-aquatica): 3 – в кустах, 1 – в зарослях тростника. Из последнего «точка» в дальнейшем птицы достроили настоящее гнездо, что заняло около 3 дней.
Гнездовой период чечевицы, как моноцикличного вида, в условиях Сумщины относительно короткий, первые яйца кладок появляються в течение 27 дней – между 22.05 (1983 г.) и 17.06 (1997 г.). Гнезда с началом кладки (n = 21) распределяются по декадам, начиная с последней майской, так: 9 (42,9%), 8 (38,1%), 4 (19,0%). Таким образом, подавляющее большинство (81,0%) пар приступают к размножению в период с 22.05 по 10.06. В сходные сроки размножаются чечевицы и в других областях Украины. На Луганщине откладка яиц началась в двух гнездах 20.05, в одном – 2.06 (Панченко, 2007); на Харьковщине кладка с 2 свежими яйцами обнаружена 30.05 (Аверин, 1910); на Полтавщине полные кладки (степень насиженности не известна) отмечены 21.06 и 1.07 (Дебелий, 2004), а начатая кладка и гнездо с 1 птенцом (2 сут.) – 27.05 и 29.06 (Шаповал, 2014). В окрестностях Львова гнездо с 5 яйцами (насиженность?) найдено 7.06 (Бокотей,1991).
Для сравнения, первые яйца в гнездах чечевицы появляются в лесах Подмосковья в период между 25.05 и 18.06, а запоздавшие повторные кладки, вызванные, видимо, гибелью первых, найдены 24, 27 и 28.06 (Птушенко, Иноземцев, 1968). В Беларуси первые кладки (начатая, полные свежие и слегка насиженные) зарегистрированы 3–5.06, а последняя, сильно насиженная – 7.07 (Никифоров и др., 1989). В окрестностях Ленинграда крайние сроки появления свежих кладок (n = 51) 28.05–28.06 (Мальчевский, Пукинский, 1983), в Калиниградской области на Куршской косе (n = 128) – 31.05–5.07 (Паевский, 1981), в бассейне Верхнего Дона – 6.06–7.07 (Климов и др., 1998), в Барабинской лесостепи (n = 22) – 5.06–6.07 (Чернышов, 2011).
Неодновременное размножение разных пар, по мнению А.С. Мальчевского и Ю.Б. Пукинского (1983), является следствием их растянутого прилета. Кроме этой причины, большое значение, видимо, имеют появление повторных кладок взамен разоренных, а также возрастной состав популяции (Чернышов, 2011).
По нашим данным, первые птенцы в гнездах чечевицы, появляются в первой декаде июня (7.06.1983 г., 2 случая), последние – в начале июля (1.07.1997 г.).
Гнезда
В зависимости от характера растительности чечевицы используют для размещения гнезд те или иные растения, но всегда это невысокие кустарники или подрост. В разреженных зарослях кустарников на болотистых лугах 3 гнезда из 9 обследованных были устроены на кустиках ивы (Salix triandra, S. cinerea), еще 2 – в густых сплетениях хмеля (Humulus lupulus), по одному гнезду – в кусте дикорастущей смородины черной (Ribes nigrum) и в кустообразном подросте яблони лесной (Malus sylvestris).
На зарастающих вырубках в дубраве 3 гнезда располагались на лещине (Corylus avellana), по 2 – на подросте вяза (Ulmus sp.) и клена полевого (Acer campestre), по одному – на подросте клена остролистного (A. platanoides) и пневой поросли липы сердцелистной (Tilia cordata). В кустарниках опушки дубравы близ пруда 2 гнезда были устроены на декоративном шиповнике (Rosa arvensis), одно – на дикорастущей малине (Rubus idaeus). В молодых лиственных посадках на склоне долины небольшой речки 2 гнезда найдены на подросте груши дикой (Pyrus communis) и яблони лесной, еще одно – в сосновой посадке на молодой сосне обыкновенной (Pinus sylvestris).
Найденные гнезда располагались в средней или верхней части кроны растений и были хорошо укрыты. Высота расположения гнезда от земли колеблется в пределах от 0,20 до 1,50 м; средняя высота (n = 22) – 0,86 ± 0,08 м (CV = 42,6 %). В диапазоне высоты 0,2–0,5 м было расположено 4 (18,2 %) гнезд, от 0,51 до 1 м – 10 (45,5 %), выше 1 м – 8 (36,3 %). На зарастающих вырубках они располагаются выше, чем в других биотопах – в среднем на высоте 1,10 ± 0,10 м (n = 9). Интересно, что в Ленинградской области на участке леса паркового типа чечевицы из-за недостатка кустов гнездились на деревьях на необычной для них высоте: из 6 найденных в разные годы гнезд с кладками 3 находились на высоте 2 м, а остальные еще выше – в 2,2, 2,5 и 5,5 м от земли (Прокофьева, 2002).
Гнездовые постройки чечевицы не отличаются сложностью конструкции и разнообразием использованных материалов. Некоторые из них почти полностью свиты из одних и тех же сухих растительных остатков. Так, одно из 7 проанализированных нами гнезд было свито из кусков побегов повоя заборного (Calystegia sepium), более тонких в выстилке лотка, и лишь в стенках торчали 2–3 древесных прутика. Каркас гнезда рыхло и грубо сложен из сухих прутиков березы (Betula sp.) (1 гнездо), пузыреплодника калинолистного (Physocarpus opulifolius) (1), с примесью кусков побегов хмеля (1), зверобоя (Hypericum perforatum) (1), нескольких сухих стеблей крапивы (Urtica dioica). Прутики каркаса достигают 26 см, некоторые торчат в стороны на 18 см. Однажды птица ломала их на кустах всего в 2 м от гнезда.
Материалом стенок гнезда служат различные сухие травы, в первую очередь соломины и листья злаков (4 гнезда), с заметной примесью подмаренника (Galium sp.) (2), соцветий зонтичных растений (3), несколькими кусками стеблей полыни обыкновенной (Artemisia vulgaris) (2), тысячелистника (Achillea sp.) (1), побегами горца кустарникового (Polygonum dumetorum) (1). В тонкой выстилке лотка заметно преобладают тончайшие, почти всегда расщепленные на волокна стебли злаков (6), в одном случае пополам с лубяными волокнами липы; в качестве примеси используются также тонкие корешки трав (2).
В одном случае были использованы тонкие побеги повоя заборного. В 4 гнездах было немного конского волоса, в одном — кусок рыболовной лески. Несомненно, ограниченное использование волоса связано с практически полным его отсутствием в местах гнездования.

Диаметр гнезда (n = 6) колеблется от 120 х 120 и 125 х 100 до 130 х 125 (среднее 126 ± 2 х 117 ± 4) мм, высота — от 65 до 90 (76 ± 5) мм. Диаметр лотка — от 50 х 50 до 65 х 60 и 70 х 55 (в среднем 60 ± 3 х 55 ± 2) мм, глубина лотка — 38-45 (40 ± 1) мм.
Кладки, насиживание
По нашим данным, в кладке обыкновенной чечевицы 4 (n = 9) — 5 (8) — 6 (1) яиц, в среднем (n = 18) 4,56 ± 0,15. Средняя величина кладки несколько уменьшается к концу сезона и составляет: 3-я декада мая — 4,71 ± 0,29 (n = 7), 1-я декада июня — 4,50 ± 0,13 (n = 6), 2-я декада июня — 4,40 ± 0,24 (n = 5). Подобная тенденция отмечена и в других точках гнездового ареала вида (Ковшарь, 1979; Иовченко, 1986).
В Полтавской области 3 полные кладки состояли из 3, 4 и 5 яиц (Дебелий, 2004; Шаповал, 2014), возле г. Львов найдено гнездо с 5 яйцами (Бокотей, 1991), в Серебрянском лесничестве Луганской области — 3 гнезда с кладками из 5, 5 и 6 яиц (Панченко, 2007). Величина кладки чечевицы на северо-востоке Украины, вероятно, меньше, чем в северных и северо-западных частях ареала (табл. 3), но примерно такая же, как в более восточных, находящихся на той же географической широте. Среди представленных в таблице 3 данных выделяются своей величиной кладки в Кировской области, Финляндии (здесь обычны кладки с 6 яйцами и даже зарегистрирована одна кладка с 7 яйцами) и южной Швеции (Risberg, 1970, цит. по: Зимин, 1988; Stjernberg, 1979; Сотников, 2008).
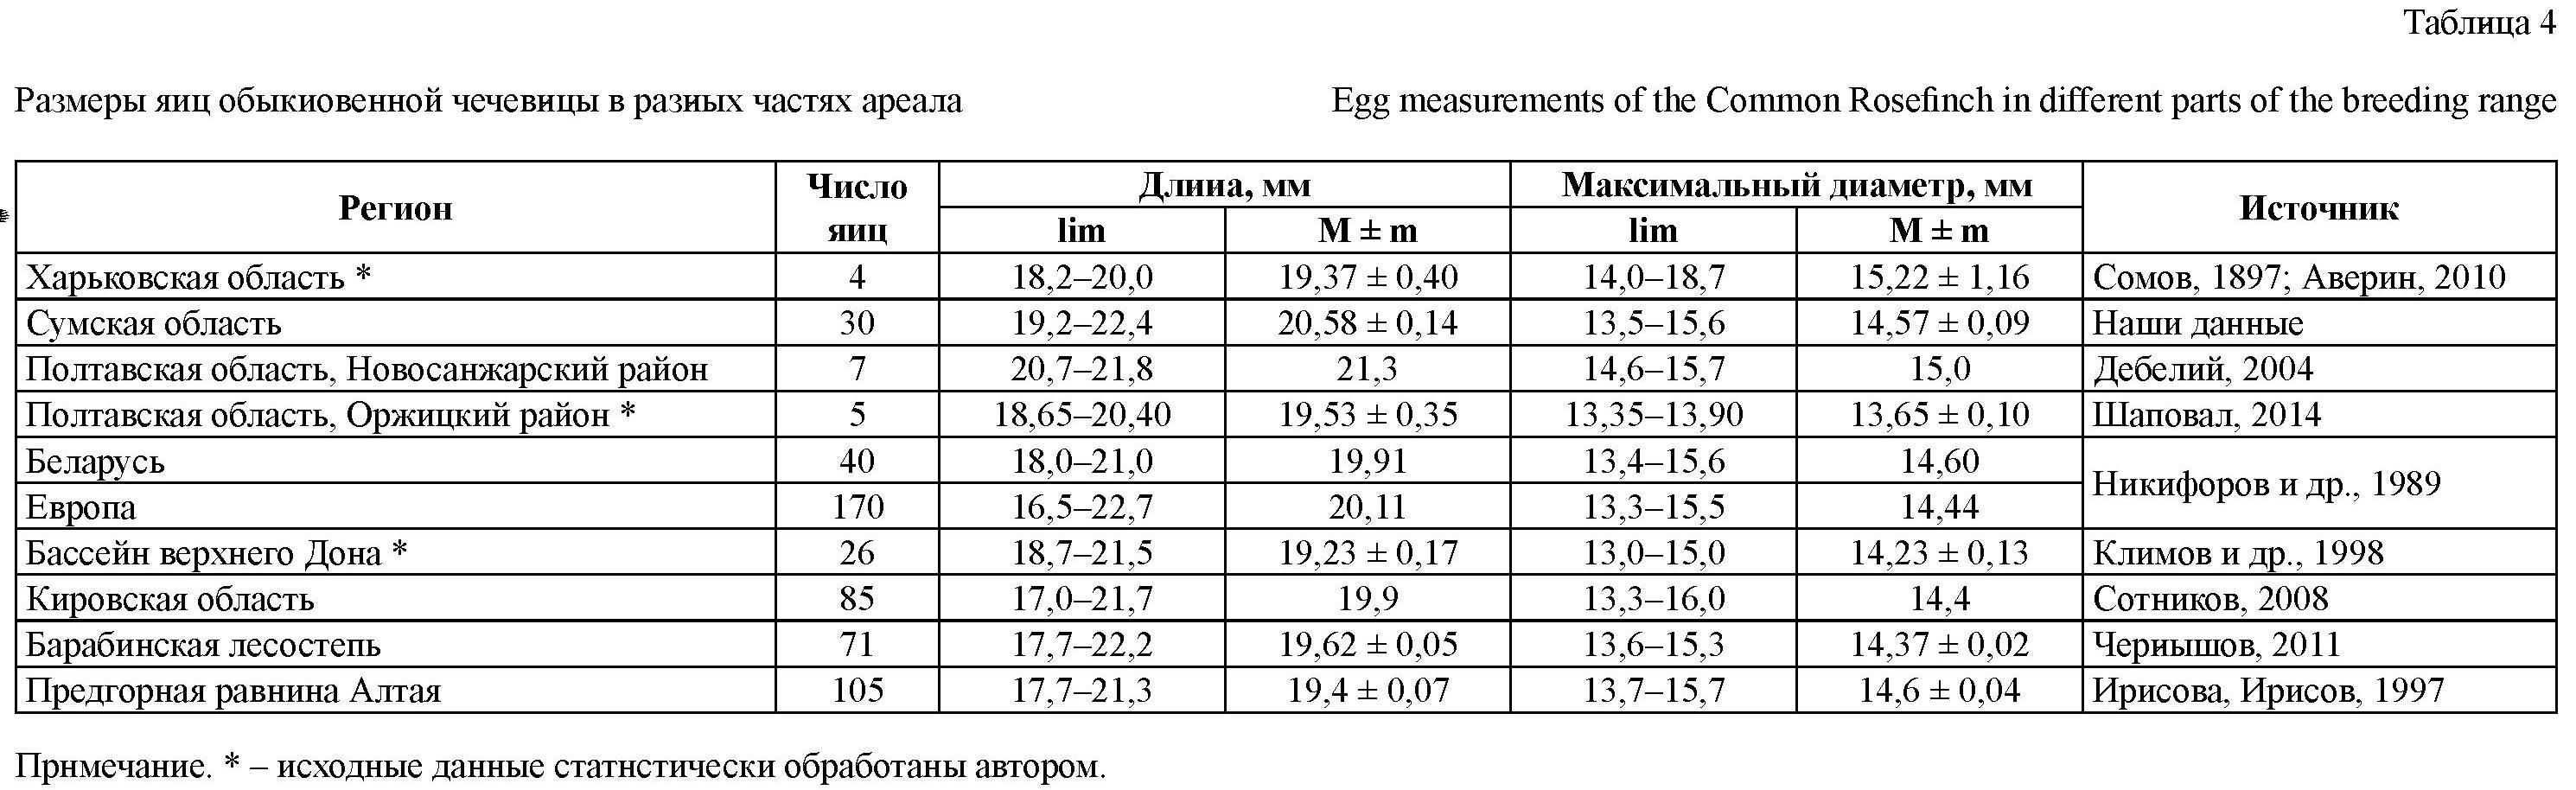
На Сумщине размеры яиц (n = 30, 7 кладок) чечевицы составляют в среднем 20,58 ± 0,14 х 14,57 ± 0,09 мм (табл. 4). Коэффициент вариации (CV) длины равен 3,7 %, наибольшего диаметра (ширины) — 3,3 %. Индекс округленности составляет 63,38-75,0, в среднем 70,86 ± 0,50 (CV = 3,8 %). Индивидуальные размеры яиц с минимальными длиной и диаметром — 19,2 х 13,7 и 21,3 х 13,5 мм, с максимальными длиной и диаметром 22,4 х 15,1 и 20,8 х 15,6 мм соответственно. Размеры яиц с крайними вариантами формы — 21,3 х 13,5 (Sph = 63,38) и 20,8 х 15,6 мм (Sph = 75,0).
Параметры яиц чечевицы в других частях ареала представлены в таблице 4. Заметно, что яйца из Сумской области оказались в среднем крупнее яиц из бассейна верхнего Дона, Барабы и предгорной равнины Алтая (по длине яиц различия достоверны, р < 0,05). Причина этих различий кроется, скорее всего, в неадекватности выборочных данных, а не в географической тенденции. Изменчивость яиц зависит от многих причин (погодные особенности сезона, возраст и физиологическое состояние самок, величина кладки и т.д.), для дифференцировки которых нужен соответствующий подход и массовый материал. Также отмечается тенденция к возрастанию размеров яиц чечевицы в течение сезона (Чернышов, 2011), что в свою очередь сопряжено с уменьшением величины кладки.
В процессе яйцекладки самка все больше задерживается в гнезде, а непрерывное насиживание начинается с откладки предпоследнего яйца. На гнезде она сидит очень крепко. Насиживание двух 4-яйцовых июньских кладок завершилось вылуплением птенцов в одном случае на 12-й день, в другом — на 13-й после откладки последнего яйца. Для других регионов приводится такая продолжительность насиживания: Луганская область — 14 сут. (Панченко, 2007), Московская область — 13-14 (Птушенко, Иноземцев, 1968), западная Финляндия — 11-13, в среднем 12 сут. (Stjernberg, 1979), субвысокогорье Тянь-Шаня — 12-14 сут (Ковшарь, 1979), Алтайский край — 11-13 сут, а продолжительность инкубации отдельных яиц с момента откладки до вылупления колеблется от 12,5 до 15 сут., в среднем составляет 13,5 ± 0,2 сут (Ирисова, Ирисов, 1997). Различия в продолжительности насиживания объясняются, видимо, индивидуальными различиями в плотности инкубации, особенно в период прерывистого насиживания незавершенных кладок.
С прерывистым насиживанием на фазе откладки яиц связана неодновременность выклевывания птенцов одной кладки. Этот процесс, по нашим наблюдениям за двумя гнездами, занимает не менее двух суток: в первый день появились 3 птенца, на второй день — последний птенец (последовательность оставления слетками гнезда примерно такая же). В целом же вылупление птенцов у чечевицы может растягиваться до 3 суток (Stjernberg, 1979; Ирисова, Ирисов, 1997).
Выводки, репродуктивные потери
В 4 выводках на момент вылупления была 1, 3, 4 и 5 птенцов (среднее 3,3 ± 0,9), такое же их количество наблюдалось на вылете.
Успешность гнездования низкая, из 7 гнезд с прослеженной судьбой только в 4 (57,1%) случаях птенцы благополучно покинули гнездо, остальные 3 (42,9%) гнезда были разорены. Из 28 яиц вылупились и стали на крыло всего 13 птенцов (46,4 % от исходного числа яиц), что составляет в среднем 1,9 ± 0,8 птенцов на пару, участвовавшую в размножении. Этого явно недостаточно для воспроизводства местной популяции. Однако, учитывая что в расчетах использован незначительный объем данных, можно предполагать, что ситуация на самом деле лучше. По расчетным данным, необходимое ежегодное восстановление популяции чечевицы на Куршской косе должно составлять не менее 2,2 вылетевших из гнезд молодых на 1 взрослую размножающуюся птицу (Паевский, 1981).
В других местах ареала чечевицы отмечается как высокая, так и низкая успешность размножения. В частности, в Ленинградской области до вылета дожили птенцы из 62,5 % яиц (Нанкинов, 1974), в Калиниградской области на Куршской косе — 64,4 ± 2,7 % (Паевский, 1981), а по более полным данным 71,4 % в 1959-1971 гг., 63,1 % в 1972-1982 гг. и 60,6 % в 1983-1995 гг. (Payevsky, 2008), в западной Финляндии — 49 % (Stjernberg, 1979), в Пермской области — 42,5 % при средней величине выводка 2,1 птенца (Фуфаев, 1984, цит. по: Сотников, 2008).
В Барабинской лесостепи птенцы вылетели в 53,8 % гнезд (Чернышов, 2011), в субвысокогорье Тянь-Шаня гибель гнезд еще больше, успешное гнездование наблюдалось только в 15 (38,4 %) из 39 контролируемых гнезд (Ковшарь, 1979). В Алтайском крае успешность размножения чечевиц в целом высокая: 70,8 % успешных гнезд в среднегорье и 84,6 % — в высокогорье (Ирисова, Ирисов, 1997). В Швеции в окрестностях Раттвика в период насиживания в среднем 36,9 % гнезд погибают от наземных хищников (Bjorklund, 1990).
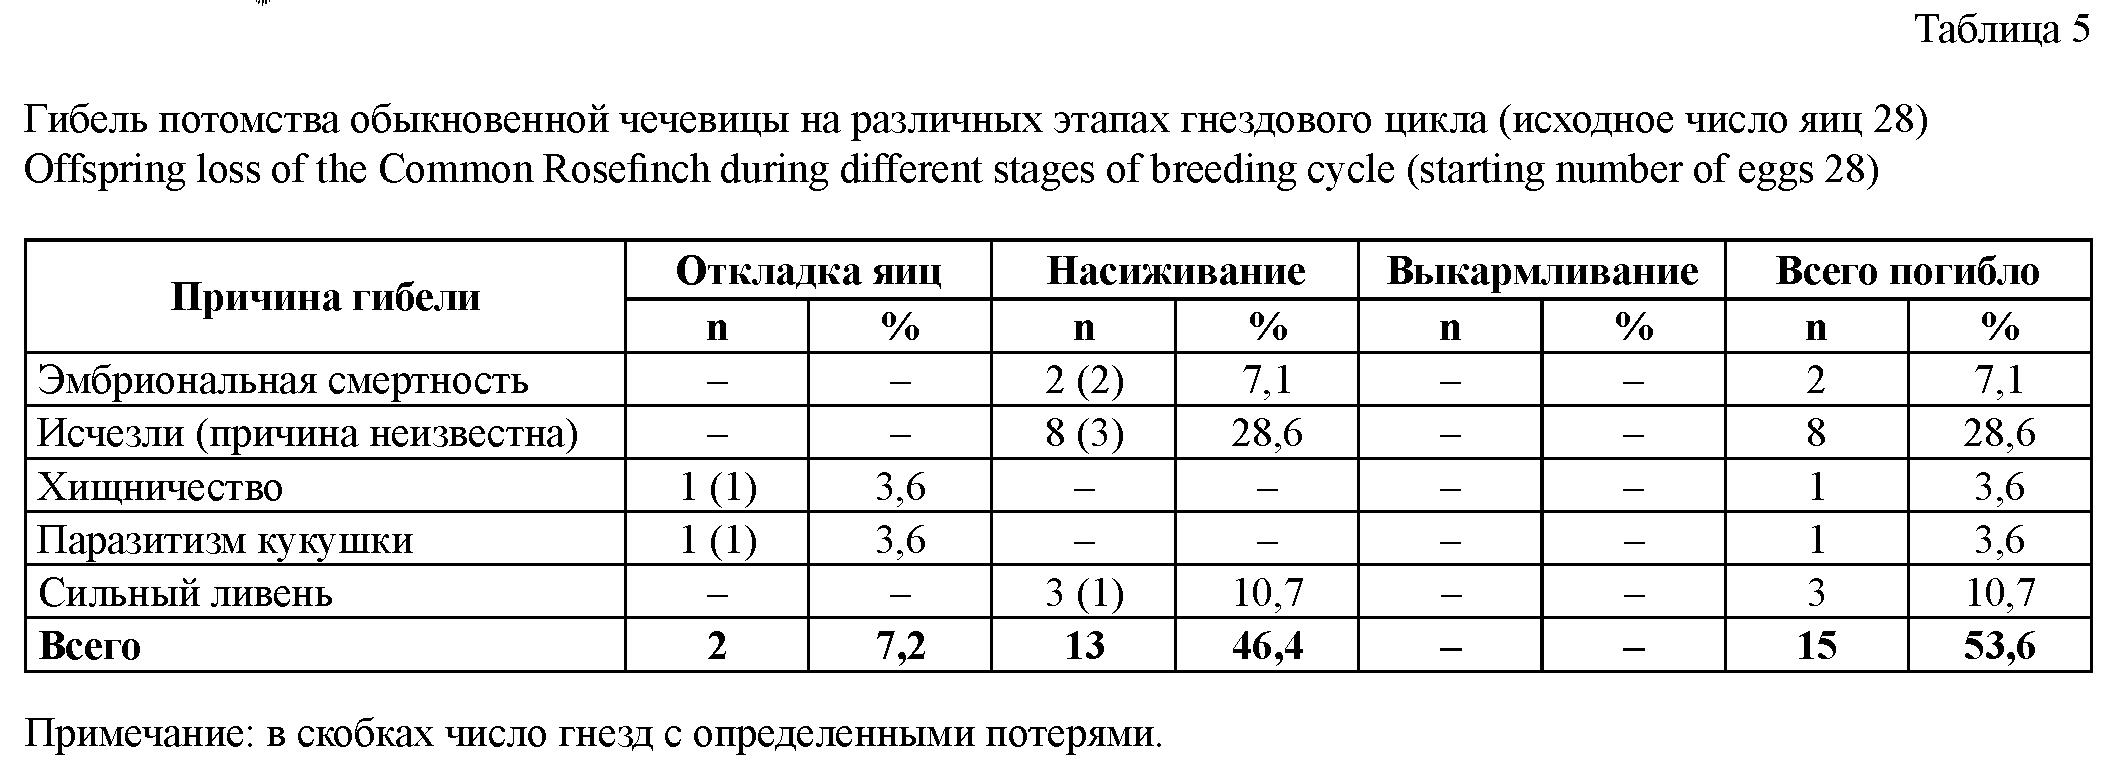
В исследованной выборке репродуктивные потери чечевиц происходили на фазах яйцекладки (7,1 % от исходного числа яиц) и насиживания (46,4 %), гибель птенцов не зафиксирована (табл. 5). Наибольшие потери потомства связаны с исчезновением яиц, при этом в 2 гнездах пропали 1 и 2 яйца, в одном — все 5 яиц кладки. Заметим, что отдельные яйца кладок могли быть похищены кукушкой (Cuculus canorus), или же они удалены самой чечевицей, однако исчезновение всех яиц кладки — явно «работа» хищников. В установленном случае от хищничества пострадала начатая кладка — яйцо было разгрызено лесной соней (Dryomys nitedula). Еще в одном гнезде яйцо похитила кукушка взамен своего подложенного, а позже вся кладка погибла во время сильного ливня. Неоплодотворенные яйца не фиксировались, эмбриональная смертность составила 7,1 % — погибли 2 яйца с сильным наклевом.
В условиях Сумщины чечевица относится к случайным воспитателям обыкновенной кукушки. Найденное в гнезде яйцо-подкидыш (21,1 х 15,7 мм, вес 2,74 г) по окраске и рисунку резко отличалось от яиц хозяйки и похоже на яйца кукушки типа «болотной камышевки» (Acrocephalus palustris). Фон скорлупы светлый сероватозеленоватый, глубокие пятнышки и точки редкие, темносерого дымчатого цвета, поверхностные очень густые буровато-серые пестринки несколько сгущены в области венчика (Кныш, 2000).
У нас нет сведений о режиме питания гнездовых птенцов. Из литературы известно, что взрослые кормят их размягченной в зобу пищей, состоящей из незрелых семян различных растений, а также из небольшого количества пауков, гусениц, бабочек и других мелких насекомых (Дементьев, 1954; Птушенко, Иноземцев, 1968; Мальчевский, Пукинский, 1983 и др.). Сами взрослые птицы питаются преимущественно растительной пищей (семена, почки, цветки древесных растений, ягоды и т.д.). В желудках трех самцов, добытых 17.05.1964 г. в Ямпольском районе Сумской области, обнаружены пауки (1 экз.), долгоносики (2), листоеды (11) и семена диких злаков (Матвиенко, 2009).
В пору плодоношения одуванчиков чечевицы с большой охотой кормятся их семенами.
Заключение
В статье вполне заметны многие пропуски и недоговоренности, что вызвано ограниченностью фактических данных или вообще их отсутствием. Для более-менее полной характеристики вида в конкретных условиях региона необходимы сведения по предбрачному периоду, режиму насиживания и выкармливания птенцов, их росту и развитию, пищевому рациону, послегнездовой жизни, линьке взрослых и молодых особей, активности и поведению на разных этапах жизненного цикла. Не менее важны данные о ходе миграций, динамике численности, половой и возрастной структуре популяции, другим демографическим параметрам, внутривидовым и межвидовым отношениям, факторам, угрожающим благополучию популяции. Только дальнейшие исследования, накопление и анализ материалов позволят выяснить закономерности этих процессов.
Благодарности
Я искренне благодарен Евгении Дмитриевне Яблоновской-Грищенко (Каневский природный заповедник) за важные сведения по фенологии вокальной активности чечевицы, Валерию Михайловичу Малышку (г. Шостка) — за содействие в сборе материала по гнездованию вида в Шосткинском районе. Особая благодарность Анаталию Петровичу Шаповалу (Биологическая станция «Рыбачий», ФГБУН Зоологический институт РАН) за помощь в поиске нужной литературы и Виталию Николаевичу Грищенко (Каневский природный заповедник) за ценные замечания, сделанные при редактировании работы, благодаря чему она стала более «читабельной».
Литература
• Аверин В.Г (1910): К орнитологии Харьковской губ. — Тр. Об-ва испыт. природы при Харьков. ун-те. Харьков. 43: 243-293.
• Афанасьев В.Т, Гаврись Г.Г., Клестов Н.Л. (1992): Орнитофауна деснянской поймы и ее охрана. Киев: Ин-т зоол. АН Украины. 1-58. (Препринт 92.7).
• Баник М.В., Атемасова Т.А., Атемасов А.А., Брезгунова О.А., Волонцевич А.А., Гончаров ГЛ., Девятко ТН., Лисняк С.Н., Яцюк Е.А. (2010): Результаты наблюдений за периодическими явлениями в жизни птиц в Харьковской области в 2007 году. — Птицы бас. Сев. Донца. Донецк. 11: 118-128.
• Баник М.В., Высочин М.О., Атемасов А.А., Атемасова ТА., Девятко ТН. (2013): Птицы Двуречанского национального природного парка и его окрестностей (Харьковская область). — Беркут. 22 (1): 14-24.
• Белик В.П., Москаленко В.М. (1992): Фенология весеннего прилета птиц в Сумском Полесье. — Сез. миграции птиц на территории Украины. Киев: Наук. думка. 240-243.
• Бокотей А.А. (1991): О гнездовании обыкновенной чечевицы в окрестностях г. Львова. — Орнитология. М.: МГУ. 25: 148-149.
• Гавриленко Н.И. (1929): Птицы Полтавщины. Полтава: Полт. союз охотников. 1-133.
• Гавриленко Н.И. (1970): Позвоночные животные и урбанизация их в условиях города Полтавы. Харьков: Изд-во Харьковского ун-та. 1-140.
• Гаврись Г.Г., Кузьменко Ю.В., Мішта А.В., Коцержинська І.М. (2007): Фауна хребетних тварин Національного природного парку «Деснянсько-Старогутський». Суми: Козацький вал. 1-120.
• Головушкин М.И. (1992): Фенология весеннего прилета птиц в окрестностях Киева. — Сез. миграции птиц на территории Украины. Киев: Наук. думка: 242-249.
• Грищенко В.Н. (1987): К фенологии весенней миграции птиц долины р. Сейм. — Пробл. общей и мол. биологии. Киев. 6: 39-43.
• Грищенко В.Н. (2008): Материалы по фенологии миграции птиц Сумского Посеймья. — Авіфауна України. 4: 71-83.
• Гудина А.Н. (2009): Редкие и малоизученные птицы Восточной Украины. Т 3. Passeriformes. Запорожье: Днепровский металург. 1-182.
• Дебелий Я.Ю. (2004): Нетипове гніздування чечевиці звичайної (Carpodacus erythrinus) та коноплянки (Acanthis cannabina) в очеретяних заростях. — Вестн. зоол. 38 (2): 62.
• Дементьев ГП. (1954): Обыкновенная чечевица Erythrina erythrina Pall. — Птицы Советского Союза. М.: Сов. наука. 5: 259-264.
• Демченко М.А. (1947): Реки и озера. — Геологический очерк Сумской области. Сумы: Більшовицька зброя. 45-73.
• Денисова М.Н., Подаруева В.И., Давыдова А.С. (1977): Сезонный ритм пения птиц на разных участках ареала. — Географическая изменчивость некоторых эколого-физиологических признаков птиц. М. 34-78.
• Зимин В.Б. (1988): Экология воробьиных птиц Северо-Запада СССР. Л.: Наука. 1-184.
• Иовченко Н.П. (1986): Экология обыкновенной чечевицы, Carpodacus erythrinus (Pall.) в Киргизском Алатау (Тянь-Шань). — Экологические и фаунистические исследования птиц. Тр. Зоол. ин-та АН СССР. 147: 7-24.
• Ирисова Н.Л., Ирисов Э.А. (1997): Сравнительное исследование биологии гнездования чечевицы Carpodacus erythrinus в горах и на равнине. — Рус. орн. журн. 15: 3-16.
• Кинда В.В., Бескаравайный М.М., Дядичева Е.А., Костин С.Ю., Попенко В.М. (2003): Ревизия редких, малоизученных и залетных видов воробьинообразных (Passeriformes) птиц в Крыму. — Бранта. 6: 25-58.
• Климов С.М., Сарычев В.С., Недосекин В.Ю., Абрамов А.В., Землянухин А.И., Венгеров П.Д., Нумеров А.Д., Мельников М.В., Ситников В.В., Шубина Ю.Э. (1998): Кладки и размеры яиц птиц бассейна Верхнего Дона. Липецк: ЛПГИ. 1-120.
• Книш М.П. (1998): Птахи околиць біологічного стаціонару «Вакалівщина» (анотований перелік видів). — Вакалівщина: До 30-річчя біостаціонару Сумського педінституту. Суми: 99-120.
• Кныш Н.П. (2000): Обыкновенная кукушка и ее воспитатели в лесостепье Сумщины. — Беркут. 9 (1-2): 51-73.
• Книш М.П. (2006): Фенологія весняної міграції птахів у лісостеповій частині Сумської області за даними спостережень 1967-2006 рр. — Авіфауна України. 3: 77-92.
• Ковшарь А.Ф. (1979): Певчие птицы в субвысокогорье Тянь-Шаня (очерки летней жизни фоновых видов). Алма-Ата. 1-312.
• Костин Ю.В. (1983): Птицы Крыма. М.: Наука. 1-241.
• Кривицкий И.А., Чаплыгина А.Б. (2010): Эколого-фаунистический обзор изменений и современное состояние представителей вьюрковых птиц в Харьковской области. — Птицы бас. Сев. Донца. Донецк. 11: 25-35.
• Мальчевский А.С., Пукинский Ю.Б. (1983): Птицы Ленинградской области и сопредельных территорий: история, биология, охрана. Л. 2: 1-504.
• Марисова И.В., Самофалов М.Ф., Бабко В.М. (1992): История изучения и фенология миграций птиц на Черниговщине. — Сез. миграции птиц на территории Украины. Киев: Наук. думка. 221-240.
• Матвиенко М.Е. (1970): Птицы Сумской области. — Дис. … канд. биол. наук. Сумы. 1-162. (Рукопись).
• Матвиенко М.Е. (2009): Очерки распространения и экологии птиц Сумской области (60-е годы XX ст.). Суми: Университет. книга. 1-210.
• Нанкинов Д.Н. (1974): Об экологии обыкновенной чечевицы в Ленинградской области. — Мат-лы 6 Всесоюзн. орнитол. конфер. М.: МГУ 2: 92-93.
• Нанкинов Д.Н. (2011): Птицы города Лубны. — Рус. орн. журн. 20 (666): 1207-1247.
• Никифоров М.Е., Яминский Б.В., Шкляров Л.П. (1989): Птицы Белоруссии: Справочник-определитель гнезд и яиц. Минск: Вышэйшая школа. 1-479.
• Новак В.О., Савчук О.В. (1992): Птахи Рівненської області (фауністична характеристика). Рівне. 1-24.
• Носаченко А.В. (2008): Орнитофауна окрестностей Погребища (Винницкая область) в 1918-1921 гг. — Авіфауна України. 4: 6-49.
• Паевский В.А. (1981): Демографические показатели популяции обыкновенной чечевицы на Куршской косе. — 10 Прибалт. орнитол. конфер. Тез. докл. Рига. 2: 153-155.
• Паевский В.А. (2008): Демографическая структура и популяционная динамика певчих птиц. СПб — М.: КМК. 1-235.
• Панченко С.Г (2007): Птицы Луганской области. Луганск. 1-137.
• Пекло А.М. (2002): Каталог коллекций Зоологического музея ННПМ НАН Украины. Птицы. Вып. 3. Воробьинообразные — Passeriformes. Киев. 1-312.
• Прокофьева И.В. (2002): Нетипичное устройство гнезд и необычное поведение некоторых птиц в гнездовой период. — Рус. орн. журн. 11 (186): 484-493.
• Птушенко Е.С., Иноземцев А.А. (1968): Биология и хозяйственное значение птиц Московской области и сопредельных территорий. М.: Изд-во Моск. ун-та. 1-461.
• Сомов Н.Н. (1897): Орнитологическая фауна Харьковской губернии. Харьков: Тип. А. Дарре. 1-680.
• Сотников В.Н. (2008): Птицы Кировской области и сопредельных территорий. Воробьинообразные. Киров: Триада плюс. 2 (2): 1-431.
• Страутман Ф.И. (1963): Птицы западных областей Украины. Львов: Изд-во Львов. ун-та. 2: 1-182.
• Тайкова С.Ю. (2003): Чечевиця звичайна. — Птахи України під охороною Бернської конвенції. Київ. 363-364.
• Третьяков ГП. (1979): Материалы по биологии красношапочного вьюрка и обыкновенной чечевицы в высокогорьях Западного Тянь-Шаня. — Экология гнездования птиц и методы ее изучения. Тез. Всесоюзн. конфер. молодых ученых. Самарканд. 212-213.
• Федоров Д.Н. (2011): Поздняя встреча чечевицы Carpodacus erythrinus в Санкт-Петербурге. — Рус. орн. журн. 20 (704): 2257-2258.
• Фесенко Г.В., Бокотей А.А. (2002): Птахи фауни України: польовий визначник. Київ. 1-416.
• Хлебешко В.Н., Цицюра В.К. (1993): Фенология гнездования птиц северо-востока Житомирского Полесья. Житомир. 1-37.
• Цвелых А.Н. (1993): Фаунистический сюрприз: гнездование чечевицы (Carpodacus erythrinus) в Крыму. — Рус. орн. журн. 2 (1): 94-96.
• Чернышов В.М. (2011): Биология обыкновенной чечевицы Carpodacus erythrinus в Барабинской лесостепи. — Рус. орн. журн. 20 (664):1168-1171.
• Шаповал А.П. (2014): Материалы по гнездованию некоторых видов птиц на западе Полтавской области. — Рус. орн. журн. 23 (1081): 3933-3940.
• Bjorklund M. (1990): Nest failures in the Scarlet Rosefinch Carpodacus erythrinus. — Ibis. 132 (4): 613-617.
• Payevsky V.A. (2008): Breeding and demographic parameters and range expansion of the Common Rosefinch (Carpodacus erythrinus). — Ring. 30 (1-2): 27-35.
• Stjernberg T. (1979): Breeding biology and population dynamics of the scarlet rosefinch Carpodacus erythrinus. — Acta zool. fenn. 157: 88.
Источник
Беркут 23, 2014, выпуск 2. стр. 79-87.