
Семейство: Совиные Strigidae
Род: Неясыти Strix
Вид: Strix uralensis (Pallas, PS 1771)
Протоним: Stryx uralensis.
Синоним: Strix [uralensis or davidi], Strix schumavensis, Strix uralensis, Strix uralensis uralensis, Stryx [sic] uralensis, Stryx uralensis.
Немецкое название: Habichtskauz
Испанское название: Cárabo uralense.
Казахское название: Кезқұйрық жапалақ
Украинское название: Довгохвоста сова.
Другие названия: уральская неясыть.
Taxonomic Serial Number : 555433 | Global Biodiversity Information Facility : 532KQ.
Список ПОДВИДОВ вида Длиннохвостая неясыть Strix uralensis (Pallas, PS 1771)
‐ Западная длиннохвостая неясыть — Strix uralensis liturata (Lindroth, PG 1788)
‐ Западносибирская длиннохвостая неясыть — Strix uralensis uralensis (Pallas, PS 1771)
‐ Среднесибирская длиннохвостая неясыть — Strix uralensis yenisseensis (Buturlin, SA 1915)
‐ — Strix uralensis daurica (Stegmann, BK 1929)
‐ Дальневосточная длиннохвостая неясыть — Strix uralensis nikolskii (Buturlin, SA 1907)
ОСНОВНОЕ ОПИСАНИЕ ПО: . —
Мезоптиль в целом буро-охристый, с более светлыми концами отдельных перьев, что особенно заметно вокруг клюва, на голове, спине, груди и отчасти на животе и боках. Именно благодаря почти белым вершинам многих перьев, совята на начальном этапе развития мезоптиля кажутся очень светлыми, почти белыми, однако по мере развития пера уже к 20-дневному возрасту явно темнеют, одновременно приобретая нечёткую поперечную полосатость, наиболее явно выраженную на груди и животе. В этом возрасте птенцы длиннохвостой неясыти внешне поразительно схожи с птенцами серой неясыти, что иногда приводит даже к путанице с определением совят при кольцевании, если не удаётся разглядеть их родителей.
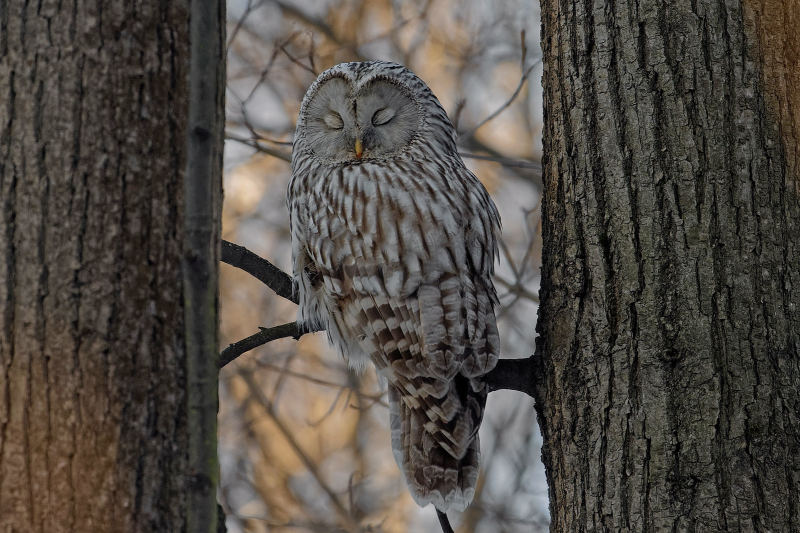
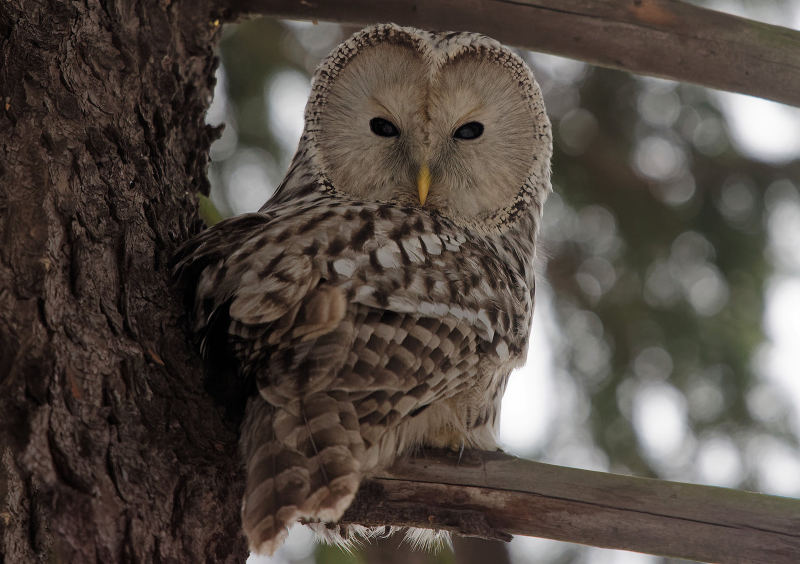
Первый годовой и окончательный наряды, равно как и оперение самцов и самок — одинаковые: общий тон белесый, иногда с охристым оттенком, с бурым, в общем продольным рисунком; темя, затылок и тыльная сторона шеи с широкими бурыми настволинами; на плечах эти пятна имеют скорее каплевидную форму, расширяясь к вершине пера, в результате чего перья на плечах и отчасти спине кажутся тёмными с белесыми (светло-охристыми) каймами; малые, средние и большие кроющие крыла — бурые с супротивными беловато-охристыми пятнами, особенно заметными на наружных опахалах; маховые и рулевые бурые, с почти чёрным поперечным рисунком; брюшная сторона светлая, буро-охристая, с хорошо заметными развитыми широкими, почти чёрными пестринами, образующими характерную продольную испещрённость низа тела. Лицевой диск светло-серый, однотонный и этим хорошо отличается от полосатого лицевого диска бородатой неясыти. Составляющие его перья в большинстве своём серые, но имеют тёмно-бурые стволики, окраска которых распространяется на опахала ограничивающих диск перьев. Радужина глаз тёмно-бурая, края век, в отличие от серой неясыти, бурые, клюв бледно-жёлтый, когти буроватые, иногда, особенно у молодых птиц, желтоватого цвета.
В общем, наиболее светлую окраску имеют взрослые особи из центральных районов ареала, несколько более тёмную — из юго-восточных. Кроме того, популяциям из Южной Европы свойственно явление морфизма: здесь птицы представлены двумя цветовыми морфами — серо-бурой и бурой.
Строение и размеры. Длиннохвостая неясыть, если не принимать во внимание длину её хвоста, имеет пропорциональное и, одновременно, крепкое телосложение, характерное для хищников, использующих разнообразный корм. В облике её отразилось и то, что эта сова сравнительно универсальна в приёмах кормо-добывания и охотится не только в ночные часы, но и в сумерках. В этом отношении примечательны сравнительно небольшая голова (меньше, чем у серой и бородатой неясытей), достаточно чётко выраженный лицевой диск, сравнительно некрупные глаза, относительно мощный и далеко выступающий клюв. По большинству этих признаков длиннохвостую неясыть, даже в молодом возрасте, возможно отличить от схожих с ней серых неясытей (Scherzinger, 1980).
Мощные и оперённые до когтей лапы способны удержать жертву, по размерам даже превосходящую эту сову. Лапа длиннохвостой неясыти сохраняет признаки явной оборотно-палости не только при схватывании и удержании добычи или в момент, когда птица сидит на ветке, но и при хождении по земле, что хорошо видно по следам на мелком снегу (Формозов, 1952).
Для длиннохвостой неясыти характерна асимметрия слуховых проходов среднего и внутреннего уха, захватывающая кости черепа (Norberg, 1977). Это указывает на повышенные способности птиц этого вида к лоцированию звуков. Зрение их развито тоже очень хорошо. Доказано, что длиннохвостая неясыть способна с расстояния в 2-3 м разглядеть мёртвую мышь при минимальном освещении, то есть в состоянии охотиться и в ночное время, используя зрение (Lindblad, 1967).
Формула крыла и вырезки на опахалах — как и у других наших неясытей. Размеры птиц закономерно уменьшаются от западной к восточной границе ареала.
размах их крыльев достигает 1,3 м, длина крыла самцов (n = 24) — 342-368, в среднем 354 мм, самок (n = 26) — 357-382, в среднем 367 мм;
длина хвоста — 280-320 мм; общая длина 620-680 мм.
Птицы (по крайней мере, самцы) из Западной и Средней Сибири, а также из Якутии чуть мельче. Их вес: самцы (n = 8) — 560-712, в среднем 653 грамма, самки (n = 4) — 950-990, в среднем 960 грамм;
размах их крыльев обычно меньше 1,2 м,
длина крыла самцов (n = 39) — 328-354, в среднем 344 мм, самок (n = 72) — 334–368, в среднем 350 мм,
длина хвоста — 270-325 мм,
общая длина — 527-578 мм.
Минимальные вес и размеры имеют птицы с Дальнего Востока: самцы (n = 3) весят 625-635, в среднем 635 грамма, самки (n = 4) — 608-842, в среднем 702 грамма; размах крыльев — около 1,1 м, длина крыла самцов (n = 18) — 318-335, в среднем 329 мм, самок (n = 36) — 328-355, в среднем 334 мм, длина хвоста — 240-250 мм и общая длина — 480-525 мм.
Таким образом, практически по всем параметрам самцы длиннохвостой неясыти повсеместно в ареале заметно мельче самок, что видно и на глаз, особенно при наблюдениях у гнёзд.
Подвидовая систематика. Изменчивость носит клинальный характер и проявляется в степени насыщенности окраски и, отчасти, в размерах. В то же время оседлость этой совы в большинстве районов способствует закреплению этих признаков. В результате вид распался на 8-9 подвидов или географических форм (Vaurie, 1965; Степанян, 1975). Из них 4 подвида полностью или частично дислоцируются в пределах лесной зоны Восточной Европы и Северной Азии.
— Strix uralensis uralensis — Strix uralensis Pallas, 1771, Reise der vcrsch. Prov. Russ. Rcichs, 1. стр.455, Уральские горы. Наиболее светлая форма. Издали, на фоне тёмно-хвойника, птицы могут показаться почти белыми. Тёмные пятна на теле, как правило, малоинтенсивны по окраске, бурый тон в них слабо насыщен, а сами пятна занимают сравнительно немного места. Размеры максимальные. Этот подвид на востоке и, предположительно, в области Хангая, смешивается с Strix uralensis dauricus. То же, очевидно, происходит и в Забайкалье. В районах, примыкающих к Охотскому морю и 60° северной широты наблюдается интерградация с Strix uralensis nikolskii.
— Strix uralensis macroura — Strix macroura Wolf, 1810, Meyer und Wolf, Taschenb. deutsch. Vogelkunde , 1. стр.84, «горные леса Австрии». Общая окраска сравнительно тёмная, основной фон — светло-охристый. Тёмный рисунок на верхней и нижней сторонах тела развит относительно сильно, тёмные пятна более насыщенные, иногда почти чёрные и резко очерченные. Помимо обычной буро-серой окраски часть птиц окрашена особенно интенсивно, что позволяет говорить о явлении морфизма, аналог которого мы находим у серой неясыти, у которой это также особенно выражено у птиц из южных широт, например, Strix uralensis wilkonskii. Явление это для длиннохвостой неясыти исключительное. Отличает Strix uralensis macroura и сравнительная длинно-хвостостъ.
— Strix uralensis dauricus — Strix uralensis dauricus Stegmann, 1929, Ежегодн. Зоол. музея АН СССР, 29 (1928), стр. 181, Чита, Забайкалье. В серии птицы заметно темнее, чем Strix uralensis uralensis, хотя основной фон оперения и остаётся почти белым. Тёмный рисунок, особенно на верхней стороне тела, развит более сильно и занимает большую площадь. Пятна насыщенные, а на голове иногда и почти чёрные. Общие размеры, видимо, меньшие, чем у Strix uralensis uralensis. Эта форма в Забайкалье интерградирует с Strix uralensis uralensis, а на восточном рубеже — с Strix uralensis nikolskii.
— Strix uralensis nikolskii — Syrnium uralense nikolskii Buturlin, 1907, Journ. of Omith., 55, стр.ЗЗЗ, 335, Приморье. Из всех неясытей, встречающихся в Восточной Европе и Северной Азии, окраска этих птиц наиболее тёмная. Основной фон оперения белесый, иногда с заметным охристым оттенком. Тёмные пятна на верхней стороне тела развиты столь же сильно, как у Strix uralensis dauricus, но более коричневые, иногда с охристым оттенком. Размеры минимальные. Встречается от бассейне Зеи к востоку до Охотского побережья, Приморья и Сахалина. На Сахалине наряду с типичными Strix uralensis nikolskii, неоднократно добывались особи более светлые, явно гибридного происхождения, с признаками Strix uralensis uralensis. Их порой считают особой формой — Strix uralensis tatibanae (Howard, Moore, 1991). К северу птицы данного подвида доходят до 60-й параллели, к югу — до государственной границы России. Несомненно, в пограничных районах повсеместно интерградируют с Strix uralensis uralensis и Strix uralensis dauricus.
Замечания по систематике. Подвидовое деление птиц, населяющих отдельные районы Палеарктики, из-за недостаточности материала изучено ещё слабо. Например, ряд авторов (Дементьев, 1951; Mikkola 1983; и др.) полагают, что населяющий Западную Европу подвид Strix uralensis liturata заходит на Кольский полуостров, Северо-Запад России, в Архангельскую область, где птицы в значительной мере перемешиваются с подвидом Strix uralensis uralensis. Кроме того, из последнего нередко выделяют средне-сибирских и якутских птиц в самостоятельные подвиды — Strix uralensis yenisseenis и Strix uralensis buturlini, реальное существование которых многими орнитологами ставится под сомнение. Заметим, что только благодаря специальным исследованиям (Eck, Russe, 1973) получено, наконец, подтверждение реальности третьего европейского подвида — Strix uralensis macroura (синоним: Strix uralensis carpatica), представители которого локализируются в горных лесных районах Центральной Европы.
Г.П. Дементьев (1951), специально интересовавшийся птицами Забайкалья, отмечает, что большинство из них трудноотличимы от приморских Strix uralensis nikolskii, и, соответственно, реальность Strix uralensis dauricus ему представляется сомнительной. С биогеографической точки зрения здесь налицо случай проникновения манчжурского фаунистического элемента в восточном Забайкалье, что, в общем, нередко встречается и у других видов.
Локализованные на Японских островах расы принимают в качестве подвидов Strix uralensis hondoensis, Strix uralensis momiyamae, Strix uralensis fuscensens и Strix uralensis japonica (Dickinson, 2003), но расу с острова Хоккайдо Strix uralensis japonica (иногда к ней предположительно относят и южно-курильских птиц) порой объединяют с птицами из Приморья, Маньчжурии и Кореи под именем Strix uralensis coreensis (Howard, Moore, 1991). Нет единого мнения по поводу хорошо отличающейся от всех рас длиннохвостой неясыти изолированной формы, обитающей в горных лесах Западной Сычуани. Её считают либо подвидом длиннохвостой неясыти — Strix uralensis davidi (по: Dickinson, 2003), либо самостоятельным видом — неясытью Давида или сычуаньской неясытью Strix davidi (Sharpe, 1875) (по: Howard, Moore, 1991; Marks et al., 1999).
Суточная активность, поведение. По характеру суточной активности длиннохвостая неясыть как бы занимает промежуточное положение между серой и бородатой неясытями. Весной и летом максимум её деятельности — поимка и принос корма птенцам, брачная активность и пр. — приходится на глубокие сумерки (на широте Санкт-Петербурга — на время с 20 до 23 часов), затем наступает явный спад деятельности, после чего совы активизируются вновь лишь в предрассветных сумерках (с 4 до 8 часов). Наряду с этим, особенно в пасмурную погоду, эту птицу изредка можно увидеть охотящейся и днём. Однако так поступают далеко не все особи и делают они это нерегулярно. Иногда дневную активность может провоцировать и изобилие корма. Такое наблюдается, например, в уссурийской тайге при массовом размножении крупной и сравнительно малоподвижной дальневосточной полёвки (Microtus fortis).
Птенцы и слётки, судя по издаваемым ими крикам, наиболее активны и подвижны в первую половину ночи, что объясняется повышенной степенью голода после продолжительного дневного отдыха.
Живёт длиннохвостая неясыть отдельными, видимо, постоянными парами, слабо контактирующими одна с другой. В летне-осеннее время в местах концентрации мышевидных грызунов охотничьи участки семей несомненно перекрываются. Серьёзных конфликтов при этом не наблюдается. Слабо выражена и межвидовая конкуренция с другими хищными птицами. Так, эти совы прекрасно сосуществуют на одном участке с хозяевами гнёзд, которые они занимают. Мы уже упоминали о нахождении смешанной кладки длиннохвостой неясыти и тетеревятника. В Скандинавии известны случаи одновременного гнездования в небольшом перелеске, в 300 м друг от друга, длиннохвостой и серой неясытей (Pihlainen, 1977). Аналогичный случай отмечен в парке Старого Петергофа (Ленинградская обл.). Правда, есть указания, что длиннохвостая неясыть, как более сильная, присваивает гнезда серой неясыти и мохноногого сыча (Haartman et al., 1967). По-видимому, всё дело в наличии или отсутствии свободных мест для гнездования. В уссурийской тайге, например, где дупел в большинстве случаев с избытком, в гнездовой период длиннохвостая неясыть сосуществует бок о бок с рыбным филином, бородатой неясытью, иглоногой совой и уссурийской совкой, причём все они на этих «коллективных» участках размножаются нормально.
В литературе описаны и уникальные случаи сожительства этой совы с другими птицами. Так, в Финляндии, в одной из дуплянок с небольшим летком поселился мохноногий сыч, а на крыше этого гнездовья отложила яйца и начала насиживание длиннохвостая неясыть (Lagerstrom, 1978). В другом случае, произошедшем в Норвегии, большой крохаль поселился в дупле старой осины, в то время как чуть выше, в соседней нише, находилось гнездо длиннохвостой неясыти (Mysterud, 1969). Всё это свидетельствует о достаточно «мирном» нраве этой совы. И тем удивительнее, что изучавший её поведение в Западной Европе X. Миккола (Mikkola, 1983) считает её весьма агрессивной (такой же, как и серая неясыть) по отношению к другим, более мелким хищникам, оказавшимся на её участке. Обнаруженную днем длиннохвостую неясыть «окрикивают» как мелкие воробьиные птицы, так и врановые. Не пролетают мимо обнаруженной совы и мелкие хищники — пустельга, чеглок и другие — они с громкими тревожными криками пикируют на неё.
Враги, неблагоприятные факторы. Специализированных врагов в природе не имеет. Сообщается о единичных случаях гибели этих сов, ставших добычей других, более сильных хищников — беркута, орлана-белохвоста, тетеревятника (Mikkola, 1983) и филина (Нечаев, 1985). На севере Новосибирской обл. в 1960-х годы имели место факты отравления птиц при поедании ими грызунов, погибавших от приманок, обработанных фосфидом цинка. В густонаселённых районах, несмотря на существующий запрет, длиннохвостые неясыти нередко попадают под выстрелы браконьеров.
На Дальнем Востоке, в районе заповедника «Кедровая Падь», на морском побережье, особенно в голодные годы, нередко находят крайне истощённых птиц, теряющих осторожность и неспособных к уверенному полёту (Литвиненко, Шибаев, 1971). Длиннохвостая неясыть чаще, чем остальные виды сов, попадает в капканы, поставленные на норку и соболя.
Хозяйственное значение, охрана. Необходима действенная пропаганда в защиту этой совы от браконьеров. В районах, где леса подверглись заметному омолаживанию и старые дуплистые деревья стали редкостью, где к тому же упала численность пернатых хищников, способных предоставить этой сове удобные для размножения гнезда, следует, по примеру финских, шведских и норвежских любителей природы организовать развешивание искусственных гнездовий. Хороший результат при этом дают долблёные полые чурбаны диаметром 30-40 см и высотой 50-60 см. Совы проникают в такие дуплянки через открытый верх. Последний иногда делают неровным, как бы напоминающим естественный слом ствола (Hagen, 1968). Искусственным гнездовьем может служить и аналогичных размеров ящик, сколоченный из грубых толстых досок (Lanti, 1972). В этом случае леток делается либо прямоугольным во всю верхнюю четверть передней стенки, либо там же, наверху, но округлый, диаметром около 15 см. Искусственные гнездовья лучше всего занимаются, если они развешены в разреженном высокоствольном лесу вблизи опушки (но не по опушкам), на высоте 4–5 м от земли.
Длиннохвостая неясыть занесена в Красные книги Украины, Беларуси, Латвии, Эстонии, а в Российской Федерации — в Красные книги Брянской, Московской, Рязанской, Тамбовской, Тверской, Мурманской, Кировской, Новосибирской, Магаданской областях, Республики Коми, Татарстана и Бурятии.
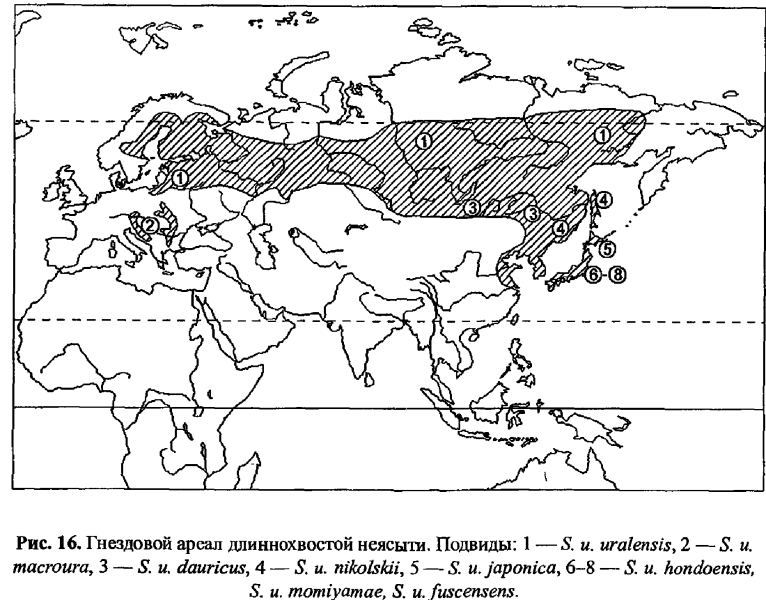
В Восточной Европе и Северной Азии северная граница проходит от Прибалтики и Кольского полуострова (68-69° северной широты) к Архангельску, затем по 65–66-й параллели, Зап. Сибири (до 63° северной широты), бассейн Енисея (66° северной широты), водоразделам Яны и Колымы (67° северной широты); южная граница идёт по Беларуси (53° северной широты), восточнее — по 55-й параллели, долине Самары, Южному Уралу, Тюменской области, по 56-й параллели до Алтая и далее уходит южнее государственной границы. Изолированные поселения охватывают Карпаты. Обычна эта птица на Сахалине и, возможно, гнездится на Южных Курильских островах — Кунашире и Итурупе (рис. 15).

На европейской территории России в последние 2-3 десятилетия отмечается смещение ареала вида в юго-восточном и южном направлении. Длиннохвостая неясыть стала обычной во многих районах Подмосковья (Волков и др., 1998), найдена на гнездовании в Окском заповеднике в Рязанской области (Бобков, 1998), хотя раньше здесь отсутствовала.
Вне Восточной Европы и Северной Азии — Польша, Финляндия, Скандинавский полуостров, Монголия, Китай, Япония, Корейский полуостров. Изолированные поселения в Карпатах, к югу до Трансильванских Альп, в Богемском лесу, Штирии, Каринтии и в горных областях Словении до Сев. Албании (рис. 16).
В большинстве северных районов Европы основной биотоп вида — елово-сосново-берёзово-осиновый лес (Пукинский, 1977). В Подмосковье длиннохвостая неясыть населяет различные лесные формации: сложные ельники, смешанные леса с преобладанием мелколиственных пород, сырые и заболоченные леса разного состава (Волков и др., 1998). В Сибири она населяет елово-пихтовые леса с примесью берёзы, лиственницы и других пород, а также горные ельники и кедрачи (Кисленко, Наумов, 1972). На Дальнем Востоке, в Уссурийском крае эта сова предпочитает кедрово-широколиственную тайгу, а также смешанные леса с преобладанием тёмно-хвойников, которые здесь обычны по логам (Воробьёв, 1954; Спангенберг, 1965). Реже птицы поселяются в горных дубняках и других вторичных древостоях.
На Сахалине гнездование этой совы отмечено в пихтово-берёзовых лесах (Гизенко, 1955), однако по более поздним наблюдениям (Нечаев, 1991), эта сова населяет здесь более широкий спектр биотопов. На полуострове Крильон — долинные ивово-ольховые леса с тополем и отдельными хвойными деревьями, разреженные тёмно-хвойные и хвойно-каменно-берёзовые леса на горных склонах, реже бело-берёзовые леса. В долинах рек Поронай, Тымь и Айнская эта неясыть встречается в долинных ивово-черёмухово-ольховых лесах с тополем Максимовича, ильмом долинным, в разреженных тёмно-хвойных и лиственничных лесах. В долине реки Вал птицы встречены в лиственнично-бело-берёзовых и лиственничных лесах с кедровым стлаником. Несколько неожиданный биотоп занимает этот вид в Карпатах. В отличие от серой неясыти, которая тут нередко населяет смешанные ельники, длиннохвостая неясыть обитает в буковых лесах, поднимаясь в горы до 1 100 — 1 200 метров над уровнем моря (Страутман, 1954). Однако и здесь эта птица отдаёт предпочтение разреженным древостоям.
Если в прежние годы длиннохвостая неясыть обитала, как правило, вдали от человеческого жилья, то в последнее время её гнезда чаще находят и в населённой местности. Особенно это характерно для птиц, обитающих в Европе, где теперь известны многочисленные случаи размножения длиннохвостой неясыти вблизи посёлков, использования ею для гнездования искусственных, дуплянок и даже хозяйственных построек (Mikkola, 1983; и др.).
О рационе этой совы судят по наблюдениям за охотящимися птицами, остаткам пищи, собранным у гнёзд, и погадкам. Последние нередко содержат остатки сразу 2-3 и даже 4 жертв. Сколь различна пища этой совы, столь разнообразны по величине и её погадки: средние размеры минимальных — 6,2 × 2,4; максимальных — 12,7 × 2,5 см. Отрыгиваются погадки, по-видимому, по одной в сутки, и совсем не обязательно в местах дневного отдыха. Мы нередко находили погадки под присадами на охотничьем участке. Здесь они могли появиться, скорее всего, в ночные часы.
Основными охотничьими угодьями этим совам служат лесные опушки, края вырубок и гарей, разреженные участки леса. Здесь совы, сидя на присаде, подкарауливают свои жертвы, схватывая их, как правило, с земли. Реже птица, скользя бесшумно и легко в 2-4 м над землёй, неторопливым полётом «инспектирует» угодья, готовая в любой момент сделать резкий поворот через крыло и с выставленными вперёд обеими лапами с широко раскрытыми пальцами спикировать на замеченную добычу.
О характере пищевых связей длиннохвостой неясыти можно судить по следующим данным. На Северо-Западе России в гнездовой сезон, в годы массового размножения полёвок, в пище сов последние, наряду с другими мышевидными грызунами и землеройками, составляют более 95 % (по 138 наблюдениям за 1965-1988 годов). В годы, сравнительно бедные мышевидными грызунами, судя по 46 наблюдениям, эти совы весной и летом добывали: 21 раз полёвок, 14 — землероек, 2 — крота, 2 — жёлто-горлых мышей, 2 — белок и 6 раз птиц (бекаса, свиристеля, лесного конька и других мелких воробьиных). В осенне-зимний период здесь же и в те же годы из 42 раз совы чаще всего охотились на водяных и пашенных полёвок, кротов и землероек, добывались также 3 раза белки, 1 — тетёрка (12 января). Кроме того, отмечен факт питания глухаркой, к которой сова прилетала три дня подряд (Мальчевский, Пукинский, 1983). В соседних частях ареала (в Финляндии, Швеции, Норвегии, Германии), по данным X. Миккола (Mikkola, 1983), обобщившего материалы разных авторов за 1929-1978 годы, пища длиннохвостой неясыти состоит из мелких млекопитающих (79,2 %), из которых на долю различных полёвок приходится около 60%. Птицы составили 14,6 %, лягушки — 4,4 %, насекомые — 1,7 %. В осенне-зимнее время рацион сов оставался примерно тем же: мелкие млекопитающие составили 72,4 %) (при этом чуть чаще отлавливались землеройки), возросла доля альтернативных кормов. Птицы в осенне-зимний сезон составили 10,6 %, лягушки — 9,7 %, насекомые — 7,3 %.
Сходный рацион имеет длиннохвостая неясыть и за Уралом, в Западной Сибири (Кисленко, Наумов, 1972). Здесь в 7 желудках были обнаружены остатки 19 полёвок и мышей, 8 землероек и 2 рябчиков.
В Хабаровском крае весной, в период глубокой депрессии численности мышевидных грызунов, в желудках двух добытых сов были обнаружены остатки даурской галки, сибирского жулана, двух седоголовых овсянок, а также живородящая ящерица, 8 жуков-навозников, 17 жужелиц и ещё 2 не определённых насекомых (Кисленко, 1967).
В уссурийской тайге и других районах Дальнего Востока пища длиннохвостой неясыти может быть особенно разнообразной (Воробьёв, 1954; Гизенко, 1955; Спангенберг, 1965; Нечаев, 1979; наши данные, полученные в бассейне Бикина и других районах Приморья). Так, в годы массового размножения мышевидных грызунов, в частности дальневосточной полёвки, из 400 случаев, относящихся преимущественно к бесснежному периоду и в меньшей мере к зиме, рацион этой совы состоит на 85% из мышевидных грызунов и на 9 % из землероек-бурозубок, 4 % приходится (в порядке убывания) на лягушек, рептилий и различных крупных насекомых, преимущественно жуков и прямокрылых, и только 2 % — на птиц. Из последних совами добывались: рябчик, белая куропатка, сорока, сойка, кедровка, полевой воробей, длиннохвостая синица, сутора, поползень, овсянки, дрозды. Причём большинство из перечисленных птиц были добыты во вне-гнездовой сезон. В годы, бедные на полёвок, в тёплый период на Дальнем Востоке в питании этой совы заметно увеличивается доля лягушек и насекомых, а в холодное время — белки, летяги, а также птиц.
Бескормица нередко заставляет длиннохвостых неясытей, особенно молодых, откочёвывать к населённым пунктам и свалкам, где их основной добычей становятся серые крысы и воробьи. Появившись осенью, например, в пригороде Новосибирска, эти птицы из ночи в ночь начинают совершать налёты на места ночёвок врановых (серых ворон, грачей, галок), регулярно собирая здесь дань (Хроков, Кошелев, 1985). Все эти факты полностью согласуются с данными по питанию этой неясыти в Японии (Имаидзуми, 1968; Shigeri, 1977).
Таким образом, основной корм длиннохвостой неясыти — безусловно, мышевидные грызуны. Лишь при отсутствии последних сова начинает охотиться на других животных, которые и в этом случае занимают второстепенное место в её рационе. В годы обилия мышевидных грызунов неясыть иногда устраивает кормовые запасы, складывая тушки зверьков в развилки ветвей, с тем, чтобы использовать их в период отдыха (Шибнев, 1984).
Весной признаки брачного возбуждения птиц почти повсеместно можно наблюдать уже в конце февраля — начале марта, когда снег в лесах в большинстве районов ещё лежит сплошным покровом. Даже на севере ареала, например, на Карельском перешейке, в эти сроки возбуждённые самцы могут призывно кричать до часу и более подряд. Чаще всего они подают голос в густых вечерних сумерках, но бывает, что подолгу кричат ночью и перед рассветом. Их голосовая активность, начавшись задолго до откладки яиц, постепенно нарастает и достигает апогея к моменту спаривания, а затем почти не снижается вплоть до начала вылупления птенцов. В это время по ночам возбуждённые совы могут подлетать к ярко горящему костру, и, невзирая на присутствие людей, подолгу кричать, усевшись поблизости. При этом их брачные крики часто чередуются с «лаем».
Максимум голосовой активности весною, естественно, наблюдается в пределах гнездовых участков. Размеры последних у этих птиц, по-видимому, больше, чем у серой неясыти, и, судя по максимальным плотностям поселения (например, в Ленинградской обл. и в Уссурийском крае), составляют 400-500 га. В этих пределах со всех точек при подманивании голосом самец в разгар тока тут же отвечает и подлетает. Подманивание с большей дистанции, хотя и может заметно активизировать вокализацию, тем не менее не является эффективным.
Отложить яйца эта сова может в самых различных местах. В тайге северного типа, например, на Северо-Западе России, она нередко (в трети случаев) использует для этого гнёзда тетеревятника, которых часто оказывается несколько на участке совы (Мальчевский, Пукинский, 1983). При этом, не покидая выбранной территории, сова использует то одну, то другую гнездовую постройку, в зависимости от того, какая из них свободна в данном сезоне. В Финляндии даже нашли смешанную кладку этих видов, правда, успеха в размножении здесь длиннохвостая неясыть не имела (Mikkola, 1983).
В северных районах яйца нередко откладываются и в старые гнёзда канюков, осоедов, больших подорликов. Реже используются более мелкие веточные гнёзда. Известен случай откладки яиц на полуразвалившееся, ставшее плоским, гнездо белки. По-видимому, подходящие гнезда присматриваются совой ещё с осени, о чем можно судить по регулярному посещению их в это время: здесь птицы нередко днюют, оставляя следы и свежие пушины.
В сильно захламлённых таёжных лесах примерно 10 % гнёзд (n = 114) оказываются помещёнными в старых, замшелых, прогнивших пнях осин, сосен и елей, и во всевозможных нишах-полудуплах на них. Гнездование в истинном дупле на севере ареала нам известно всего в двух случаях — в парке Старого Петергофа (Ленинградская область) и в пойменном разнолесье с примесью широколиственных пород на берегу Чудского озера (Псковская область). При использовании ниш в пнях длиннохвостая неясыть, видимо, никогда не устраивается открыто сверху, как это характерно для бородатой неясыти, а располагает своё гнездо внутри укрытия. Высота таких гнёзд над землёй — 0,8-9 м, в среднем около 4 м. Диаметр используемых ниш — 25-45 см, глубина — от 0 до 1 м, минимальная высота — 35-45 см, но чаще она оказывается много большей, или гнездовая ниша вообще не имеет потолка. На участках с массой бурелома около 3 % птиц гнезда устраивают на земле под прикрытием валяющихся здесь стволов, выворотней или низко свисающих еловых лап. В.Г. Воронов на Сахалине нашёл гнездо этой совы на кочке среди густого пихтово-берёзового леса (Гизенко, 1955). По наблюдениям, относящимся к прошлому веку (Богданов, 1871), гнездо этой совы может быть устроено и в расщелинах песчаника по склонам лесных оврагов. В Финляндии, помимо случаев гнездования на деревьях и в пнях, эта сова гнездится иногда в нишах скал и совершенно открыто — на вырубках и среди угнетённого сосняка на моховых болотах (Mikkola, 1983).
Совсем иначе, выбирая место для гнездования, ведёт себя длиннохвостая неясыть в южных и юго-восточных районах — там она является настоящим дуплогнездником, поселяясь преимущественно в дуплах. Такой способ гнездования характерен для неё в Карпатах, а также на юге Хабаровского края и в уссурийской тайге. На Сахалине 8 из 9 гнёзд находились в дуплах деревьев (Нечаев, 1991).
Описывая гнездовую пластичность длиннохвостой неясыти, нельзя обойти молчанием проведённые в скандинавских странах в последние десятилетия эксперименты по привлечению её в искусственные дуплянки. Оказалось, что при наличии последних, стремление к дуплогнездничеству проявляется ею достаточно чётко и постепенно начинает превалировать. Именно в районах, где развешиваются дуплянки, птицы, выведшиеся из них, при недостатке последних скорее склонны узурпировать малопригодные ниши серой неясыти или даже мохноногого сыча, нежели гнездиться открыто. Такое поведение в последние 30–40 лет становится в Европе всё более обычным (Mikkola, 1983). Всё это указывает на то, что длиннохвостая неясыть, безусловно, изначальный дуплогнездник. Использование же для откладки яиц гнёзд хищных птиц, а также различных полу-дупел и возможность открытого гнездования свидетельствует о большой пластичности вида, что в конечном счёте позволило ему колонизировать огромную территорию, где крупные дупла редки. Более того, в этом случае правомерно предположить, что генеральное направление экспансии было с юго-востока на северо-запад (Voous, 1960; Vaurie, 1965) и, возможно, эта экспансия ещё продолжается.
Яйца в большинстве районов откладываются в конце марта — апреле. Имеются наблюдения (Linkola, Myllymaki, 1969), что обилие и доступность корма может вызвать более раннее размножение. По наблюдениям на Северо-Западе России (Пукинский, 1977), кладка обычно происходит примерно за месяц до интенсивного таяния снега. В этом случае птенцы появляются в пору максимальной доступности мышевидных грызунов (когда талая вода вынуждает зверьков перемещаться на поверхность, а ещё не поднявшаяся зелень не мешает их отлову). Размножение в целом протекает дружно, в единые сроки, хотя и бывают отдельные аномалии: так, в сентябре 1973 года из пригорода в Ленинградский зоопарк был доставлен пуховой птенец, который, естественно, появился на свет где-то летом. Возможно, он происходил из повторной кладки, которые у этого вида могут возникать взамен погибшей. На возможно большую растянутость размножения этой совы указывает и Ф. И. Страутман (1963), изучавший птиц в западных областях Украины.
Приступая рано к откладке яиц и гнездясь во многих случаях открыто, самка заранее вынуждена готовить гнездо: она разгребает снег и подолгу «насиживает» лоток, добиваясь его просушки и прогревания. Обычно к таким действиям она прибегает за неделю до начала кладки. Уже в это время самец доставляет ей корм на гнездо. С появлением в гнезде первого яйца самка практически не прерывает насиживания более чем на 3-5 мин. Судя по темпам вылупления птенцов из одной кладки, яйца откладываются по одному в ночь.
Полная кладка на севере европейской части — обычно 3-4 яйца, редко 2 или 6. В Западной Сибири, по старым наблюдениям, 2-3, редко 1 (Богданов, 1871; Рузский, 1891). В Северной Финляндии, по последним данным, в полной кладке может быть от 1 до 7 яиц, в среднем 3,9; в Южной Финляндии и Швеции — в среднем 3,0 (Mikkola, 1983). Величина кладки напрямую зависит от кормности года. По результатам исследований в Финляндии в 1977-1988 годах (Pietiainen, 1988, 1989), в благоприятные в кормовом отношении годы к гнездованию приступают до 75% пар местной популяции, в годы депрессии численности основных видов жертв — только 21 %. При этом средняя величина кладки варьирует от 2,2 яиц в годы бескормицы, до 3,98 яиц в благоприятные сезоны. Средняя величина выводков различается ещё значительнее: 0,32 слётка на пару в годы бескормицы и 2,11 слётка на пару в годы с высокой численностью мышевидных грызунов. В наиболее голодные годы большая часть птиц не приступают к откладке яиц вообще.
С появлением яиц в гнезде птицы, особенно самка, принимаются ревностно охранять его, смело нападая вблизи гнезда даже на человека. За такую повадку в Швеции эту сову прозвали в народе «slaguggla», что значит «атакующая». Нам известен случай, когда в уссурийской тайге эта сова неожиданно вцепилась в лицо человеку, спокойно сидевшему на лабазе в ожидании подхода к солонцу изюбря. Причиной нападения явилось то, что на дерево, где затаился охотник, перепорхнул слёток. Натуралистами отмечается также, что после напряжённых атак эта сова на какое-то время впадает в своеобразную депрессию, и может показаться, что она вдруг начинает дремать (Otto, Sprunck, 1967). В промежутках между атаками самка временами изображает «нерешительность»: птица принимает подчёркнуто вертикальную посадку, вытягивает шею, периодически прикрывает то одно веко, то другое, иногда ненадолго отворачивается, демонстрируя затылок, и приспускает неплотно прижатые крылья так, что концы их перекрещиваются. В это же время для отвлечения внимания самка применяет и необычный демонстративный отлёт от гнезда, рассчитанный побудить врага к преследованию.
Размеры яиц (n = 9) с Сахалина несколько крупнее: 49-54 × 40-45, в среднем — 51,27±0,5 × 41,83±0,5 мм (Нечаев, 1991). По материалам из Западной Палеарктики, размеры яиц длиннохвостой неясыти (n = 24) варьируют в пределах 47,5-54,7 × 41,0-43,0, в среднем — 51,12 × 42,24 мм (Makatsch, 1976). Продолжительность инкубации — 27-29 дней. В Ленинградской области в двух гнёздах инкубация продолжалась 28 и 29 суток.
Однодневные птенцы весят 40-42 грамма (Mikkola, 1983). До 14-дневного возраста самка почти постоянно обогревает их, находясь на гнезде и днем, и ночью. В это время корм семье по-прежнему доставляет лишь самец. Передача добычи происходит, как правило, вне гнезда: подлетая, самец ещё издали извещает голосом самку, та устремляется к нему навстречу и забирает трофей. Однако к концу второй недели начинает охотиться и самка. Корм доставляется преимущественно с 20 до 23 часов (в среднем 4,5 прилёта к гнезду с двумя 14-дневными совятами), сравнительно редко в промежуток времени от 23 до 4 часов (1,5 раза) и опять более часто с 4 до 8 часов утра — 3,5 раза (Мальчевский, Пукинский, 1983). Отмечается также, что число прилётов в сутки, помимо условий охоты, зависит и от величины выводка: чем больше птенцов, тем чаще прилёты (Mikkola, 1983; Korpimaki, Huhtala, 1986).
К двухнедельному сроку окончательно устанавливается величина выводка, который, например, в Ленинградской обл., редко содержит больше 2-3 птенцов. Гибель обычно происходит из-за недостатка корма для младших совят. Последние погибают и в результате каннибализма. Их остатки вместе с кольцами, которыми их метили, находили в погадках как старших птенцов, так и самок.
В возрасте 24–28 суток птенцы длиннохвостой неясыти, способные разве что перепархивать с ветки на ветку внутри кроны, покидают гнезда. Особенно рано это делают птенцы, выросшие в открытом гнезде — они обычно выбираются на соседние ветки в возрасте 24–25 суток. Из дупел совята чаще выходят на 26-28-е сутки. Во всех случаях младшие птенцы покидают гнездо в более молодом возрасте. Вылет птенцов провоцирует их беспокойство и недостаток пищи. В это время наиболее крупные из совят (самки) весят около 600 граммов, наиболее мелкие (самцы) — чуть более 500 граммов. В гнезде до самого последнего момента соблюдается чистота — самка поедает или выносит все остатки (Korpimaki, Sulkava, 1987).
По поведению, гримасам, принимаемым позам птенцы и слётки всех неясытей схожи. Обращает на себя внимание разве что сравнительная молчаливость молодых длиннохвостых неясытей. Лишь покинув гнездо, они более или менее регулярно начинают хрипло взвизгивать в ожидании приноса корма. На гнездовом участке выводок держится почти месяц. С первых же дней жизни вне гнезда совята днюют рассредоточено.
В возрасте 45-50 дней выводок уже широко кочует по охотничьему участку родителей. В это время можно наблюдать уже и самостоятельную охоту совят. В возрасте примерно 70-80 суток молодёжь, по-видимому, переходит к самостоятельной жизни, и выводок распадается. Происходит это незаметно — птенцы оставляют родителей по одному. Случается это обычно в конце июля — начале августа.
Полёт длиннохвостой неясыти плавный, с глубокими взмахами крыльев и практически бесшумный. Она редко взмывает вровень с кронами, предпочитая неторопливый дрейф в 3-4 метрах от земли. При этом, по характеру движений эта сова напоминает канюка или осоеда, перелетающего от одной присады к другой. В полёте, помимо светлой окраски, от других неясытей этот вид отличается тем, что держит тело не горизонтально, а наклонно, несколько опустив заднюю его часть, и это особенно заметно благодаря длинному хвосту.
Будучи несомненно лесной птицей, для охоты длиннохвостая неясыть предпочитает открытую местность — опушечные луговины, вырубки, гари, нередко посещает лежащие вблизи леса сельскохозяйственные угодья, зарастающие пустоши и тому подобном.
Деятельна в сумерки и ночью, изредка охотится днем, особенно в солнечную погоду.
Характерной особенностью брачной вокализации, по крайней мере в Березинском заповеднике (Беларусь), является парное пение самца и самки, которое отмечается там в каждом пятом случае регистрации голоса этих птиц весною (Тишечкин, 1986).
Миграции. Как и большинство сов, длиннохвостая неясыть — оседлая птица. Причём взрослые особи остаются на своих участках и в малокормные годы. В последнем случае, например на Северо-Западе России, до четверти местного населения могут не участвовать в размножении, но все птицы, в том числе и неразмножающиеся, строго придерживаются гнездового участка, и в течение всего весенне-летнего сезона их нетрудно обнаружить, имитируя брачные крики. Строгая территориальная привязанность к участку не мешает этой сове в отдельные годы использовать для гнездования разные места — попеременно откладывать яйца в одну из нескольких гнездовых построек, например, тетеревятника (Мальчевский, Пукинский, 1983). В Ленинградской обл. известны случаи постоянного функционирования гнездового участка в течение 5-8 лет, в Уссурийском крае — 4 лет; оседлость этой птицы отмечена в Архангельской обл. (Паровщиков, Севастьянов, 1960). В Финляндии в течение 18 лет, видимо, одной и той же парой занималась естественная ниша в старой берёзе, росшей вблизи фермы (Mikkola, 1974), в Норвегии пара птиц использовала определённый гнездовой участок более 20 лет (Hagen, 1968).
Наряду с вышеприведёнными фактами имеются указания, что в отдельных частях ареала, например в Приморье, эта сова из основных своих стаций — пойменной кедрово-широко-лиственной тайги — в годы массового размножения грызунов в соседних биотопах нередко выселяется в самые разнообразные леса, включая липово-широко-лиственные — даже светлые вторичные дубравы на склонах сопок (Назаренко, 19716). Нечто подобное наблюдали в 1969 году на реке Бикин (Пукинский, 1977). Описаны случаи смены биотопов в зависимости от характера распределения мышевидных грызунов и для Красноярского края: в 1965 году там, в окрестностях с. Майны, совы в основном размножались в сосново-лиственных лесах, но на следующий год они почти всё переместились в горы, где в кедровниках мышевидных грызунов оказалось много больше, и где изобиловала в тот год горная пищуха (Кисленко, Наумов, 1972). Но никем ещё не доказано, участвуют ли в подобных дислокациях старые особи, а посему эти наблюдения не могут пока изменить наши представления о степени территориального консерватизма длиннохвостой неясыти.
Внимание орнитологов издавна приковывалось к осенне-зимним перемещениям этих птиц. О них сообщали ещё Е.А. Бихнер и Ф.Д. Плеске (Buchner, Pleske, 1881), а также М.А. Мензбир (1895). Отмечалось, например, что во внегнездовое время, преимущественно осенью и зимой, эти совы особенно часто встречаются возле поселений человека — в парках вблизи населённых пунктов и даже в городах. Такую картину можно наблюдать и в настоящее время, причём повсеместно. При этом имеются свидетельства (Нечаев, 1979), что эти птицы к марту, как правило, исчезают — видимо, отлетают к местам гнездовий. К подобным перемещениям особенно склонны западносибирские птицы, которых в холодное время года добывали у Красноярска, в низовьях Волги и Урала, в окр. Оренбурга и Кирова (Дементьев, 1951). На осенние кочёвки, свойственные этому виду на Дальнем Востоке, указывает и КА. Воробьёв (1954), в течение многих лет наблюдавший птиц в Уссурийском крае. Сходно ведут себя птицы и в горах Карпат, где сравнительно регулярно в период осенне-зимних кочёвок они спускаются с гор и появляются в Волыно-Подолии и Закарпатской равнине (Страутман, 1963). Однако и в этих случаях опять же остаётся неясным возрастной состав участников кочёвок. Скорее всего, здесь мы имеем дело с птицами, ещё не выбравшими себе гнездовой участок.
Оседлость длиннохвостой неясыти доказана в Финляндии, где в 1970-х годах было окольцовано свыше 4 000 особей (Saurola, 1978). Из них лишь несколько птиц были встречены далее 20-30 км от гнезда. При этом взрослые особи обычно не удалялись от него более 2-3 км. Предел дисперсии молодняка здесь — 200 км.
Сравнивая неясытей между собой, можно отметить, что длиннохвостая неясыть, видимо, менее оседла, чем серая, но более — чем бородатая.
Можно отметить также, что разгар этой линьки у длиннохвостой неясыти приходится не на гнездовой период (как это наблюдается у многих других крупных сов), а на время вождения выводка. Об этом свидетельствует и то обстоятельство, что под жилыми гнёздами её очень редко находятся выпавшие контурные перья, а также рулевые и маховые. В октябре же все известные нам особи оказывались в свежем, доросшем пере.
Подробнее о сокращениях можно прочесть здесь.
Песня
…
Позывка
…
Электроманок
…
Литература
• «Птицы Советского Союза». Дементьев Г.П., Гладков Н.А., Исаков Ю.А., Карташев Н.Н., Кириков С.В., Михеев А.В., Птушенко Е.С. Под общей редакцией Г.П. Дементьева и Н.А. Гладкова. Изд. «Советская наука» Москва. 1952 г. том 4. стр. .
Литература
• Коблик Е.А. 2025. Фауна птиц стран Северной Евразии в границах бывшего СССР: Списки видов.
• IOC World Bird List v15.2 (Updated April 13, 2026 with version 15.2) by Frank Gill, David Donsker & Pamela Rasmussen.
• Н.Н. Балацкий. Птицы Северной Евразии. Таксономический список: август 2023 г.
• «Птицы России и сопредельных регионов: Совообразные, Козодоеобразные, Стрижеобразные, Ракшеобразные, Удодообразные, Дятлообразные» т.6. Бутьев В.Т., Зубков Н.И., Иванчев В.П. и др. Москва. Товарищество научных изданий КМК. 2005 г. стр. 72-85.
Сайты
• zmmu.msu.ru
• www.balatsky.ru
• www.worldbirdnames.org
• сайт Василия Вишневского
• www.xeno-canto.org
• www.featherbase.info, www.pbase.com, www.macaulaylibrary.org