

Пространственная структура, выражающаяся в особенностях распределения отдельных особей или их группировок по территории, – важная характеристика при родных популяций. Характер пространственной структуры во многом опреде-
ляется видоспецифичными особенностями территориального поведения. У перелетных птиц к таким особенностям могут быть отнесены требования к величине гнездового участка, особенности занятия территории в весеннее время, возможность внутрисезонных смен территории, межсезонное постоянство территориальных связей (натальная и гнездовая филопатрия).
Среди обширной орнитологической литературы относительно немного работ, в которых поведение и пространственная структура популяций изучались в сравнительном аспекте на примере близких видов. Вместе с тем, такие исследования могут пролить свет на вероятные пути их эволюции. Очень важны такие работы для понимания процессов динамики ареалов и структуры популяций расселяющихся видов птиц, поскольку решение вопроса о предпосылках любых существенных изменений области распространения вида не может быть полноценным без анализа особенностей его территориального поведения. Подобная проблематика была проанализирована нами на примере двух представителей семейства дроздовых, лугового Saxicola rubetra (Linnaeus, 1758)) и черноголового Saxicola torquata (Linnaeus, 1766) чеканов. Оба вида достаточно сходны по своим экологическим особенностям и на территории Северовосточной Украины входят в состав сообществ птиц лугов и луговых степей. Однако луговой чекан – более многочисленный вид, нередко выступающий в роли доминанта в этих сообществах.
Черноголовый чекан (численность которого обычно почти на порядок меньше, чем у предыдущего вида) относительно недавно расширил свой ареал в Европе и в Украине, распространяясь в северном и северо-восточном направлениях. Важно также подчеркнуть, что черноголовый чекан – полицикличный вид, у которого бывает две нормальные кладки в году. У лугового чекана – только одна нормальная кладка, но значительная часть птиц, потерявших кладки или птенцов, приступает к повторному размножению.
Целью данного исследования было выявление особенностей территориального поведения двух видов чеканов, а его результаты могут быть использованы для анализа факторов, ответственных за формирование жизнеспособных популяций черноголового чекана в тех областях, где еще недавно был распространен только луговой чекан.
Материал и методы исследований
Исследования проводили в 1992–2003 гг. на постоянном участке в пойме р. Муром в Харьковском р-не Харьковской обл. Площадь стационара составляет около 440 га. На этой территории ежегодно гнездится до 100 пар луговых и до 10 пар черноголовых чеканов. Детальные исследования с постоянным контролем окольцованных птиц проводили на площади около 100 га.
В 1993–2002 гг. на стационарном участке и в радиусе 5 км от него помечено индивидуальными комбинациями цветных колец 124 черноголовых чекана (21 взрослая и 103 молодые птицы) и 238 луговых чеканов (45 взрослых и 193 молодые птицы). Взрослых птиц отлавливали на гнездах с помощью ловушки–западни, а птенцов кольцевали во время их пребывания в гнезде, обычно в возрасте 7–10 суток.
Особенности территориального поведения взрослых и молодых чеканов оценивали по данным повторных встреч окольцованных птиц. Для определения размеров гнездовых участков использовали данные о встречах птиц на границах их гнездовых территорий в период после завершения формирования пространственной структуры местной популяции.
Данные регистраций наносили на схему, а в послегнездовой период границы обходили с шагомером и компасом. В результате получали данные по контурам территорий в виде многоугольников и определяли их площадь. Всего измерено 11 территорий черноголовых чеканов и 36 территорий луговых чеканов (19 участков, занятых птицами во время первого, и 17 участков – во время повторного цикла размножения) в 1992–1993 и 2001–2002 гг.
Процент возврата меченых птиц на контролируемый участок рассчитывали с учетом данных о смертности взрослых и молодых птиц в местах гнездования. Данные о дальности и направлении перемещений окольцованных птиц, встреченных в пределах стационара в последующие годы, были получены с помощью персонального навигатора GPS GARMIN–12. При этом измеряли расстояние между центрами гнездовых территорий, которые взрослые птицы занимали в разные годы, или расстояние между центром территории рождения и территорией гнездования для птиц, окольцованных птенцами.
Результаты и их обсуждение
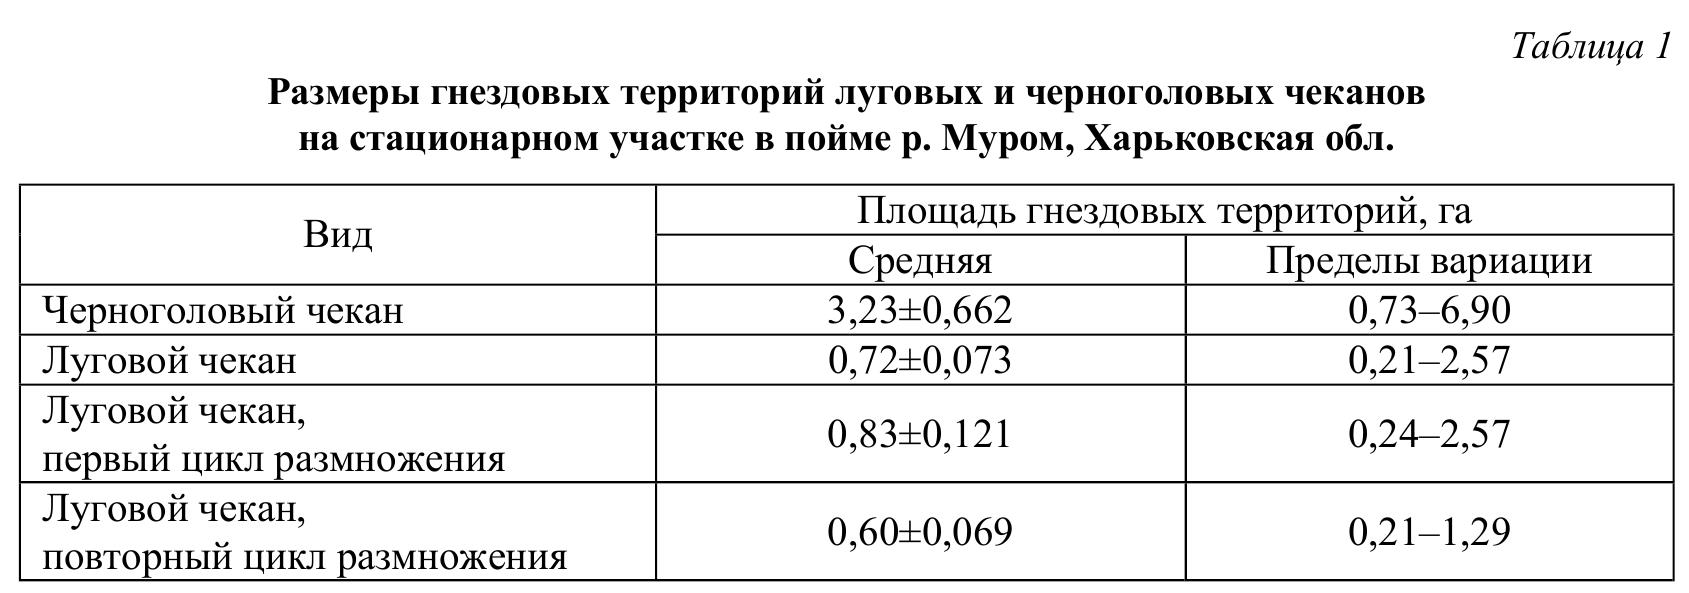
В ходе работ впервые получены данные по размерам территорий лугового и черноголового чеканов в условиях совместного обитания (табл. 1). Они могут быть сопоставлены с результатами зарубежных исследований, в которых, как правило, изучался только один из этих видов. Так, величина 14 территорий черноголовых чеканов из частично оседлой популяции на Нормандских островах в Великобритании колебалась в пределах 0,7–7,0 га и, в среднем, составила 2,7 га. Другой автор, проводивший исследования на вересковых пустошах в Сассексе (Великобритания),
определил величину гнездовых участков как 0,8–4,0 га; N = 45. Значительно меньшими оказались территории этого вида на скальных участках в Северном Корнуэлле (Великобритания): 0,3–1,0 га, в среднем, 0,79 га; N = 15. Для залежных участков среди культурного ландшафта в Нидерландах размеры территорий черноголовых чеканов составляли 1,0–4,8 га
Данных по величине территорий луговых чеканов в литературе меньше, причем они также относятся к западноевропейским популяциям вида. Размеры территорий лугового чекана не превышают 1 га в Айршире (Шотландия), составляют, в
среднем, около 0,75 га в Германии, и 0,43 га в Нидерландах. В недавно вышедшей монографии, посвященной луговому чекану, приведены другие данные о средней величине территории: 1,5–1,8 га. Однако авторы книги указывают на зависимость площади территорий от характера биотопа и отмечают, что небольшие участки (менее 1 га) характерны для птиц, гнездящихся на лугах, а более крупные – для птиц, населяющих субоптимальные местообитания.
Результаты оценки размеров гнездовых участков луговых и черноголовых чеканов показывают, что между исследованными видами существуют значительные различия по этому признаку (см. табл. 1). Территории черноголовых чеканов достоверно больше, чем территории луговых чеканов (тест Манна–Уитни; U=31; p=0,00003).
На наш взгляд, объяснить столь существенные различия в размерах гнездовых территорий этих видов можно, учитывая недавнее происхождение мигрирующих украинских популяций черноголового чекана от оседлых популяций из более южных частей ареала. Для оседлых птиц важно иметь достаточно крупные территории, которые в состоянии обеспечить их кормовыми ресурсами в зимнее время. Действительно, Э. Джонсон, изучавший частично оседлые популяции этого вида на Нормандских островах, указывает, что площадь территорий максимальна в осенний и зимний периоды, а в сезон размножения не превышает 3,0 га. Поэтому можно предположить, что мигрирующие популяции черноголовых чеканов сохраняют повышенные требования к величине территории в качестве «рудимента» былой оседлости.
Средняя величина территорий у птиц, гнездившихся повторно, была меньше (табл. 1), однако эти различия оказались недостоверными (тест Манна–Уитни; U=113; p=0,124). Таким образом, изменения в пространственной структуре популяции луговых чеканов при переходе ко второй волне размножения и существенном уменьшении плотности гнездящихся птиц практически не сказываются на величине гнездовых участков.
Для пространственной структуры популяций лугового чекана характерно агрегированное распределение гнездовых участков и образование их скоплений на подходящих территориях. В таких скоплениях бывает от 5 до 15–20 участков, центры которых удалены друг от друга на расстояние около 40–50 м. Часть территорий находится вне скоплений, но, как правило, они расположены так, что самцы–соседи находятся в акустическом контакте. В роли основателей группировок из нескольких гнездящихся пар выступают самцы, прилетающие на места гнездования раньше других. До формирования пространственной структуры популяции они способны осваивать достаточно большие участки площадью более 1 га. Позднее, по мере занимания соседних территорий другими самцами, площадь их первоначальных территорий сильно уменьшается.
Известно, что для многих птиц переход к повторному размножению сопряжен со сменой прежней территории. Во время повторного размножения луговых чеканов пространственная структура их популяции существенно меняется. Скопления гнездовых территорий уже не бывают настолько плотными. Численность повторно гнездящихся птиц намного меньше весенней, и взаимное расположение территорий полностью меняется в сравнении с началом сезона размножения.
Пространственная структура популяции черноголового чекана характеризуется особыми чертами. Для этого вида также характерны «скопления» территорий, но они никогда не бывают большими и редко содержат более трех граничащих друг с другом гнездовых участков. Расстояние между такими объединениями гнездовых участков составляет 0,5–1,0 км, и птицы в соседних группировках не контактируют в течение всего периода размножения. Часть птиц гнездится совершенно обособленно.
Расположение и размеры территорий не меняются при переходе от первого цикла размножения ко второму. Следует подчеркнуть, что в составе упомянутых небольших скоплений некоторые территории занимаются черноголовыми чеканами постоянно на протяжении многих лет. При этом птицы используют постоянные присады в качестве песенных и охотничьих постов, а часто и гнездятся в одних и тех же местах. Эта особенность подтверждается результатами других долговременных исследований этого вида, выполненных в Великобритании. Причины высокого постоянства некоторых территорий черноголовых чеканов требуют дополнительного изучения, но, вероятно,
связаны с недавним оседлым способом жизни.
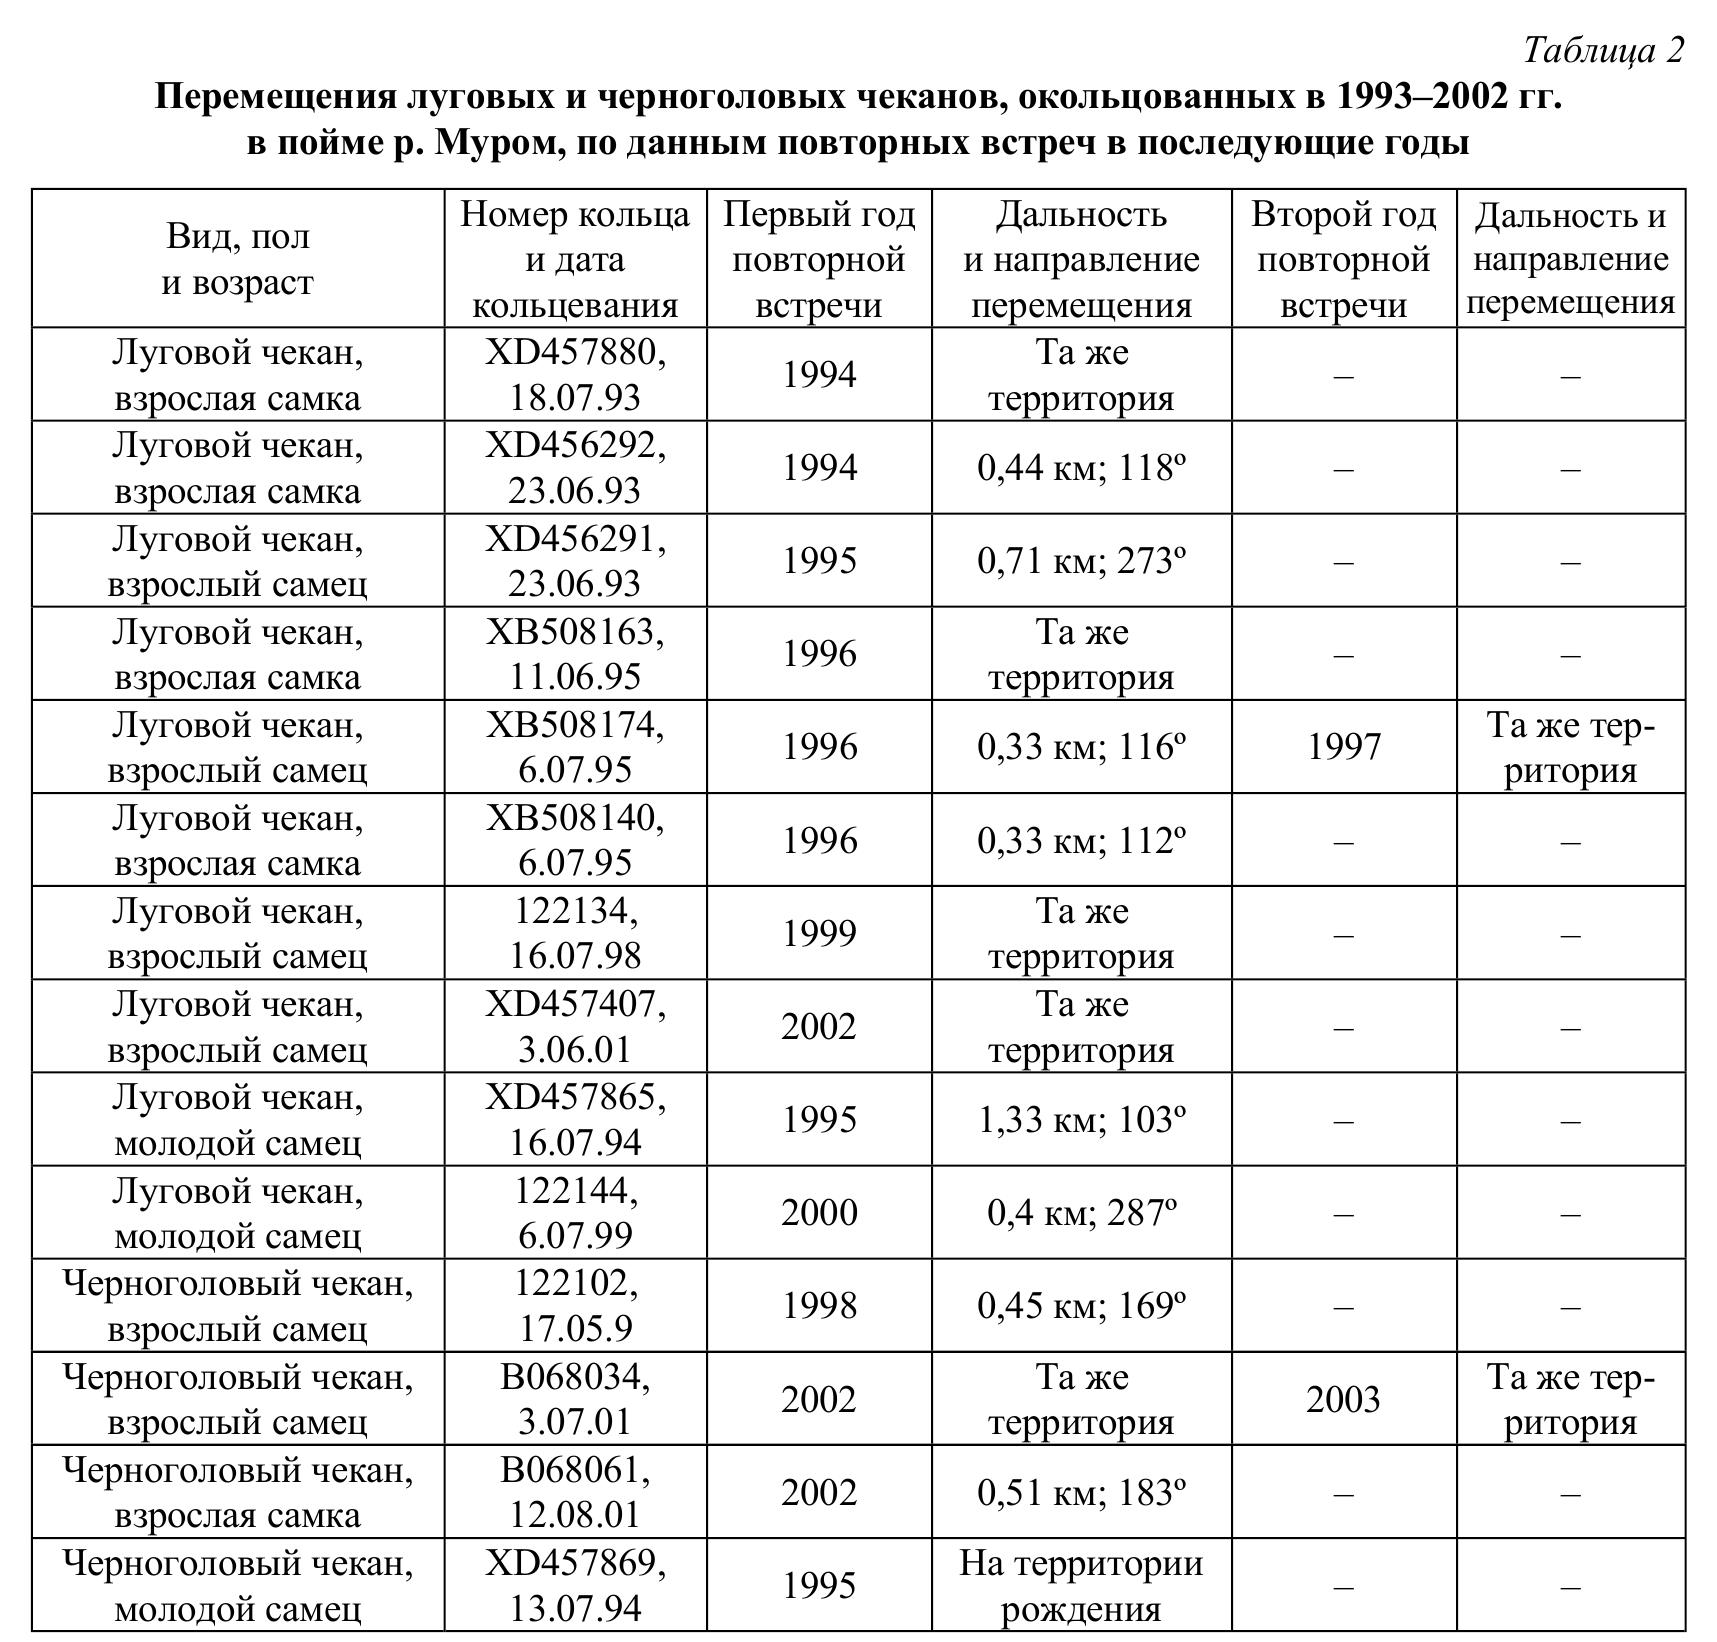
Процент возврата в район рождения взрослых луговых чеканов составил 23,5 % для всех птиц (23,5 % для самцов и самок, соответственно). Для взрослых черноголовых чеканов общая величина показателя равнялась 17,7 %, составляя соответственно 28,6 и 10,0 % для самцов и самок. Возврат молодых луговых и черноголовых чеканов к местам рождения был равен соответственно 1,7 и 1,8 % Полученный нами процент возврата взрослых луговых и черноголовых чеканов ниже, чем в Западной Европе. Так, в Германии этот показатель колебался в пределах 27–47 % и 39–43 % для самцов и самок лугового чекана, соответственно. Для черноголового чекана в Нидерландах процент возврата для самцов и самок был равен 37 %. Низкие величины процента возврата, полученные для стационарного участка в пойме р. Муром, связаны, прежде всего, с недостаточной эффективностью контроля окольцованных птиц в 1995–2000 гг. Если принять, что ежегодная смертность взрослых птиц составляет около 50 %, то к местам прежнего гнездования в пойме р. Муром возвращается не менее 47 % выживших взрослых луговых чеканов и не менее 35,4 % черноголовых чеканов. Данные по перемещениям птиц в последующие годы (табл. 2) показывают, что многие из них возвращаются на участки гнездования предыдущего сезона.
Процент возврата молодых птиц в места рождения также оказался ниже известного для Западной Европы: 6,5 % в равнинных районах Германии и 12,8 % в альпийских районах Австрии для лугового чекана; 14,8 % для черноголового чекана в Германии. Невысокий процент возврата молодых птиц, как и в случае взрослых, может быть объяснен слабой эффективностью контроля.
Интересно, что среди вернувшихся к местам рождения (табл. 2) были только птицы из поздних выводков. То есть, к местам рождения вернулось 3,1 % местных луговых чеканов из повторных кладок, 3,3 % черноголовых чеканов из выводков вторых кладок, и не вернулось ни одной птицы из ранних выводков.
Выводы
1. Гнездовые территории черноголовых чеканов по величине значительно превышают территории луговых чеканов. Повидимому, повышенные требования к величине гнездового участка связаны с недавним происхождением мигрирующих популяций этого вида от оседлых популяций.
2. Для пространственной структуры популяции лугового чекана характерны агрегированный тип распределения гнездовых участков и серьезные изменения в размещении территорий при переходе к повторному циклу размножения. Пространственная структура популяции черноголового чекана характеризуется большим постоянством, что выражается и в внутрисезонной стабильности, и в наличии постоянных территорий, занимаемых птицами на протяжении многих лет. Причины постоянства пространственной структуры популяции черноголового чекана и механизмы ее обеспечения требуют дополнительных исследований.
3. Полученные данные о невысоком проценте возврата взрослых птиц обоих видов на территорию гнездования и молодых птиц в район рождения, вероятно, отражают слабую эффективность контроля окольцованных особей. Особый интерес представляют возможные различия в образовании территориальных связей у птиц, происходящих из ранних и поздних выводков.
Источник
2003 / Вісник Дніпропетровського університету. Біологія, екологія.