
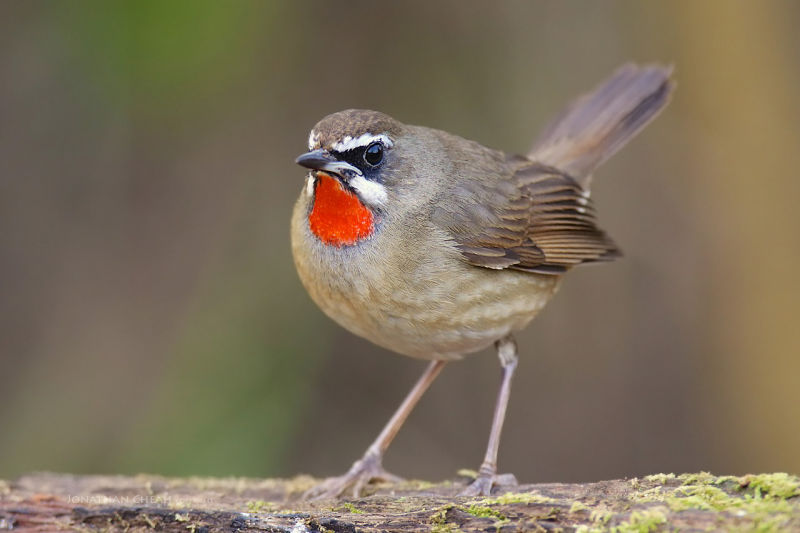
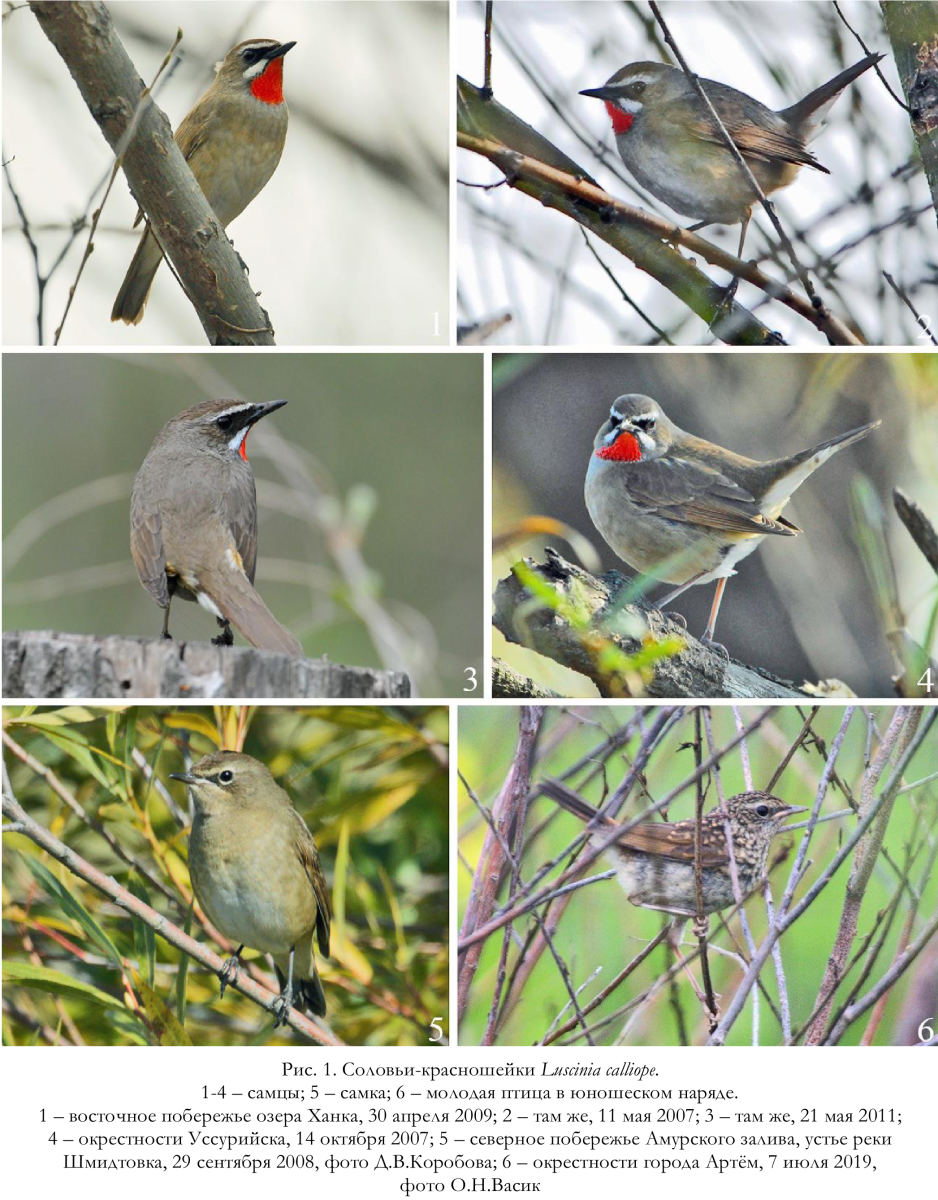
Статус. Соловей-красношейка Luscinia calliope (Pallas, 1776) является обычным гнездящимся перелётным и пролётным видом Приморского края. На гнездовании он представлен подвидом L.c. calliope (Pallas, 1776) (рис. 1), широко распространённым в Сибири и на материковой части Дальнего Востока России, тогда как во время сезонных миграций в Приморье встречаются представители ещё трёх подвидов: L.c. sachalinensis (Portenko, 1937), L.c. camtschatkensis (J.F. Gmelin, 1789) и L.c. anadyrensis (Portenko, 1939) (Масловский и др. 2014; Глущенко и др. 2016).
Распространение и численность. В настоящее время в подходящих местообитаниях соловьи-красношейки гнездятся почти по всему Приморью, исключая самый крайний юго-запад и, вероятно, юго-восток его территории, проявляя при этом тенденцию расширения ареала в южном направлении. В первой половине ХХ века гнездящихся красношеек находили в долинах рек северной половины края, таких как Бикин, Большая Уссурка (Иман) и Уссури (Воробьёв 1954), а также в бассейне озера Ханка (Черский 1915). А.А. Назаренко (1971б) считал, что в равнинных районах Приморья эти соловьи не гнездятся южнее города Арсеньев. В начале XXI столетия они проникли южнее, локально заселив пойму нижнего течения реки Раздольная и её притоков от окрестностей Уссурийска (Глущенко и др. 2006а) к югу до приустьевой части этой реки (Нечаев 1997; наши данные). Кроме того, они были найдены на северном побережье Амурского залива (Омелько, Омелько 2010; Глущенко и др. 2016; наши данные), в окрестностях городов Артём и Владивосток (Глущенко и др. 2016), а также вблизи границ заповедника «Кедровая Падь» (Курдюков 2014). В мае 2012 года, вероятно, местных птиц наблюдали на островах Большой Пелис и Матвеева (Глущенко и др. 2013), а в 2015 году гнездо соловьёв-красношеек мы обнаружили на полуострове Гамова.
В горах Сихотэ-Алиня этих птиц впервые обнаружили в окрестностях города Партизанск (Сучан) в 1926 году (Шульпин 1927). Впоследствии к этой находке отнеслись с сомнением (Воробьёв 1954), но скепсис развеял А.А. Назаренко (1971б), указавший, что на Южном Сихотэ-Алине соловьи-красношейки населяют все вершины, выходящие за пределы верхней границы леса, от горы Облачная на севере до горы Криничная (Хуалаза) на юге. Кроме того, в небольшом количестве этих птиц отмечали в истоках реки Уссури, у подножия Облачной, на старых закустаренных вырубках и гарях. Позднее в пределах Приморья горные популяции гнездящихся красношеек нашли по всему Сихотэ-Алиню от его южных вершин (Панов 1973) до границы с Хабаровским краем в истоках Бикина (Михайлов 1997; Михайлов и др. 1998; и др.). В Лазовском заповеднике соловьёв-красношеек наблюдали 27-30 июня 2005 на горе Чёрная, где они держались на лугах и в зарослях кустарников по опушкам (Шохрин 2017).
Численность гнездящихся красношеек широко варьирует по годам.
В 2002-2004 годах в типичных местообитаниях Приханкайской низменности плотность их населения была невысокой, находясь в пределах от 1.0 до 9.8 пар/км2 (Глущенко и др. 2006б), достигая своего максимума (6.8-9.6 пар/км2) в комплексе перелесков в долинах рек и на береговых валах озера Ханка (Волковская-Курдюкова 2006). В бассейне нижнего и среднего течения реки Бикин это обычная, а местами многочисленная птица (Пукинский 2003).
В окрестностях Владивостока в ХХ веке соловьёв-красношеек наблюдали только в период сезонных миграций (Назаров 2004), а в настоящее время они здесь гнездятся и в типичных стациях, по нашим наблюдениям, не представляют редкости. В окрестностях заповедника «Кедровая Падь» их относительная численность в 2008 году составила, пар/км2: 0.3 – на открытых участках в пойме реки Барабашевка; 2.0 – в пирогенном древесно-кустарниковом комплексе на побережье бухты Мелководная; 1.3 – в приречно-кустарниковых зарослях приустьевой части реки Нарва (Курдюков 2014).
На вершинах Сихотэ-Алиня в поясе кедрового стланика – это скрытные птицы, где в дневное время они выявляются исключительно по позывкам (Назаренко 1971а; Михайлов 1997), но в ночное и сумеречное время почти с любой точки здесь слышно 1-3 поющих самцов (сообщения К.Е. Михайлова и Е.А. Коблика). По нашим данным, в горных условиях соловьи-красношейки нередко поют как днём, так и ночью.
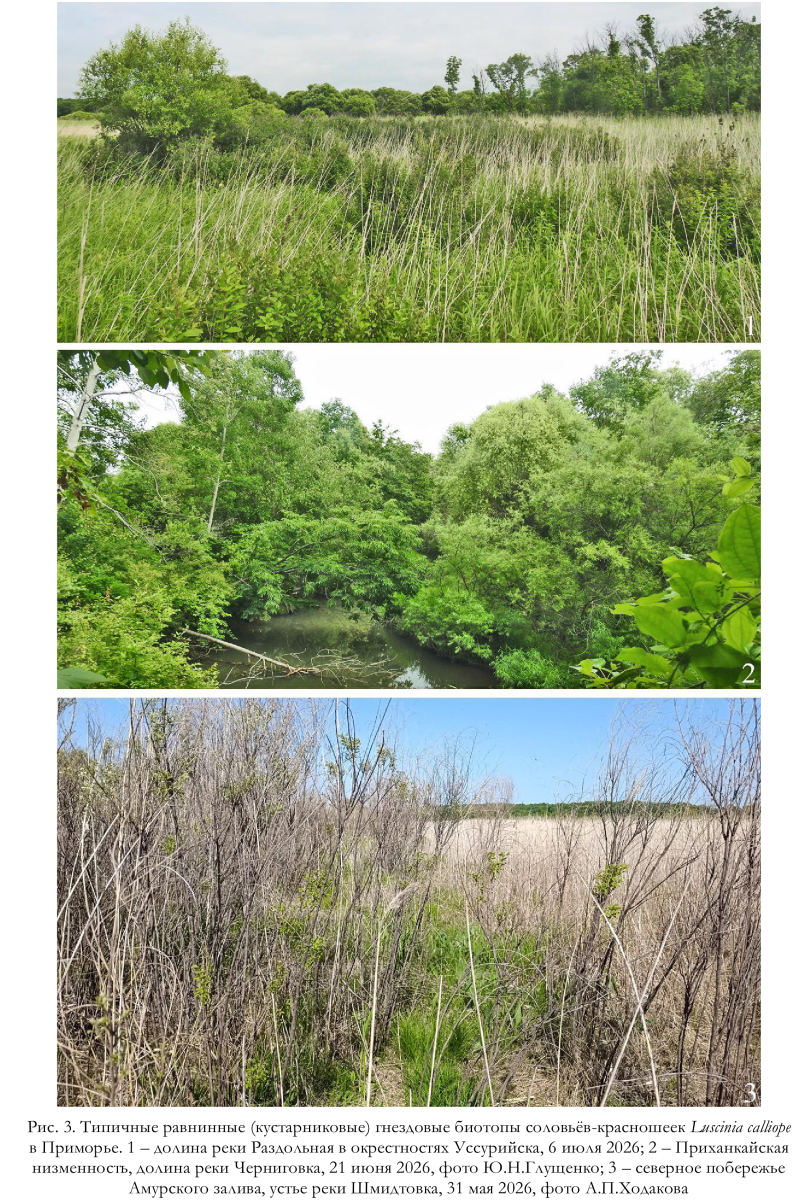
Местообитания. В Приморском крае существуют высокогорные (кедрово-стланиковые) (рис. 2) и долинные (кустарниковые) (рис. 3) поселения соловьёв-красношеек. Кроме того, на Сихотэ-Алине существует ряд вторичных поселений этих птиц на промежуточных высотах (Назаренко 1971б; наши данные) (рис. 4).

В горы они проникают до 1850 м н.у.м., населяя фрагментарные заросли и отдельные куртины кедрового стланика с кустарниковой ольхой и каменной берёзой (Назаренко 1971а). В горах наиболее многочисленны в подгольцовом поясе Центрального Сихотэ-Алиня, где с большой плотностью гнездятся в зарослях высокого кедрового стланика и кустарниковых ольхово-берёзовых ассоциациях как на вершинах осевого хребта, так и на Хорско-Бикинском водоразделе (Назаренко 1971а; Михайлов 1997).

В западной части Северного Приморья соловьи-красношейки характерны для лесостепи и лесопосадок долины Уссури, а также они обычны в кустарниковой периферии рёлок на марях нижней части рек Бикин и Большая Уссурка (Спангенберг 1965; Пукинский 2003). Во всей промежуточной области между подгольцовыми и равнинными поселениями на севере Приморского края красношейки заметно малочисленнее и распространены диффузно, отдельными парами, гнездясь в поясе сопочных и горных лесов по гарям и «пятнам» вторичного мелколесья, а в долине таёжных рек – по зарастающим старым покосам (Михайлов и др. 1998; Михайлов, Коблик 2013). Они успешно заселяют вторичные зрелые березняки на плакорах в верховьях таёжных рек, а единичных поющих самцов почти всегда можно обнаружить в рубленных «окнах» вокруг разбросанных в тайге охотничьих избушек (Михайлов 2014). На Сихотэ-Алине поселения этих птиц известны в верховьях рек на старых лесосеках, поросших кустарником и берёзовым подростом, а также на месте старых гарей (Назаренко 1971б). В горах юго-западного сектора Приморья эти соловьи гнездятся на Борисовском плато, где они впервые были обнаружены в 1971 году (Назаренко 2014).
Вне гор, на Ханкайско-Раздольненской равнине, соловьи-красношейки обитают в ленточных лесах, древесно-кустарниковых и кустарниково-травянистых зарослях, в речных поймах, в разреженных сырых ивняках с разнотравьем и кустарником, а также в плохо ухоженных садах и древесно-кустарниковых зарослях среди частной застройки и городов диффузного типа. Подобные стации они занимают и в прибрежных районах западного сегмента залива Петра Великого (наши данные).
В нижнем течении реки Большая Уссурка (Иман) заселяют сады селений, а также дубовые, ольховые перелески и кустарниковые заросли поблизости от реки и озёр долины; в меньшем числе они гнездятся в разреженных вырубкой лесах речных островов (Спангенберг 1940). В бассейне нижнего и среднего течения Бикина соловьи-красношейки обитают на лесных опушках близ лугов, стариц и марей с зарослями рябинника рябинолистного и других кустарников, а также в перелесках и на вырубках (Пукинский 2003).
На северо-востоке Приморского края соловьи-красношейки гнездятся в поймах рек с обилием подлеска как в поясе хвойных лесов на западных склонах Сихотэ-Алиня, так и на побережье севернее бухты Терней, а также на зарастающих гарях и в кедровом стланике с россыпями (Елсуков 1999).
Весенний пролёт. В окрестностях заповедника «Кедровая Падь» ранее соловьёв-красношеек весной наблюдали очень редко (Панов 1973), но в настоящее время, по нашим данным, они здесь довольно обычны, хотя и не многочисленны. На островах залива Петра Великого эти птицы малочисленны в середине мая (Лабзюк и др. 1971), а в прибрежных районах залива Восток – во второй половине апреля и в мае (Нечаев 2014). В Уссурийском городском округе во время весенней миграции они обычны (Глущенко и др. 2006б), а их первое появление здесь по песням самцов в разные годы регистрировали с 10 по 22 апреля (табл. 1).

Н.М. Пржевальский (1870) отметил первых птиц у истоков реки Сунгача 20 апреля 1868 и 26 апреля 1869. На Приханкайской равнине мы наблюдали первых особей не ранее 7 апреля, а обычно со второй половины этого месяца (табл. 1). К.А. Воробьёв (1954) регистрировал пролётных красношеек у озера Ханка в первой половине 1947 года, когда они держались в кустарнике по реке Спасовка (Сантахеза) и «были весьма обыкновенны». В 1947 году весенний пролёт у озера Ханка наблюдали в первой половине мая, а на основании добычи 7 особей 26 мая 1927, предполагали наличие весьма обильного пролёта этого соловья в конце мая (Воробьёв 1954). Мы не можем исключить и того, что часть добытых в это время птиц были местными.
На севере края, в бассейне реки Бикин, первых соловьёв этого вида отмечали гораздо позднее – в разные годы с 11 по 23 мая (Пукинский 2003; Коблик, Михайлов 2013). По данным Е.П. Спангенберга (1965), в низовьях реки Большая Уссурка (Иман) птицы появились 13 мая 1938 и 14 мая 1954. Скорее всего, это были далеко не первые из прилетевших особей, которые, по мнению А.А. Назаренко (1971б) в этих условиях, вероятно, должны появляться в конце апреля или в первых числах мая, с чем мы вполне согласны.
В настоящее время, по нашим данным, массовое появление соловьёв-красношеек в южной половине Приморского края приходится на третью декаду апреля, а уже к концу первой декады мая численность пролётных птиц здесь резко убывает. В Лазовском заповеднике весенний пролёт растянут и продолжается с конца апреля по начало июня, когда, повидимому, поочерёдно летят разные подвиды. Первая встреча здесь и отлов соловья-красношейки были 29 апреля 2011 в бухте Петрова. В более поздние сроки в этой бухте птиц отлавливали в течение всего мая, а последнюю особь зарегистрировали 1 июня 2011 (Шохрин 2017).
Красношейки летят транзитом, практически не совершая длительных остановок. Средняя продолжительность весенней миграции составляет 6.6 календарных дней (Масловский и др. 2018).

Гнездование. Поющих самцов (рис. 5) можно наблюдать с момента их прилёта до начала августа, при этом в первой половине июня их песенная активность снижается, а с середины июня возрастает, вновь угасая в течение июля. В среднем течении Бикина начало пения в 1969 году отметили с 15 мая, а в 1975 – с 29 мая; его разгар, как правило, приходился на третью декаду мая, в июне пение становилось нерегулярным, а в июле лишь изредка слышны отдельные песни (Пукинский 2003).
По данным Ю.Б. Пукинского (2003), утром красношейки запевают около 4 ч, с первыми признаками рассвета, хотя поют и ночами, но вяло, проще и негромко; в темноте они поют у земли, где ночуют, а с рассветом обычно на вершинах кустарников.
Гнездовой период в южной половине Приморского края длится с середины мая по конец июля (табл. 2), при этом часть успешных в гнездовании пар имеет два полных репродуктивных цикла. Судя по найденным гнёздам и встреченным выводкам, на севере Приморья (бассейн реки Бикин) период размножения соловьёв-красношеек растянут почти на 3 месяца (Пукинский 2003).

Гнездо, обнаруженное 6 июня 1954 в окрестностях города Арсеньев, представляло собой шалашеобразную постройку с боковым входом, которая располагалась совершенно открыто на поверхности земли среди редкой и невысокой травы в стороне от кустов (Назаренко 1971б). По данным Ю.Б. Пукинского (2003), гнёзда этих соловьёв – шарообразные шалашики из травы, с широким летком. По нашим данным, постройки располагаются на земле среди частично укрывающей их травы и кустарников (иногда под небольшими лежащими сухими стволами) и внешне напоминают шалаш с боковым входом (рис. 6).
Исключением явилось одно из гнёзд, отнесённое Е.П. Спангенбергом к соловью-красношейке, которое было найдено 19 июня 1938 в низовьях Большой Уссурки. Оно «помещалось в необычных условиях – совершенно открытое на тонкой веточке в 0.5 м от земли под нависшим молодым дубком» (Спангенберг 1940, с. 130).

Размеры гнёзд предоставлены в таблице 3.
Гнёзда с кладками находили со второй половины мая по середину июля (табл. 2). Полные кладки состоят из 4-6 яиц (рис. 7, 8), в среднем 4.9 яйца (n = 10). «Окраска свежих яиц бирюзовая, с малозаметным рисунком из бурых крапин в виде налёта» (Балацкий 2009, с. 89). Окраску яиц 4 кладок, осмотренных нами в природных условиях, демонстрирует рисунок 8, а 2 коллектированных кладок – рисунок 9.
Параметры яиц, их объём и вес приведены в таблицах 4 и 5.


Насиживает кладку только самка. В начале откладки яиц (до появления 3-го яйца) гнездо большую часть времени находится без присмотра. Самка лишь изредка посещает его в течение дня (рис. 10) без попыток инкубации и не остаётся в нём на ночь. Короткие сеансы насиживания и первая ночёвка зафиксированы на стадии 3 яиц. При этом самка просто сидит на яйцах, не предпринимая попыток их обогрева посредством контакта с наседным пятном. Нормальная инкубация начинается после первой ночёвки в гнезде и со временем её плотность нарастает.
На средней стадии насиживания (5-6 дней) самка совершает от 1 до 3 выходов из гнезда в 1 ч продолжительностью от 2 до 15 мин. Общая продолжительность отсутствия самки на гнезде за 1 ч варьирует от 0 до 35 мин в зависимости от времени дня (табл. 6).
Период наибольшей инкубационной активности приходится на утренние часы с 7 до 9 ч, когда самка вообще не покидает гнезда, а наименьшей – с 9 до 11 ч (среднее время отсутствия самки около 30 мин/ч) и с 15 до 18 ч (рис. 11), когда кладка наименее защищена от подкладывания яиц кукушками. Доказательств паразитирования обыкновенной кукушки Cuculus canorus на соловье-красношейке в Южном Приморье, где проводились наши наблюдения за гнездом (Приханкайская низменность) нет, но они имеются для северной части края (Пукинский 2003).
Поведение самки в гнезде, находящемся под наблюдением, косвенно свидетельствует об отсутствии у неё опыта противостояния паразитированию: насиживающая птица никак не реагировала на неоднократную вокализацию близко находящихся самца и самки обыкновенной кукушки. Но при этом она проявляла явные признаки тревоги и беспокойства в ответ на другие раздражители. Так, она издавала тревожную «пищащую» позывку в ответ на техногенные шумы, реагировала настороженным вытягиванием шеи (рис. 12.1) или оставлением гнезда (рис. 12.2) в ответ на тревожные позывки птиц-соседей (седоголовой овсянки Ocyris spodocephalus и чернобровой камышевки Acrocephalus bistrigiceps), а также на короткие территориальные песни чернобровой камышевки.

Во время насиживания самка регулярно интересуется кладкой: по несколько секунд рассматривает яйца, трогает их клювом, переворачивает и ухаживает за гнездом, проветривая его, протыкая дно либо унося часть сухой или зелёной травы. В зависимости от времени суток эти действия совершаются от 4 до 20 (13 ± 5.4) раз в час. В ночное время самка не покидает гнезда, но проявляет некоторые виды активности, делающие её потенциально уязвимой для ночных хищников, например, сов.
Так, по наблюдениям 23 июня 2011, за 7.5 ночных часов (с 22:15 до 5:35) она просыпалась 9-14, в среднем 10.7 ± 2.9 раз/ч, меняла положение в лотке, чесалась и поправляла оперение 4-15, в среднем 9.3 ± 5.5 раз/ч.

Самец не кормит насиживающую самку и до появления птенцов на гнездо даже не присаживается. Он поёт поблизости, при этом продолжительность пения варьирует от нескольких секунд до 34 мин, в среднем песенная сессия длится 7 мин. Начинает петь во второй половине ночи, издавая короткие фрагменты с длинными, до 8 с, межпесенными интервалами. Хорошо распевается в предрассветные часы, при этом межпесенные интервалы сокращаются до 1-3 с. Активность пения тем выше, чем ближе от гнезда расположен песенный пост (это может служить маркером при поиске гнёзд). Выраженной реакции насиживающей самки на пение самца не выявлено. Отмечен один случай, когда она в 7 ч 08 мин прямо с гнезда ответила резкой короткой песней, которая длилась до 2 минут и на слух не отличалась от песни самца. Похожее пение, издаваемое самкой во время чистки оперения, было спровоцировано присутствием пчелы у входа в гнездо.
Судя по данным из других регионов, насиживание у соловья-красношейки длится 13-14 сут (Нечаев 1991; Рябицев 2008). Вылупление птенцов мы наблюдали на Приханкайской низменности 26 июня 2008 (рис. 13), а птенцов разных возрастов в Приморье находили с начала июня до конца июля (табл. 2; рис. 14, 15).


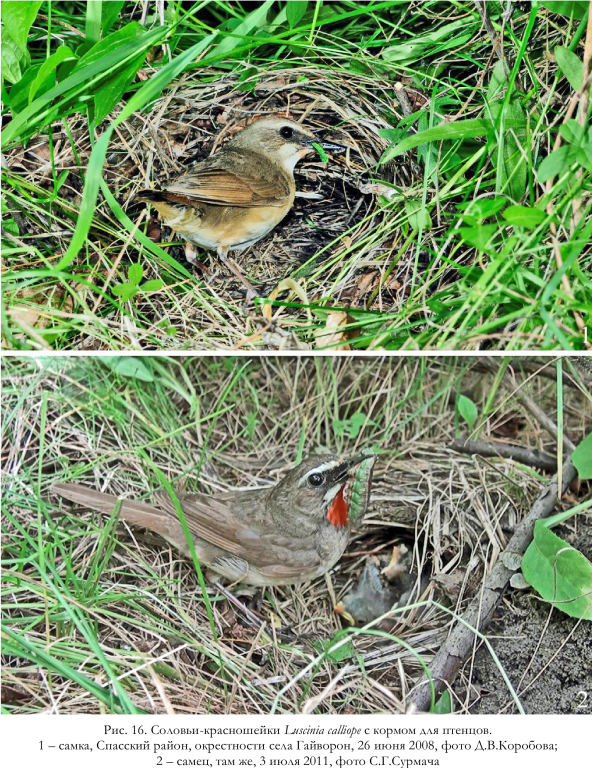
Птенцов кормят оба родителя (рис. 16). В этот период самка время от времени продолжает ухаживать за гнездом, например, убирая из лотка старые листья (рис. 17).
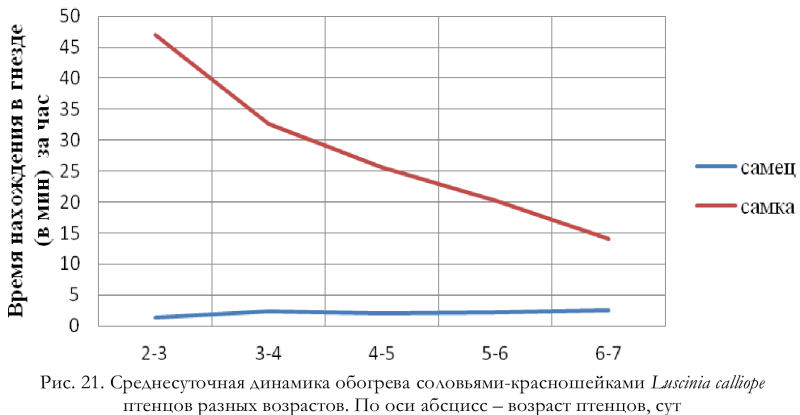
Участие партнёров в выкармливании птенцов у наблюдаемой нами пары было равным. Количество прилётов с кормом у самца и самки не различалось: обычно за 1 ч они прилетали по 4 раза, в среднем принося за раз по 4.5 кормовых объекта, которыми кормили по 4 птенца (табл. 7, рис. 18). И это несмотря на то, что самка проводит на гнезде гораздо больше времени, чем самец. Однократное время нахождения самки в гнезде было в 7 раз больше, а за час – в 12 раз больше, чем самца. Соответственно, самец в два раза дольше отсутствовал в гнезде как однократно, так и в среднем в течение часа (табл. 7).


Длительность отсутствия самца, по-видимому, не связана со сложностями разыскивания корма. Минимальное время, затрачиваемое на добывание корма у самца и самки сходное – 0.1-1.0 мин, а среднее время у самки в два раза меньше – 7.7 ± 5.8 мин (n = 134), чем у самца – 14.9 ± 13.3 мин (n = 114). Судя по тому, что самец периодически возвращается к гнезду без корма и присутствует при выводке, не проявляя кормовой активности, дефицита с кормом нет. Часто взрослые ловят беспозвоночных прямо с гнезда или поблизости.


В течение суток наибольшая интенсивность выкармливания птенцов приурочена к периодам с 15 до 16 ч и с 20 до 22 ч (рис. 19).
Часто родители делили корм, принесённый одним из партнёров, и отдавали его разным птенцам. В наблюдаемом гнезде взрослые птицы часто добывали очень крупных гусениц, которыми они долго, до 3 мин, пытались накормить птенцов, но в конечном счёте уносили их прочь либо съедали сами здесь же на гнезде. В первые три дня наблюдений за выкармливанием птенцов (в возрасте 3-5 сут) родителя съедали капсулы помёта, дожидаясь их выделения птенцами почти после каждого их кормления.
Обогревом птенцов занималась только самка, а роль самца сводилась к приносу корма и уносу или поеданию фекальных капсул. Он не предпринимал попыток обогрева или ухаживания за птенцами даже в случае длительного отсутствия самки при выводке. По мере развития птенцов время присутствия самки в гнезде сокращалось: за период с 3 по 7 сут жизни оно уменьшилось в 3 раза (рис. 20, 21).
С появлением птенцов активность пения самца возрастала: он пел от нескольких секунд (после 23 ч) до 39 мин (в 11 ч), а песенная сессия длилась в среднем 11.3 мин. Утром самка, как и при насиживании, эпизодически издавала фрагменты песни в ответ на пение самца у гнезда или после кормления им птенцов. Принося корм, родители издавали «тявкающие» позывки, адресованные птенцам, а в случае их долгого отказа от еды – более громкие звуки: самец «квохчущую» или «трелеподобную» позывку, а самка – «пищащую». Выпрашивающие корм птенцы издавали свист, который становится слышимым на 4-5 день их жизни.

За несколько дней до вылета птенцов, когда громкость их выпрашивающих криков увеличивает риск быть обнаруженными, в репертуаре взрослых птиц появляются специфические тревожные звуки, предупреждающие об опасности и побуждающие птенцов замолчать. Самка издаёт «чавкающую», а самец – мелодичную позывку «пиии», которые могут служить индикатором их присутствия поблизости от гнезда с подросшими птенцами или от несамостоятельных слётков. Эти же тревожные позывки можно слышать и в период осеннего пролёта.
Судя по наблюдениям на острове Сахалин, птенцы покидают гнездо в возрасте 13-15 сут (Нечаев 1991). Слётков и самостоятельных молодых (рис. 22) наблюдали с первой половины июня до конца июля (табл. 2).
После вылета птенцов первого выводка самцы возобновляют песенную активность, готовясь ко второму циклу гнездования.
Послегнездовые кочёвки и осенние миграции. Местные кочёвки соловьёв-красношеек в Южном Приморье начинаются в августе. В этот период у молодых птиц интенсивно идёт постювенильная линька (рис. 23.1), у части молодых красношеек она активно продолжается и в сентябре (рис. 23.2).

Осенняя миграция соловьёв-красношеек в Приморье проходит несколько более интенсивно, чем весной (Панов 1973; наши данные) и растянута примерно на два месяца, начинаясь в конце августа либо в начале сентября и заканчиваясь в разные даты октября (рис. 24), реже – в первой половине ноября.

На Ханкайско-Раздольненской равнине пик осенней миграции отмечен во второй половине сентября, когда соловьи-красношейки достаточно крикливы, но при этом на глаза попадаются не часто. В первых числах октября численность пролётных красношеек сокращается, а последних особей на Приханкайской низменности мы отметили 19 октября 1971 (Глущенко и др. 2006б). В окрестностях Уссурийска максимум миграционной активности наблюдали во второй половине сентября; в первых числах октября численность мигрантов сокращалась, а последних особей мы регистрировали 8 октября 2006, 9 октября 1995, 14 октября 2007 и 23 октября 2004.
К.А. Воробьёв (1954) наблюдал осенний пролёт соловьёв-красношеек в Уссурийском (Супутинском) заповеднике в последних числах сентября.
В других случаях в этом заповеднике первых птиц осенью отмечали 17 сентября 2003, 25 сентября 2004, 30 сентября 2007, а последних – 9 октября 2001, 13 октября 2006 и 2007 (Глущенко и др. 2019).
В окрестностях заповедника «Кедровая Падь» в 1960 году этих соловьёв осенью регистрировали с 17 сентября по 9 октября, в 1961 – с 21 сентября по 7 октября, а в 1962 – с 1 по 12 октября (Панов 1973). Под Владивостоком красношеек добывали 9 сентября 1969, 4 октября 1976 и 19 октября 1961 (Назаров 2004). На северном побережье Амурского залива (полуостров Де-Фриза) начало осеннего пролёта в 1950 и 1951 годах отмечали 19 и 22 сентября соответственно, а последних птиц наблюдали 13 октября 1950, 15 октября 1953 и 17 октября 1951 (Омелько 1956); нами самая поздняя встреча здесь зафиксирована 24 октября 2007. На островах залива Петра Великого соловьи-красношейки малочисленны в конце сентября и в первой половине октября (Лабзюк и др. 1971). В заливе Восток они малочисленны в сентябре и октябре (Нечаев 2014).
По результатам исследований, проведённых в долине реки Литовка (Партизанский муниципальный округ) в течение 19 осенних сезонов (1998-2016 годы), соловей красношейка – самый многочисленный здесь вид из рода Luscinia на осеннем пролёте. Средняя продолжительность его миграции составляет 46.3 дня. Самая ранняя встреча с ними датирована 2 сентября 2009, большинство первых регистраций приходится на вторую неделю сентября, а на протяжении миграционного периода отмечается от 1 до 3 пиков численности (они наиболее выражены в двадцатых числах сентября и в первую неделю октября), предположительно соответствующих пикам миграции птиц из разных частей ареала, при этом миграцию начинают особи номинативного подвида. Завершается пролёт преимущественно во второй половине октября. В период с 15 сентября по 14 октября пролетает 90 % всех особей. Медиана пролёта приходится на 29 сентября. Миграция взрослых птиц проходит в более сжатые сроки, чем у молодых. Среди взрослых особей самки прибывают в среднем на 3 дня раньше самцов. Молодые красношейки на осеннем пролёте в среднем регистрируются на 4 дня раньше взрослых. Даты прибытия молодых самцов и самок не различаются. Молодых птиц регистрируют значительно чаще, чем взрослых (по многолетним усреднённым данным соотношение составляет примерно 6:1), что объясняется «эффектом побережья», при этом доли молодых соловьёв-красношеек поддерживаются примерно на одном уровне в течение всей осенней миграции (Масловский и др. 2014, 2018).
Наиболее поздние экземпляры соловья-красношейки, добытые в Сихотэ-Алинском заповеднике, датированы 24 октября 1983, 27 октября 1976, 28 октября 1991 и 5 ноября 1981 (сборы С.В. Елсукова). В долине реки Литовка наиболее поздняя пролётная особь отловлена 11 ноября 2006 (Масловский и др. 2014). По результатам массового отлова птиц паутинными сетями, проводимого в окрестностях Лазовского заповедника, начало пролёта отметили 9 сентября 2005 (Шохрин 2014). На побережье последние встречи и отловы соловьёв-красношеек зарегистрированы 16 октября 2015, 26 октября 2011, 29 октября 2002, 3 ноября 2013, 9 ноября 2005, 11 ноября 2000 и 15 ноября 2003 (Шохрин 2017).

Питание. В отличие от других видов соловьёв надрода Luscinia, соловьи-красношейки характеризуются наиболее экономичным поведением при кормодобывании и строгой приверженности к зарослям. Они совершают меньше атак за единицу времени, поэтому для восполнения суточных затрат энергии они должны добывать более крупные жертвы или эффективнее, чем другие соловьи, разыскивать малоподвижных беспозвоночных. Крупные размеры тела позволяют им справиться с относительно большой добычей (Бурский 2018).
Согласно нашим наблюдениям, в питании птенцов преобладали насекомые и их личинки (рис. 25), среди которых родители наиболее часто приносили гусениц чешуекрылых (69.3 %), а среди представителей других классов беспозвоночных животных в спектре питания оказывались многоножки (5.8 %) и пауки (5.5 %) (табл. 8).

Неблагоприятные факторы, враги, гибель. Для Северного Приморья (бассейн реки Бикин) в июле 1969 года выявлен случай замены яйца соловья-красношейки яйцом обыкновенной кукушки такой же окраски, как и у хозяев гнезда (Пукинский 2003).
В 2017-2023 годах с соловьёв-красношеек, отловленных в паутинные сети, сняли мух-кровососок Ornithoica momiyamai (3 экз.) (Nartshuk et al. 2023; наши данные).
Исследование выполнено в рамках госзаданий Минобрнауки РФ № 125021302113-3 и № 124012400285-7. За помощь в работе авторы признательны С.Ф. Акулинкину (Кировская область), О.А. Бурковскому (Южно-Сахалинск); О.Н. Васик (Владивосток); А.В. Вялкову (Владивосток), К.В. Дмитриенко (Владивосток), И.Н. Коробовой (Уссурийск), И.А. Малыкиной (Владивосток), С.А. Морозкиной (Владивосток), А.Г. Перевозову (Сочи), А.П. Рогалю (Владивосток).
• Балацкий Н.Н. 2005. К авифауне верхнего течения Бикина // Рус. орнитол. журн. 14 (278): 98-103. EDN: IJVUSN.
• Балацкий Н.Н. 2009. Гнёзда птиц юга Западно-Сибирской равнины. Новосибирск: 1-131.
• Бурский О.В. 2018. Кормодобывание у соловьёв (надрод Luscinia): экспериментальное исследование // Зоол. журн. 97, 2: 161-180.
• Волковская-Курдюкова Е.А. 2006. О некоторых закономерностях экологической дифференциации орнитокомплексов освоенных земель Приханкайской низменности // Проблемы сохранения водно-болотных угодий международного значения: озеро Ханка. Владивосток: 107-124.
• Воробьёв К.А. 1954. Птицы Уссурийского края. М.: 1-360.
• Глущенко Ю.Н., Коробов Д.В., Кальницкая И.Н. 2013. Материалы к изучению авифауны Дальневосточного морского заповедника (Приморский край) // Животный и растительный мир Дальнего Востока 18: 2-9.
• Глущенко Ю.Н., Коробов Д.В., Харченко В.А., Коробова И.Н., Глущенко В.П. 2019. Птицы – Aves // Природный комплекс Уссурийского городского округа; современное состояние. Владивосток: 151-301.
• Глущенко Ю.Н., Липатова Н.Н., Мартыненко А.Б. 2006а. Птицы города Уссурийска: фауна и динамика населения. Владивосток: 1-264.
• Глущенко Ю.Н., Нечаев В.А., Редькин Я.А. 2016. Птицы Приморского края: краткий фаунистический обзор. М.: 1-523.
• Глущенко Ю.Н., Шибнев Ю.Б., Волковская-Курдюкова Е.А. 2006б. Птицы // Позвоночные животные заповедника «Ханкайский» и Приханкайской низменности. Владивосток: 77-233.
• Елсуков С.В. 1999. Птицы // Кадастр позвоночных животных Сихотэ-Алинского заповедника и Северного Приморья. Аннотированные списки видов. Владивосток: 29-74.
• Коблик Е.А., Михайлов К.Е. 2013. Изменения сроков прилёта птиц в бассейне реки Бикин (север Приморского края) в 1990-е годы по сравнению с 1970-ми // Рус. орнитол. журн. 22 (948): 3341-3347. EDN: RNGVQB.
• Курдюков А.Б. 2014. Гнездовые орнитокомплексы основных местообитаний заповедника «Кедровая Падь» и его окрестностей: характер размещения и состояние популяций, дополнение к фауне птиц (материалы исследований 2008 года) // Рус. орнитол. журн. 23 (1060): 3203-3270. EDN: SWMORLэ
• Лабзюк В.И., Назаров Ю.Н., Нечаев В.А. (1971) 2020. Птицы островов северо-западной части залива Петра Великого // Рус. орнитол. журн. 29 (1981): 4626-4660. EDN: BXJMUK.
• Масловский К.С., Вальчук О.П., Лелюхина Е.В. 2018. Дифференциальная миграция и динамика состояния транзитной популяции соловья-красношейки в Южном Приморье: анализ многолетних данных кольцевания в долине реки Литовка // Вестн. ДВО РАН 2: 19-28.
• Масловский К.С., Вальчук О.П., Спиридонова Л.Н. 2014. Комплексное изучение осенней миграции соловья-красношейки (Luscinia calliope) в Южном Приморье: анализ данных кольцевания и секвенирования гена цитохрома b митохондриальной ДНК // Ареалы, миграции и другие перемещения диких животных. Владивосток: 181-189.
• Михайлов К.Е. 1997. Закономерности высотно-биотопического распределения птиц в высокогорье Сихотэ-Алиня // Бюл. МОИП. Отд. биол. 102, 6: 20-27.
• Михайлов К.Е. 2014. Различия в заполнении тайги (сплошных массивов бореальных лесов) мелкими лесными птицами-мигрантами на примерах нескольких «модельных» для севера Приморского края групп видов Passeriformes. Часть 2 // Рус. орнитол. журн. 23 (979): 831-884. EDN: RXCEAD.
• Михайлов К.Е., Коблик Е.А. 2013. Характер распространения птиц в таёжно-лесной области севера Уссурийского края (бассейны рек Бикин и Хор) на рубеже XX и XXI столетий (1990-2001 годы) // Рус. орнитол. журн. 22 (885): 1477-1487. EDN: QBDPIL.
• Михайлов К.Е., Шибнев Ю.Б., Коблик Е.А. 1998. Гнездящиеся птицы бассейна Бикина (аннотированный список видов) // Рус. орнитол. журн. 7 (46): 3-19. EDN: KTNORV.
• Назаренко А.А. 1971а. Летняя орнитофауна высокогорного пояса южного Сихотэ-Алиня // Экология и фауна птиц юга Дальнего Востока. Владивосток: 99-126.
• Назаренко А.А. (1971б) 2023. О распространении некоторых птиц в южном Приморье // Рус. орнитол. журн. 32 (2319): 2928-2937. EDN: NTVSUY.
• Назаренко А.А. 2014. Новое о гнездящихся птицах юго-западного Приморья: неопубликованные материалы прежних лет об орнитофауне Шуфанского (Борисовского) плато // Рус. орнитол. журн. 23 (2051): 2953-2972. EDN: QWKYLR.
• Назаров Ю.Н. 2004. Птицы города Владивостока и его окрестностей. Владивосток: 1-276.
• Нечаев В.А. 1991. Птицы острова Сахалин. Владивосток: 1-748.
• Нечаев В.А. 1997. Новые сведения о распространении некоторых птиц Южного Приморья // Животный и растительный мир Дальнего Востока 3: 92-95.
• Нечаев В.А. (2014) 2023. Птицы залива Восток Японского моря // Рус. орнитол. журн. 32 (2322): 3076-3099. EDN: XWCSUG.
• Омелько М.А. 1956. О перелётах птиц на полуострове Де-Фриза // Тр. ДВФ АН СССР 3, 6: 337-357.
• Омелько М.А., Омелько М.М. 2010. Проблемы сохранения орнитофауны окрестностей г. Владивосток на примере полуострова Де-Фриза // 9-я Дальневост. конф. по заповедному делу. Владивосток: 312-317.
• Панов Е.Н. 1973. Птицы Южного Приморья (фауна, биология и поведение). Новосибирск: 1-376.
• Пржевальский Н.М. 1870. Путешествие в Уссурийском крае в 1867-1869 гг. СПб.: 1-298.
• Пукинский Ю.Б. 2003. Гнездовая жизнь птиц бассейна реки Бикин // Тр. С.-Петерб. общ-ва естествоиспыт. Сер. 4. 86: 1-267.
• Романов А.Л., Романова А.И. 1959. Птичье яйцо. М.: 1-620.
• Рябицев В.К. 2008. Птицы Урала, Предуралья и Западной Сибири: Справочник-определитель. Екатеринбург: 1-634.
• Сотников В.Н. 2023. Каталог коллекций. Птицы – Aves. Оологическая и нидологическая коллекции. Вып. 2. Воробьинообразные – Passeriformes. Киров: 1-304.
• Спангенберг Е.П. 1940. Наблюдения над распространением и биологией птиц в низовьях реки Имана // Тр. Моск. зоопарка 1: 77-136.
• Спангенберг Е.П. (1965) 2014. Птицы бассейна реки Имана // Рус. орнитол. журн. 23 (1065): 3383-3473. EDN: SYCTWJ.
• Черский А.И. 1915. Орнитологическая коллекция музея общества изучения Амурского края во Владивостоке // Зап. Общ-ва изучения Амурского края 15: 143-276.
• Шохрин В.П. 2014. Характеристика осеннего пролёта воробьинообразных в Лазовском заповеднике (юго-восток Приморского края) // Ареалы, миграции и другие перемещения диких животных. Владивосток: 372-381.
• Шохрин В.П. 2017. Птицы Лазовского заповедника и сопредельных территорий. Лазо: 1-648.
• Шульпин Л.М. 1927. Новые данные по распространению птиц в Южно-Уссурийском крае и описание новых форм // Ежегодник Зоол. музея АН СССР 28, 3: 398-406.
• Hoyt D.F. 1979. Practical methods of estimating volume and fresh weight of bird eggs // Auk 96: 73-77.
• Nartshuk E.P., Matyukhin A.V., Shokhrin V.P. 2023. Birds as hosts of parasitic louse flies (Diptera) in the south of the Russian Far East // Зоол. журн. 102, 3: 310-316.
Юрий Николаевич Глущенко, Дмитрий Вячеславович Коробов. Тихоокеанский институт географии ДВО РАН, Владивосток, Россия. E-mail: yu.gluschenko@mail.ru; dv.korobov@mail.ru
Сергей Григорьевич Сурмач, Татьяна Владимировна Гамова. ФНЦ биоразнообразия наземной биоты Восточной Азии ДВО РАН, Владивосток, Россия. E-mail: ussuriland@mail.ru; birdsdv@mail.ru
Анатолий Петрович Ходаков. Владивосток, Россия. E-mail: anatolybpf@mail.ru
Владимир Несторович Сотников. Государственный природный заповедник «Нургуш», Киров, Россия. E-mail: sotnikovkgzm@gmail.com
Валерий Павлинович Шохрин. Объединённая дирекция Лазовского государственного природного заповедника им. Л.Г. Капланова и национального парка «Зов тигра», с. Лазо, Приморский край, Россия. E-mail: shokhrinv@mail.ru
Источник
Русский орнитологический журнал 2026, экспресс-выпуск 2638. стр. 3121-3150.