

Статус. Для Дальнего Востока России малая колпица Platalea minor Temminck et Schlegel 1849 является недавним вселенцем и в настоящее время очень редким локально гнездящимся перелётным видом с положительным трендом численности.
Краткая историческая справка. Первые встречи с малой колпицей в России произошли в 1995 году, когда на юге Приморского края одиночную особь неоднократно наблюдали в бухте Муравьиная (Уссурийский залив) с 22 июля по 27 августа, а другую птицу нашли убитой браконьерами в приустьевой части реки Туманная (залив Голубиный) 5 августа (Нечаев, Шибаев 1996). Позднее в последнем районе взрослую самку в брачном наряде регистрировали 26-28 мая 1996, а ещё 2 птиц отметили 27 июня 1999 (Литвиненко, Шибаев 1999). 11 июля 1999 трёх особей встретили на побережье Уссурийского залива (Нечаев 2003). Летом 2003 года в западном сегменте залива Петра Великого на острове Фуругельма наблюдали 4 малых колпиц, при этом впервые для территории России обнаружили гнездо с кладкой, которое впоследствии оказалось брошенным, вероятно, из-за гибели партнёра (Литвиненко, Шибаев 2005; Shibaev 2010). В дальнейшем на этом острове малые колпицы гнездились ежегодно, а их численность постепенно увеличивалась.
История исследований. Помимо случайных наблюдений малых колпиц в Приморском крае следует отдельно остановиться на специальных исследованиях этого вида. Они были начаты Ю.В. Шибаевым, который с 2003 по 2016 год регулярно находился на острове Фуругельма в

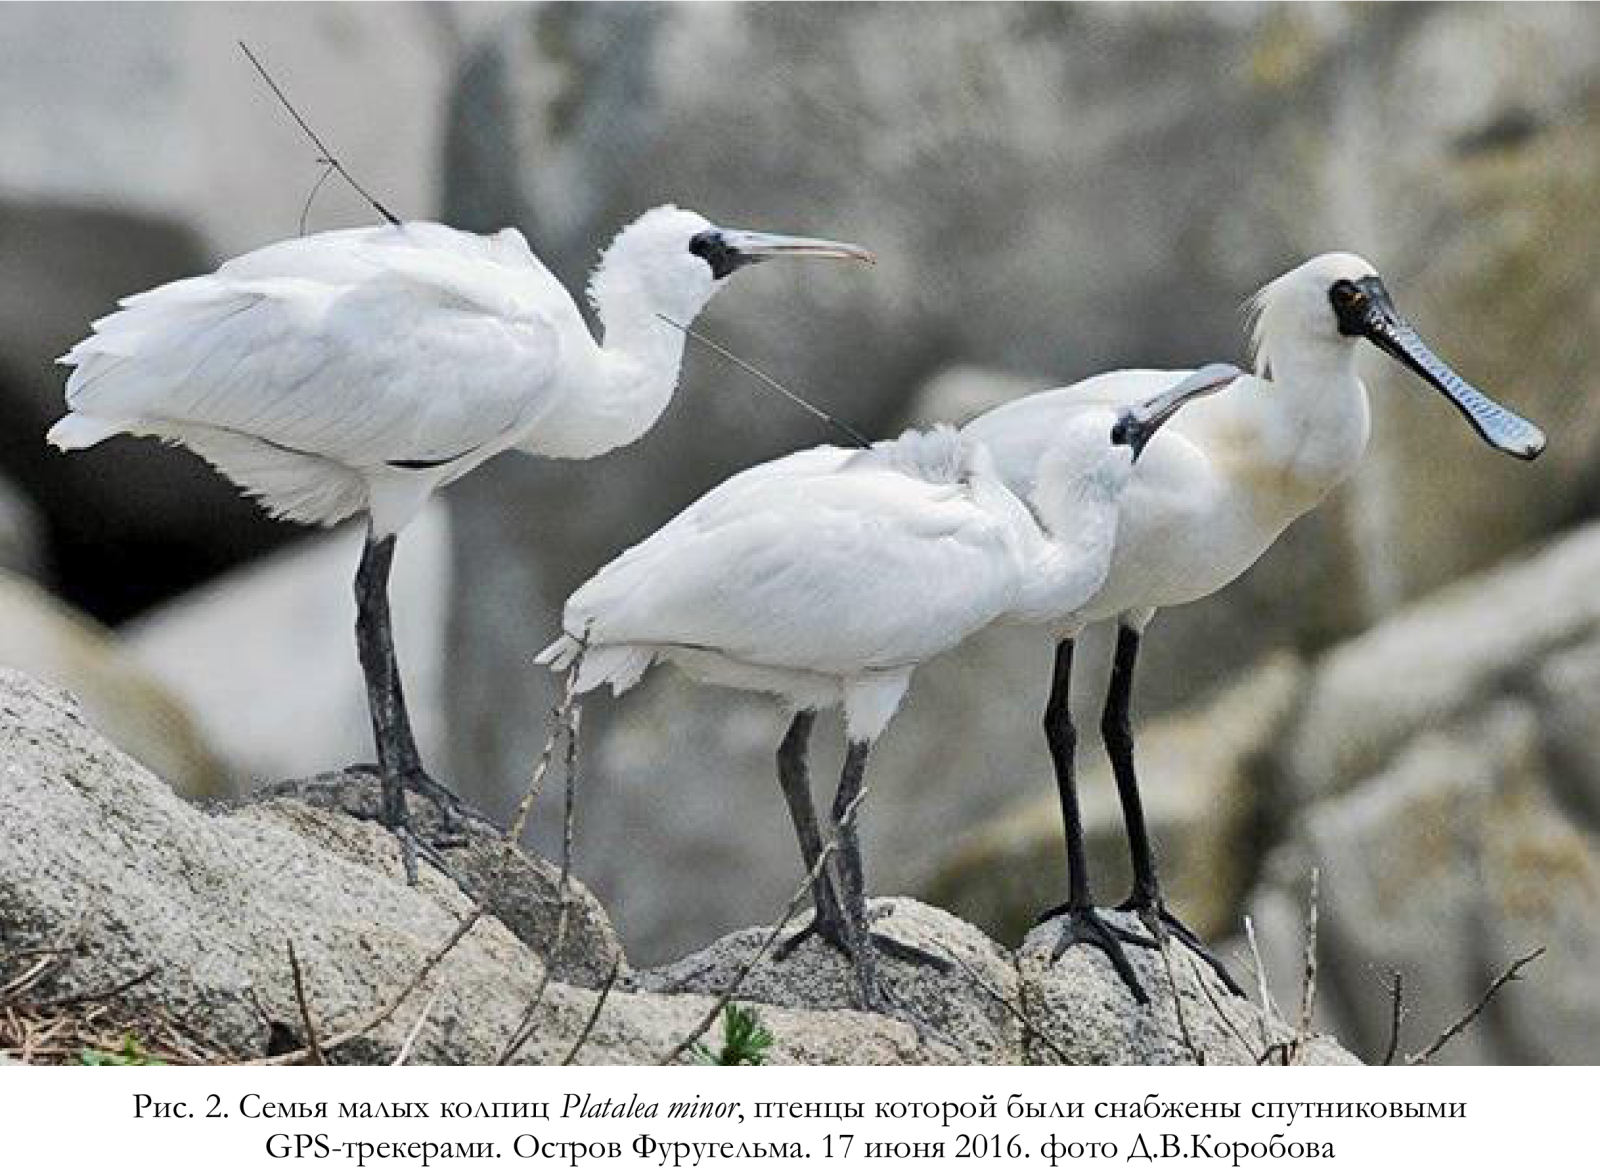
гнездовой период этих птиц. Часть собранных им материалов впоследствии была опубликована (Литвиненко, Шибаев 2005, 2011; Шибаев 2021; Shibaev 2010). Помимо визуальных наблюдений и учётов численности, Шибаев занимался кольцеванием птенцов, 30 из которых в 2006-2014 годах он пометил не только стандартными металлическими, но и цветными номерными пластиковыми кольцами (табл. 1, рис. 1), а в 2016 году он снабдил двух птенцов спутниковыми GPS-трекерами (рис. 2).

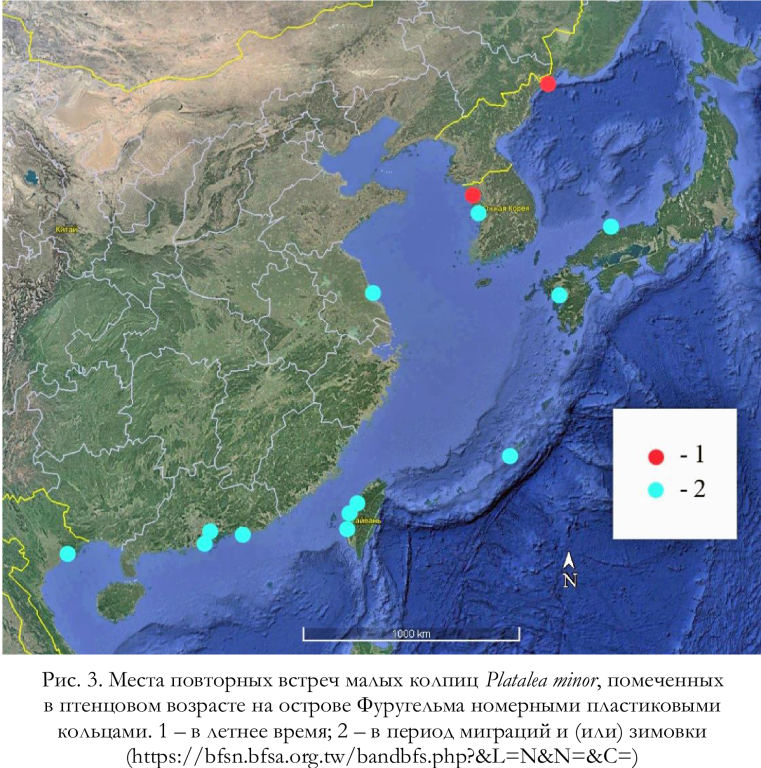
Мечение пластиковыми кольцами имело определённый успех в выяснении путей миграции и мест зимовок малых колпиц, гнездящихся в Приморском крае (Литвиненко, Шибаев 2011; рис. 3). Позднее колпиц с пластиковыми кольцами, надетыми Ю.В. Шибаевым на острове Фуругельма, мы наблюдали неоднократно (табл. 1, рис. 1), что также оказалось важным в деле изучения различных моментов в жизни этих птиц. Результаты упомянутого выше спутникового мечения, к сожалению, остались неизвестными.
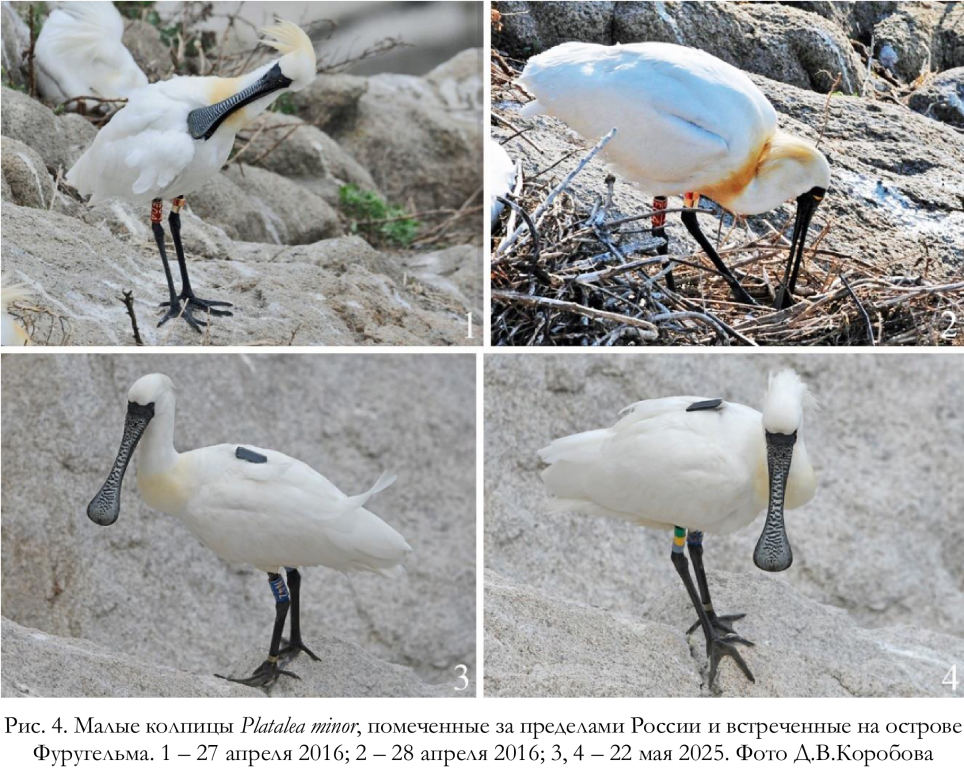
В Приморье зарегистрированы встречи малых колпиц, окольцованных за рубежом. Так, одна из птиц, «помеченная цветными метками зимой на о. Окинава (К.Озаки, личн. сообщ.), была встречена нами летом на о. Фуругельма» (Литвиненко, Шибаев 2011, с. 500). Две другие находки на этом острове малых колпиц, помеченных иностранными исследователями, сделаны нами 27, 28 апреля 2016 и 22 мая 2025. Первая из них (рис. 4.1,2), будучи окольцованная птенцом 30 июня 2010 на необитаемом острове Гузи-до (Guzi-do) в Жёлтом море (Южная Корея), достоверно гнездилась на острове Фуругельма в 2016 году. Вторая малая колпица, которую обнаружили ослабленной 25 ноября 2022 на острове Тайвань, впоследствии была спасена и снабжена пластиковыми кольцами и спутниковым GPS-трекером. 22 мая 2025 мы наблюдали её на острове Фуругельма (рис.4.3,4).
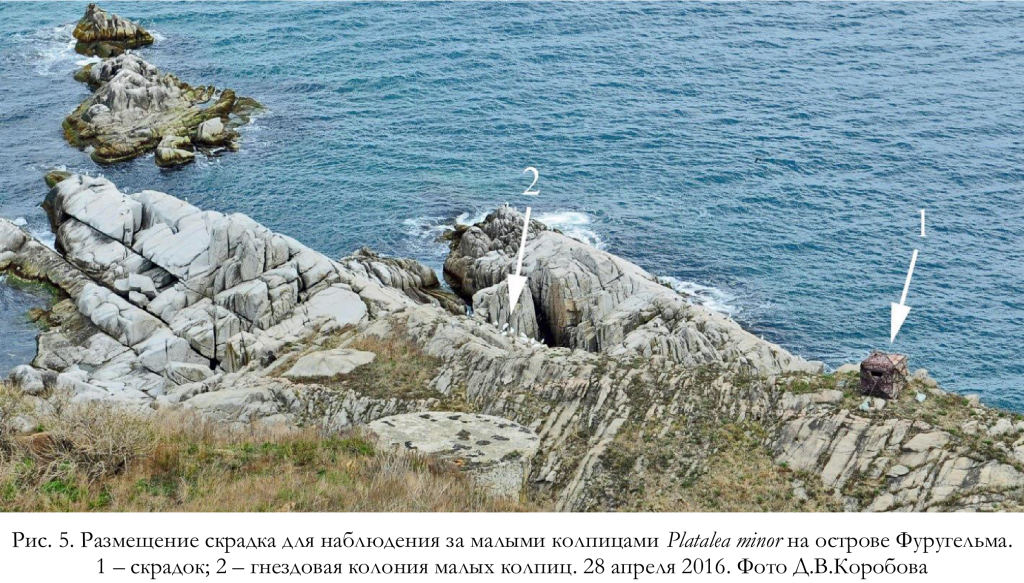
Наши специальные наблюдения за малыми колпицами были периодическими и всегда носили краткосрочный характер. Они проводились на местах размножения на острове Фуругельма в 2016, 2017, 2021, 2025 и 2026 годах. В целях минимизации фактора беспокойства при проведении наблюдений и фотосъёмки малых колпиц мы использовали жёсткую маскировочную палатку (скрадок) камуфляжной окраски, которую устанавливали в 40-50 м от колонии (рис. 5). Съёмку проводили с помощью фотоаппаратов Nikon (D300, 700, 500, 810; Z8) и Canon R6mII с объективами, имеющими фокусное расстояние от 200 до 600 мм. За все годы наблюдений в гнездовой колонии получено более 5 тысяч качественных снимков малых колпиц. В 2025 году дополнительно к этому получены фотографии, выполненные нами при работе с БПЛА марки DGI Mavic 2 Pro. Съёмку с БПЛА проводили на высотах от 10 до 100 м.
Помимо этого, с апреля по сентябрь 2023 года мы проводили регулярный (два раза в месяц) учёт численности малых колпиц на западном побережье залива Петра Великого от озера Вторая Протока на юге до мыса Островок Фальшивый на севере.
Общая характеристика и полевые признаки. В отечественной литературе почти все данные о внешнем облике малой колпицы и признаках, отличающих птиц этого вида от обыкновенных колпиц Platalea leucorodia, обобщены (Литвиненко, Шибаев 2011), но при этом они недостаточно полные и основаны на анализе весьма ограниченного материала (в частности, совсем не отражают индивидуальной изменчивости).
Для того, чтобы читатель получил как можно большее количество информации, необходимой для того, чтобы минимизировать вероятность ошибки в определении видовой принадлежности колпиц в природных условиях русского Дальнего Востока, рассмотрим эту проблему более детально, насколько возможно полно проиллюстрировав текст фотографическим материалом.
По внешнему облику малая колпица – типичный представитель рода Platalea. Она имеет ряд характерных отличий от обыкновенной колпицы, с которой в настоящее время регулярно встречается в юго-западном сегменте Приморского края. Эти отличия затрагивают как общие размеры
(она в целом мельче), так и многие экстерьерные признаки, включая относительную длину клюва и ног (более коротконогая и короткоклювая); форму, размеры и окраску голого участка кожи, расположенного по бокам головы (далее «маска»); форму, размеры и окраску голого участка кожи под клювом, а также окраску клюва (дорзальной стороны надклювья). Поскольку эти признаки широко вариабельны, а детально рассмотреть их в природе удаётся не часто (ввиду относительной осторожности птиц, не всегда удачного ракурса, характера освещённости и т.д.), возможны ошибки в определении видовой принадлежности той или иной встреченной особи, особенно в случае, когда наблюдатель не имеет достаточного опыта работы с ними, руководствуясь запечатлёнными в памяти сведениями из справочников. Ситуацию с видовым определением колпиц в природе затрудняет наличие серии разных нарядов (возрастных и сезонных), а также присутствие в природной популяции определённого процента гибридных особей.
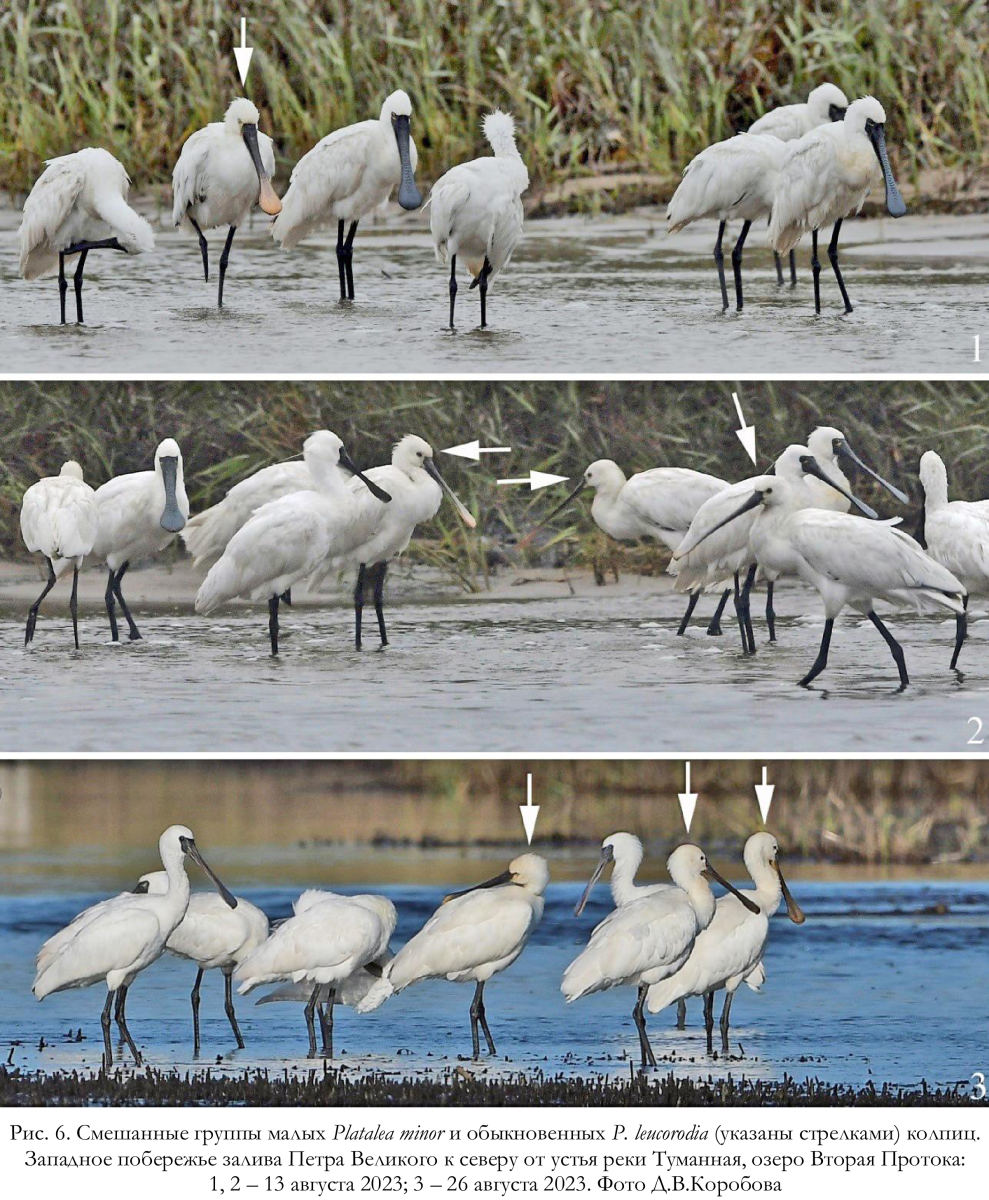
Размеры. Сравнивая различные морфометрические показатели малых колпиц, снятые с птиц (n = 13), пойманных в феврале 1998 года на зимовках в Гонконге (Melville et al. 2000), с таковыми обыкновенных колпиц, полученные из разных регионов (Белик 2011), можно отметить, что все они широко перекрываются. Это делает размерные признаки не надёжными при определении двух рассматриваемых видов в природе. Для убедительности приведём несколько снимков колпиц этих двух видов, которые находятся в смешанных группах (рис. 6).
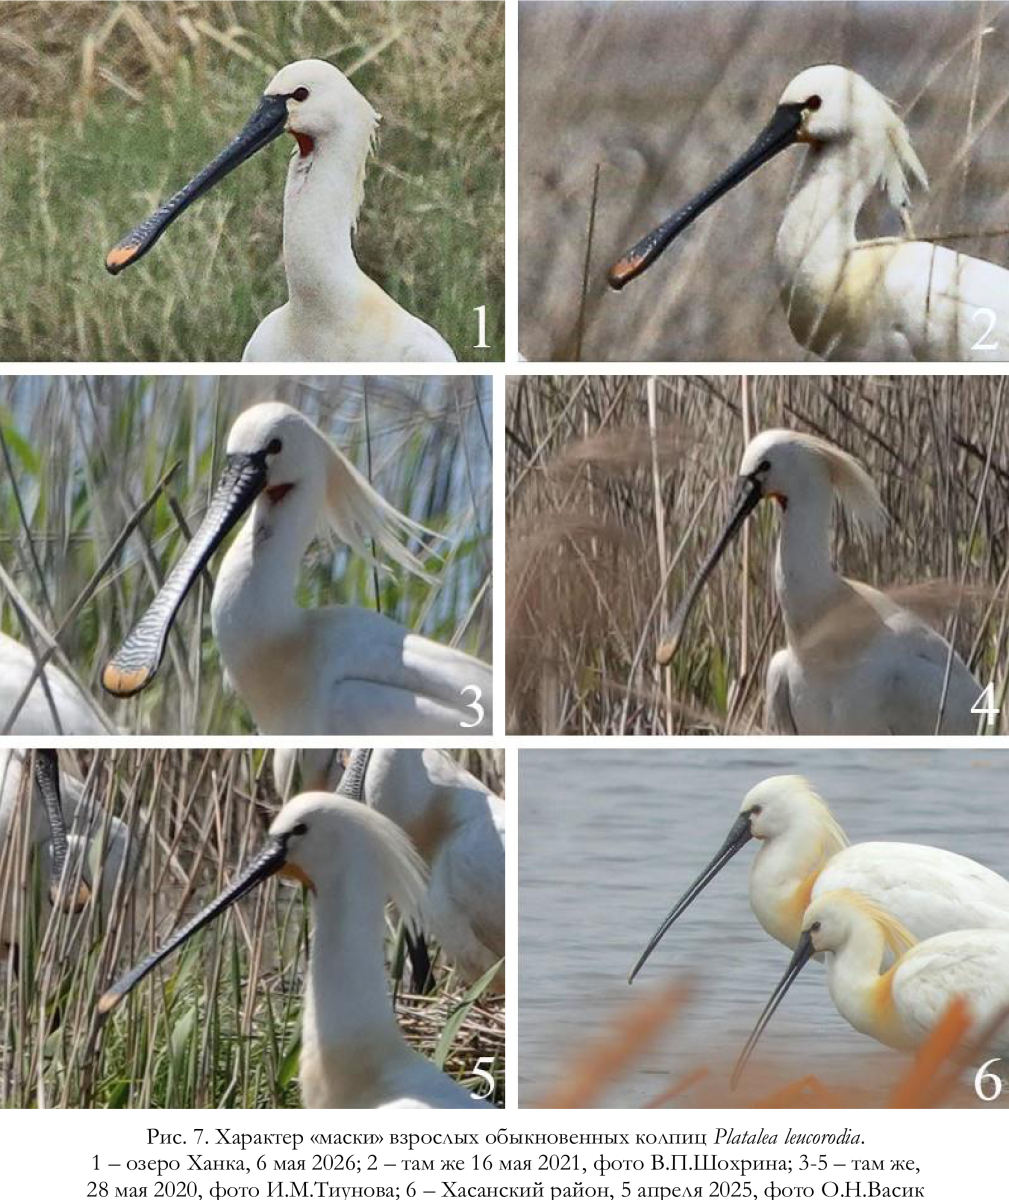
Форма и размеры «маски» взрослых птиц. У обыкновенных колпиц «маска» относительно узкая. В виде двухцветной полосы она тянется от основания лба и надклювья до глаза (не охватывая глаз, который при этом оказывается на белом фоне). Верхняя (более узкая) часть этой полосы чёрная, а нижняя – белёсая (молочно-белая). При наблюдении издали её нижняя часть сливается с белым оперением, расположенным снизу, создавая ложный эффект очень узкой «маски» только чёрного цвета (рис. 7).
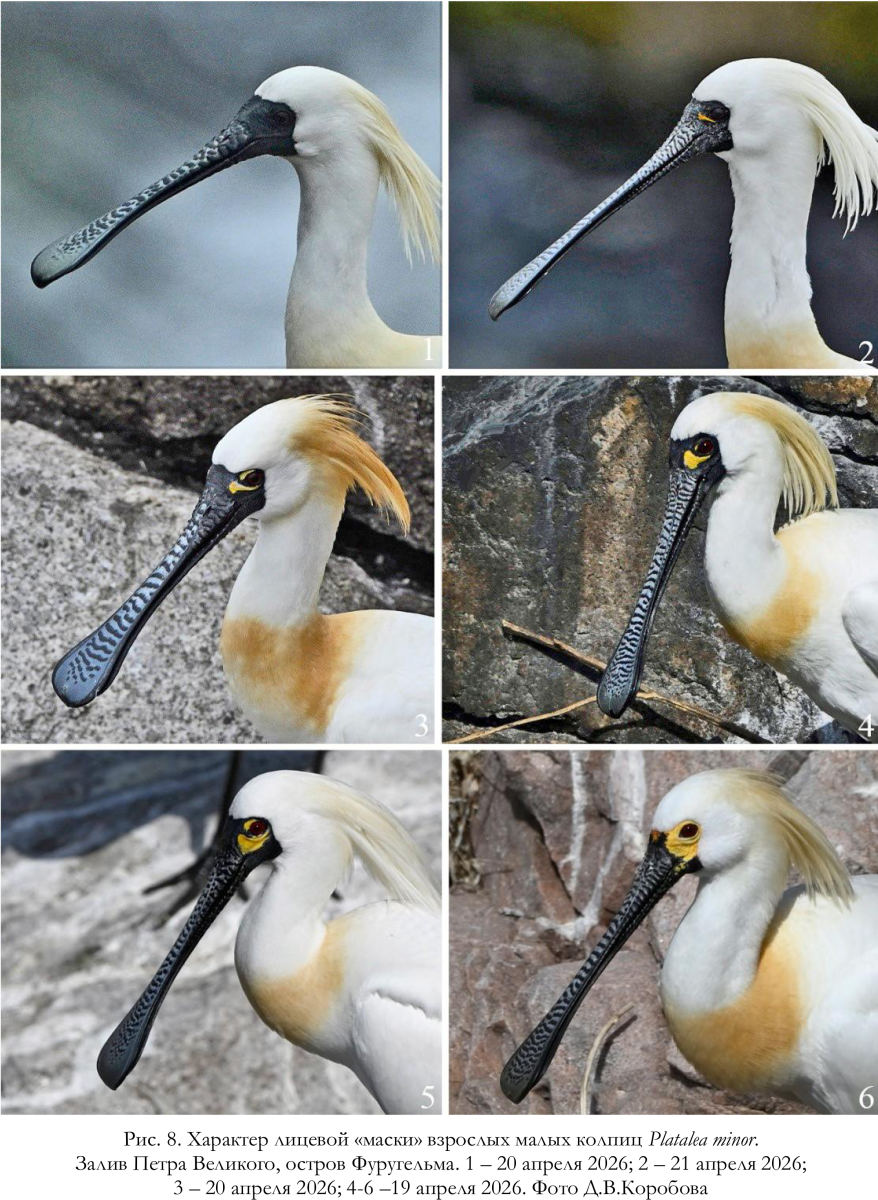
У малых колпиц «маска» значительно более широкая, чем у обыкновенных. Она охватывает глаз, который таким образом оказывается на чёрном фоне окружающего участка голой кожи (рис. 8). У многих особей на «маске» имеется в различной степени развитый охристый рисунок (в очень редких случаях он молочно-белый, как у обыкновенных колпиц).
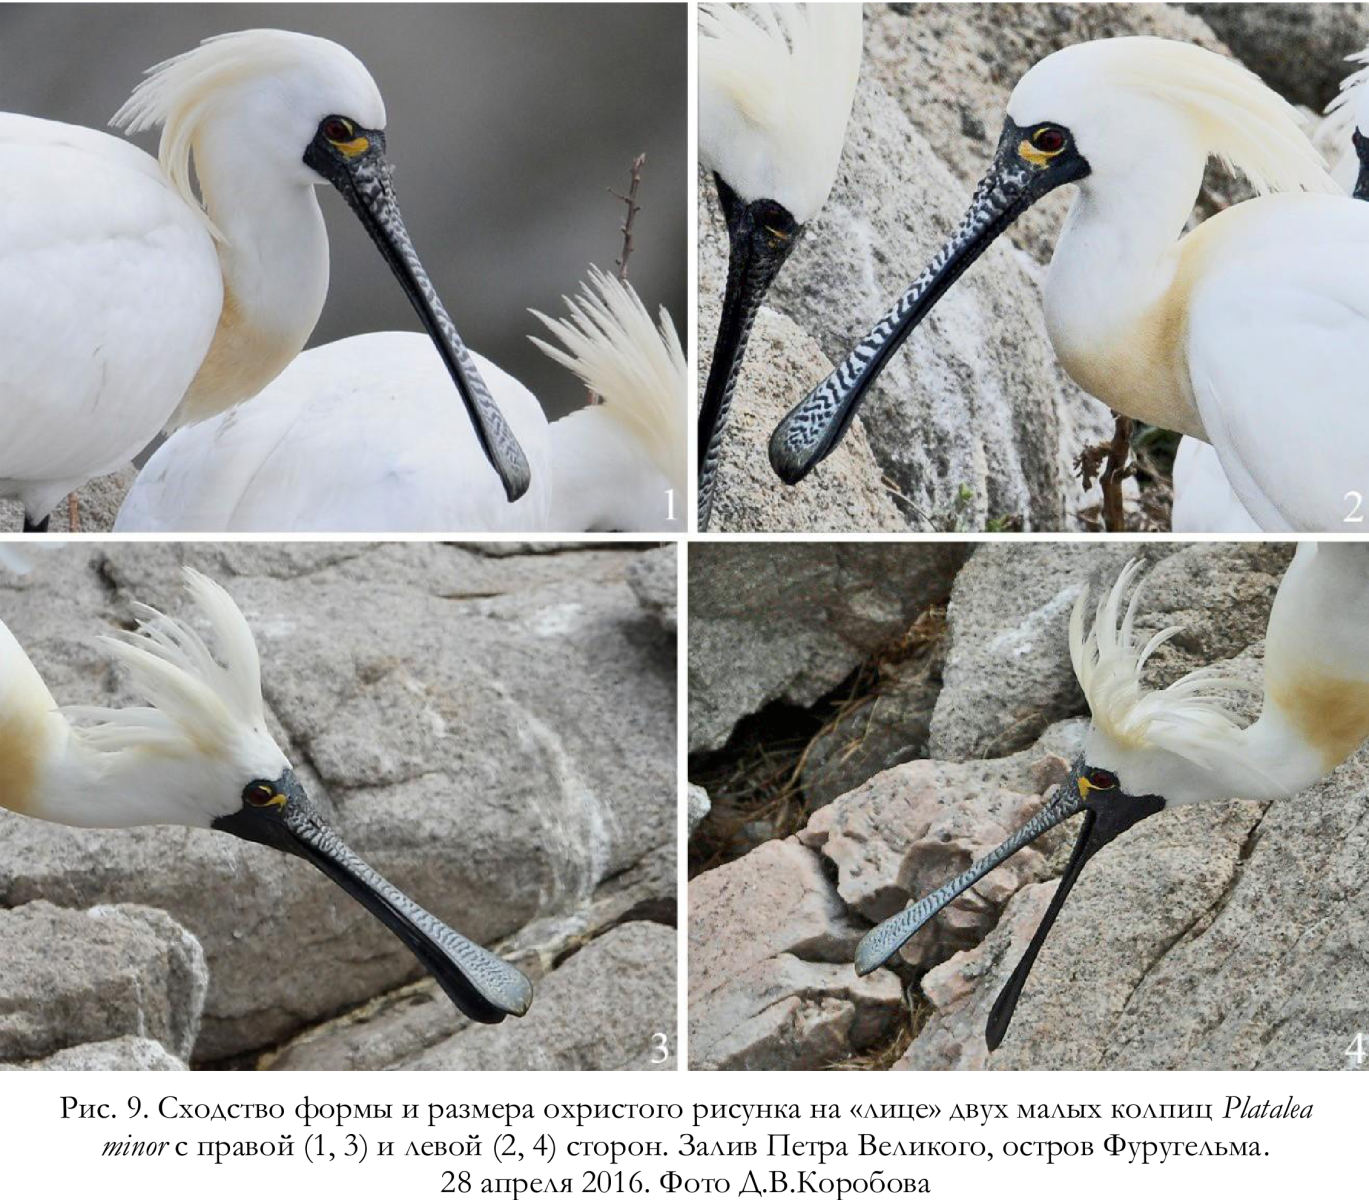
Его характер ранее был кратко описан следующим образом: «На чёрном фоне “лица” выделяются жёлтые веки: верхнее – узкое, нижнее – шире (спереди от глаза цветовое поле века часто продолжается в виде жёлтого пятна)» (Литвиненко, Шибаев 2011, с. 498). По нашим данным, охристый («жёлтый») рисунок индивидуально очень изменчив. У некоторых особей он отсутствует (рис. 8.1), но чаще всего он есть, но выражен по-разному: от маленькой полосы у переднего края глаза (рис. 8.2) до абсолютного доминирования, когда отчасти он даже заходит на лоб и основание надклювья (рис. 8.6). С правой и левой сторон головы каждой особи абрис этого рисунка весьма сходен (но не идентичен!) (рис. 9) и в целом сохраняется с годами, что показано на основании фотографий одной из окольцованных особей, полученных в 2016 и 2026 годах (рис. 10). Таким образом, эта морфологическая особенность является достаточно хорошим индивидуальным маркёром некоторых особей малых колпиц.

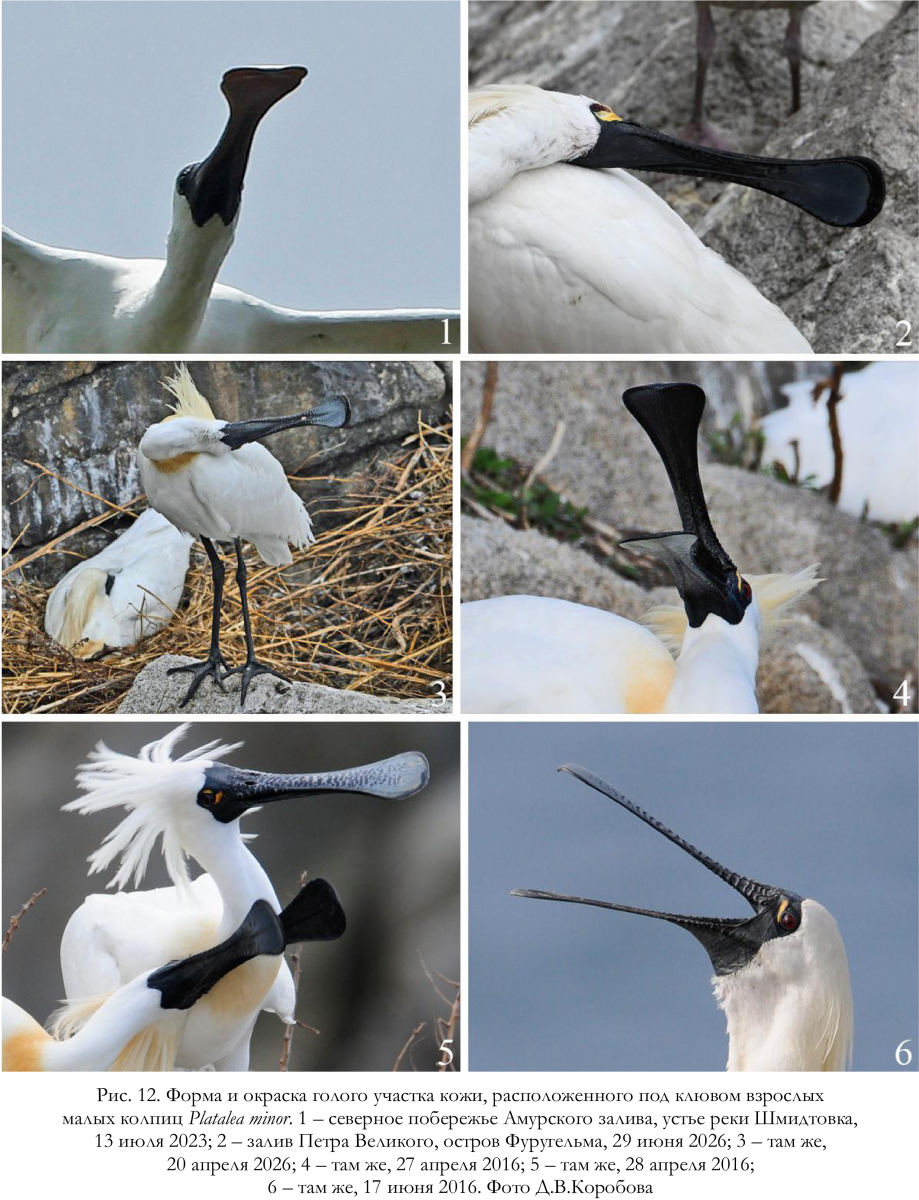
Форма, размеры и окраска голого участка кожи под клювом. У взрослых обыкновенных колпиц от уровня челюстных суставов данный участок далеко вдаётся клином вниз вдоль шеи и имеет охристую (оранжевожёлтую) окраску (рис. 11). В отличие от них, у малых колпиц голый участок кожи под клювом окрашен в чёрный цвет; он сравнительно короткий, при этом незначительно заходит вперёд от уровня челюстных суставов в сторону конца клюва, и в спокойном состоянии имеет W-образную форму, что бывает хорошо заметным только снизу (рис. 12.1-5). При широко открытом клюве голый участок кожи под клювом растягивается и становится полукруглым (рис. 12.6).

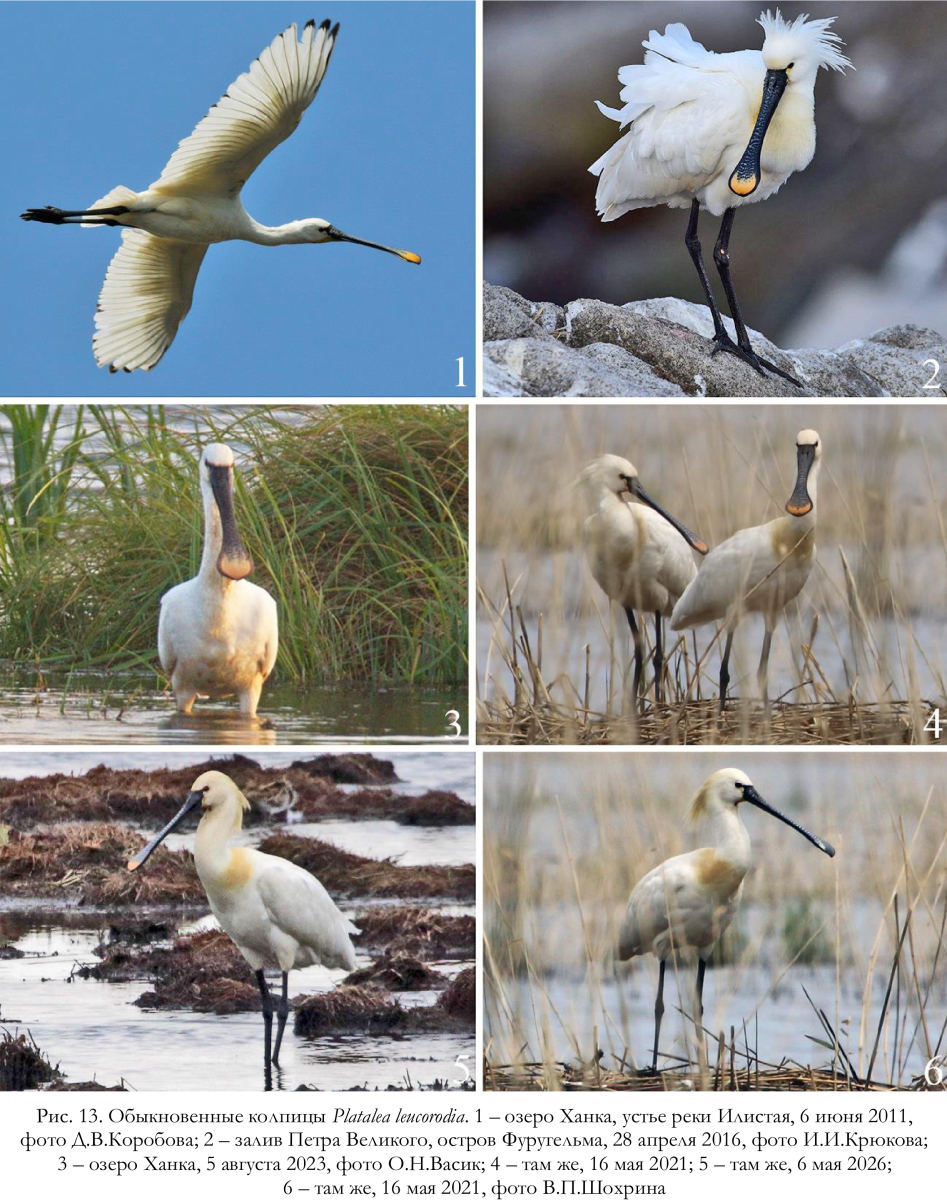
Окраска клюва. За редким исключением, надклювье взрослых обыкновенных колпиц при общей почти чёрной окраске имеет обширное охристое (оранжево-жёлтое) поле, резко выделяющееся на предвершинном участке надклювья (рис. 13.1-5). Достоверно выявлен лишь один случай, когда это поле полностью отсутствовало (рис. 13.6). Причины этого явления (индивидуальная изменчивость либо результат гибридизации с малой колпицей) неизвестны.
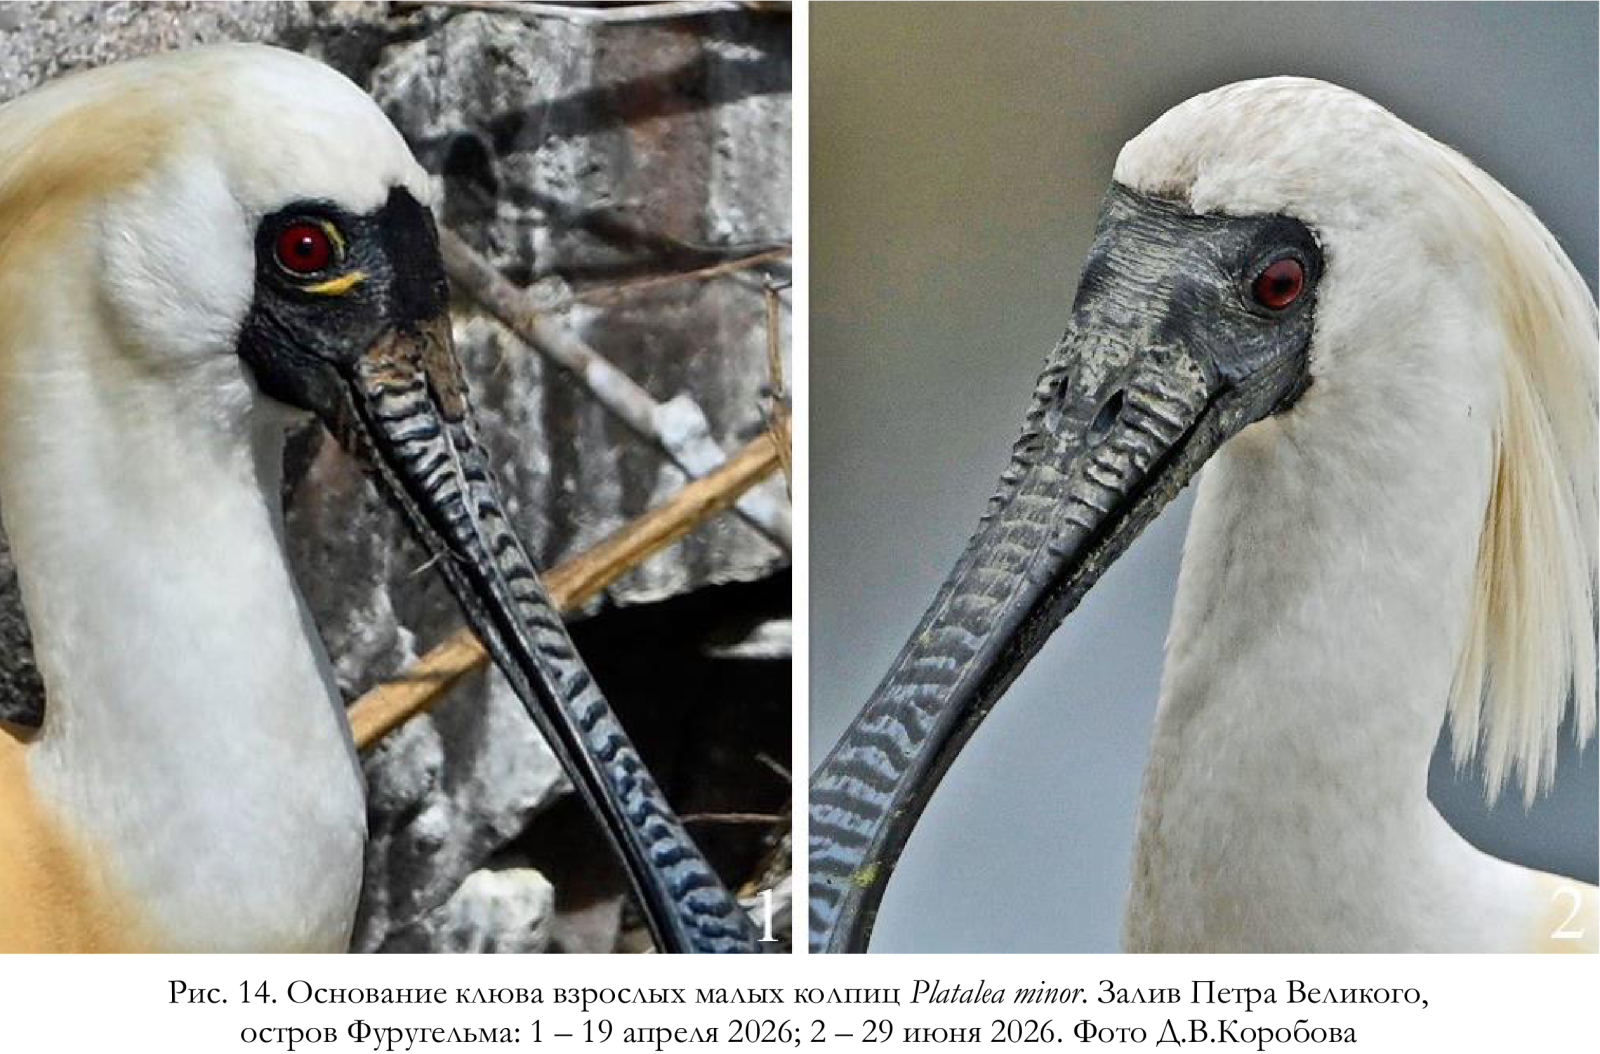
Надклювье большинства взрослых малых колпиц издали кажется целиком чёрным. При детальном рассмотрении в бинокль или на качественных фотографиях на нём в брачный период становится хорошо заметным сложный поперечный рисунок (подобный рисунок присутствует и на надклювье обыкновенных колпиц). Согласно имеющимся описаниям, этот рисунок «напоминает по расцветке шкуру зебры в миниатюре, он складывается из чёрных и белых узких полос примерно одинаковой ширины и издали кажется рельефным» (Литвиненко, Шибаев 2011, с. 498). На самом деле верх и бока надклювья действительно рельефные (морщинистые), при этом многочисленные валики, которые более высокие у основания рамфотеки (рис. 14), ориентированы поперёк. Они окрашены в чёрный цвет, а пространство между ними свинцово-серое, слегка блестящее, что придаёт рисунку ещё большую чёткость.
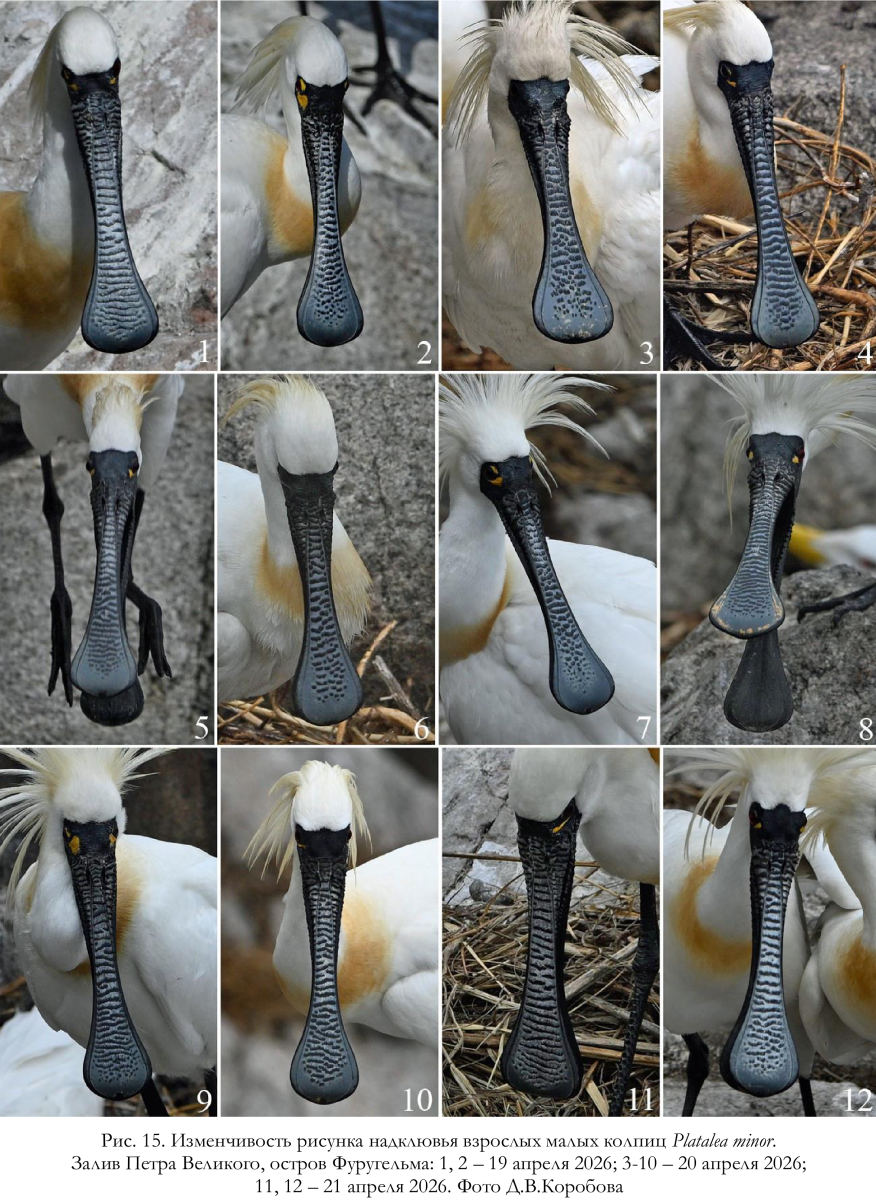
Размеры и форма валиков плоской вершины надклювья строго индивидуальны (рис. 15), что при необходимости позволяет идентифицировать каждую особь при камеральной обработке отснятого в природе фотоматериала (во всяком случае, при анализе фотографий, сделанных в один и тот же сезон).
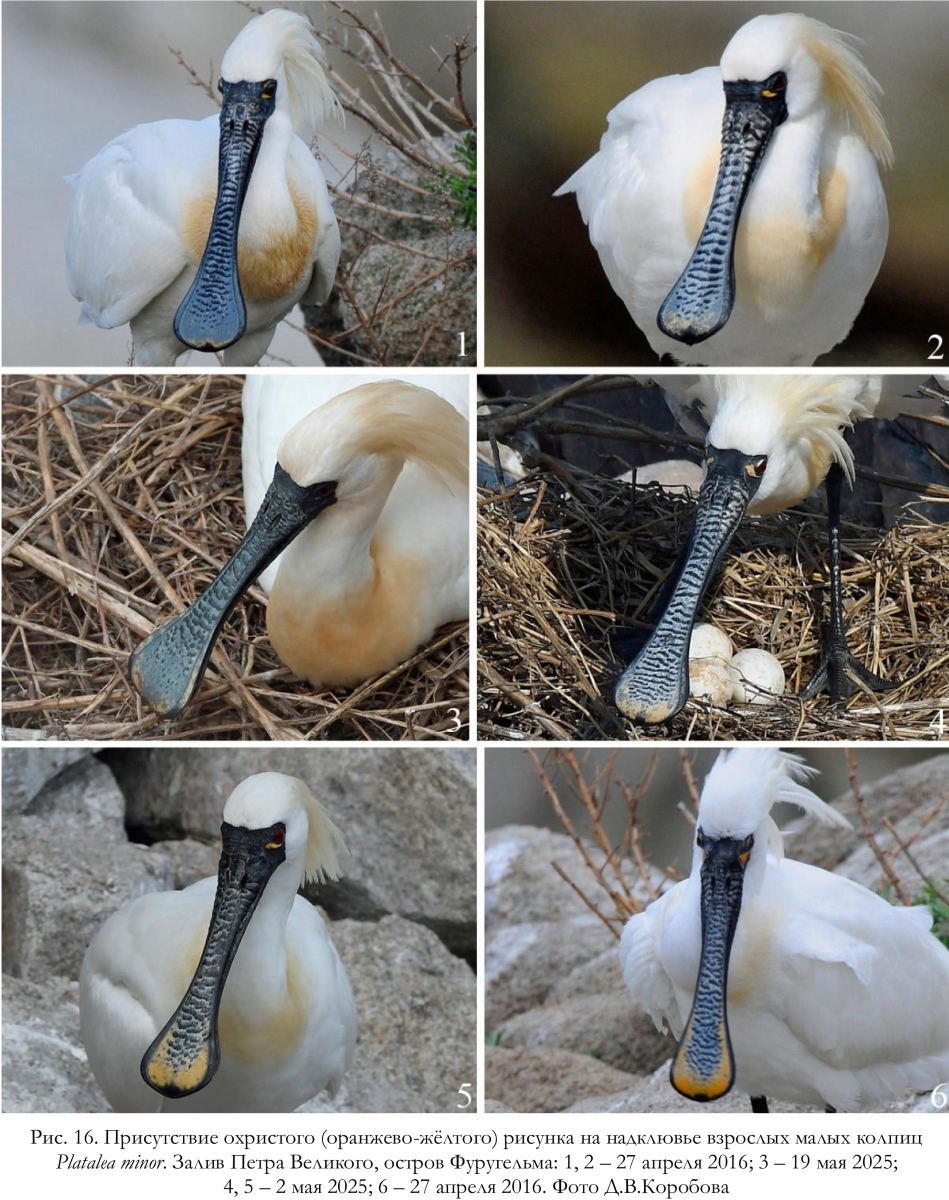
В отечественной литературе, при описании окраски клюва (Литвиненко, Шибаев 2011) опущен один очень важный признак, присутствующий, по нашим данным, у многих взрослых малых колпиц, – охристый (оранжево-жёлтый) рисунок на надклювье, который имеется почти у половины птиц, встреченных нами в Приморье. Чаще (рис. 16.1-3) он развит слабо и издали не заметен, поскольку представляет собой совокупность мелких пятен, хаотично разбросанных на «лопатке», либо сливающихся в неясный орнамент на её конце или по бокам. Однако у некоторых птиц он занимает значительную часть расширенной части клюва (рис. 16.5,6), и тогда он может быть развит не в меньшей степени, чем в типичном случае у обыкновенных колпиц. Таких птиц с определённой долей вероятности ранее могли относить к межвидовым гибридам (Тиунов и др. 2023), что при отсутствии других морфологических признаков промежуточного характера требует дополнительной проверки. В зарубежной литературе по поводу наличия этого рисунка имеются нечёткие и достаточно противоречивые сведения (Hancock et al. 1992).
Таким образом, наличие или отсутствие охристого рисунка на надклювье взрослых колпиц в брачном наряде также оказывается не совсем надёжным признаком для видового определения, поскольку иногда он может отсутствовать у некоторых обыкновенных колпиц и полностью отсутствует лишь немногим более чем у половины малых колпиц, обитающих в пределах Приморского края.
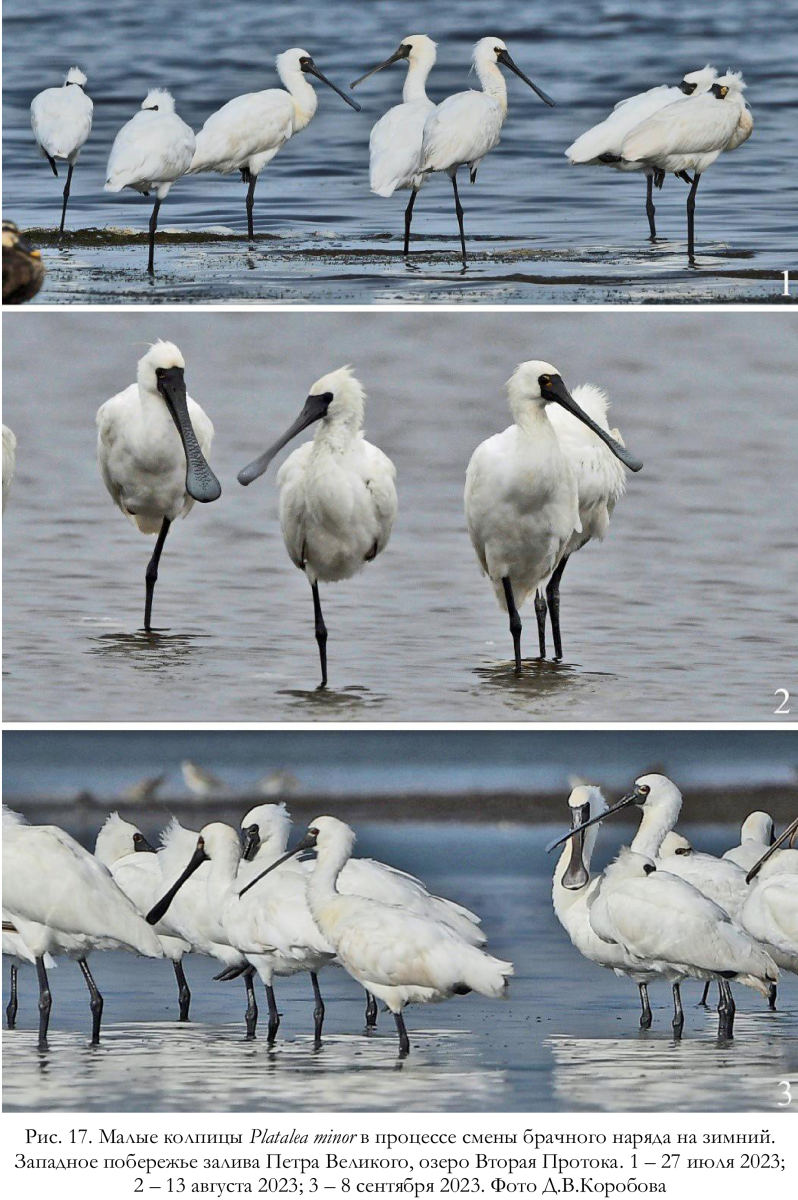
Зимний наряд. Этот наряд взрослые колпицы одевают в результате послегнездовой линьки. Как и у обыкновенных колпиц (Белик 2011), он отличается от брачного наряда отсутствием длинного хохла на голове и охристой окраски оперения на зобе.
Согласно описаниям, имеющимся в отечественной литературе, «на протяжении гнездового сезона у взрослых птиц идёт постепенное изнашивание пера. Издали это заметно, в частности, по снашиванию оперения хохла. К моменту, когда семья покидает гнездовую колонию, от хохлов у взрослых птиц-родителей остаются отдельные перья или их небольшие пучки. Тускнеет и почти исчезает жёлто-охристый оттенок на шее, загрязняется оперение в целом» (Литвиненко, Шибаев 2011, с. 499).
По нашим данным, которые полностью согласуются с изложенными выше описаниями, зимний наряд формируется постепенно начиная со второй половины июня или с начала июля (рис. 17.1), продолжаясь в августе (рис. 17.2) и сентябре (рис. 17.3), а заканчиваясь, вероятно, только на зимовках.
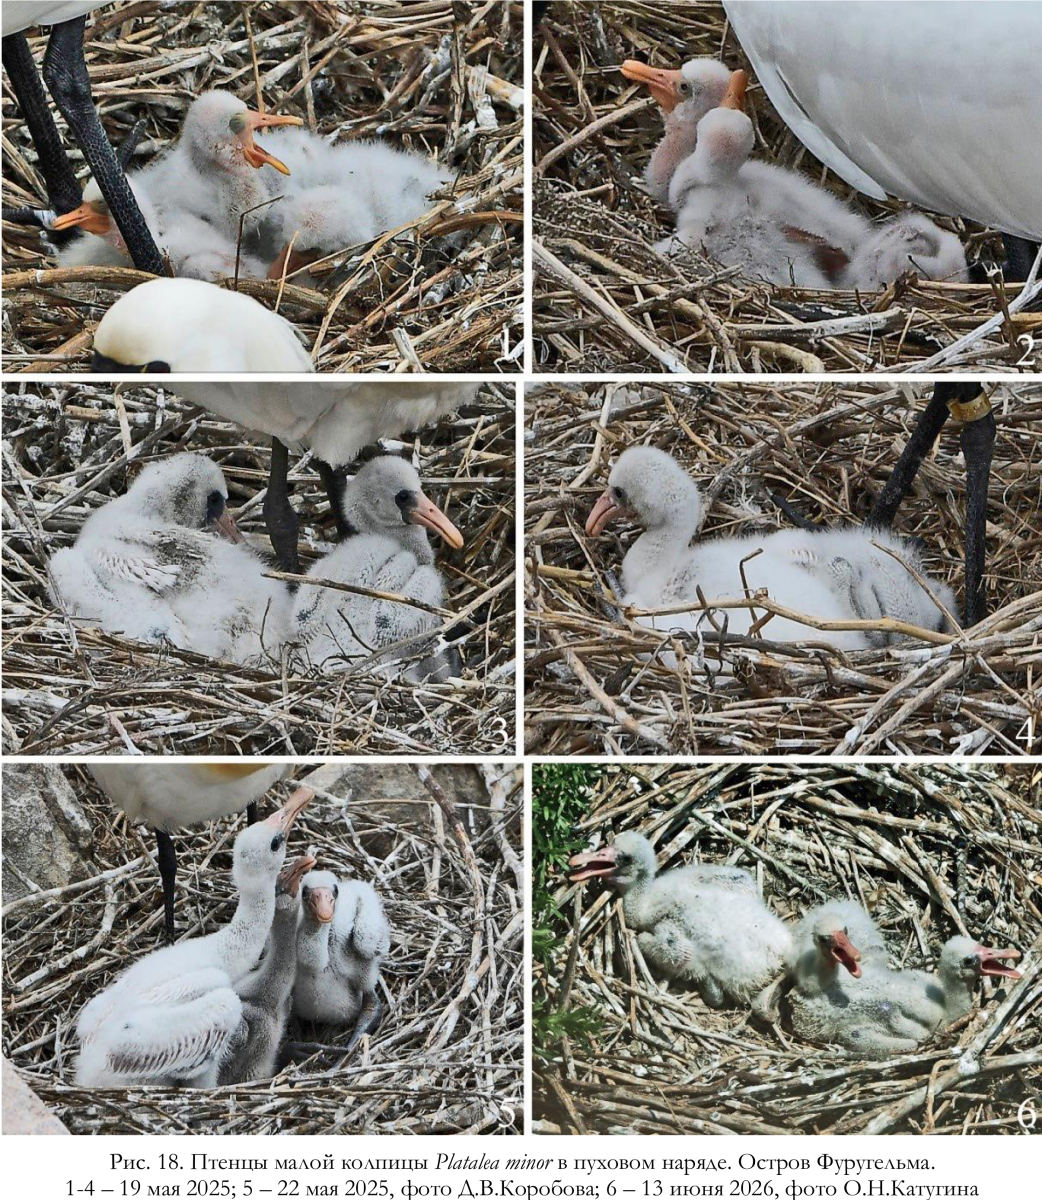
Пуховой наряд. Для обыкновенной колпицы приводят два пуховых наряда: эмбриональный, в котором птенцы появляются из яиц, и ювенильный, который формируется примерно на 10-й день (Белик 2011).
Поскольку почти все наши наблюдения велись с большой дистанции, отметить подобные особенности онтогенеза малых колпиц не представлялось возможным. Согласно осмотру в бинокль и анализу многочисленных фотографий, эмбриональный пух птенцов малых колпиц белый, при этом просвечивающаяся сквозь него кожа, а также ноги и клюв розовато-жёлтые, «маска» незначительно темнее, со свинцово-серым оттенком (рис. 18.1,2). С возрастом у пуховичков постепенно темнеет кожа, включая «маску», и ноги (рис. 18.3-6).
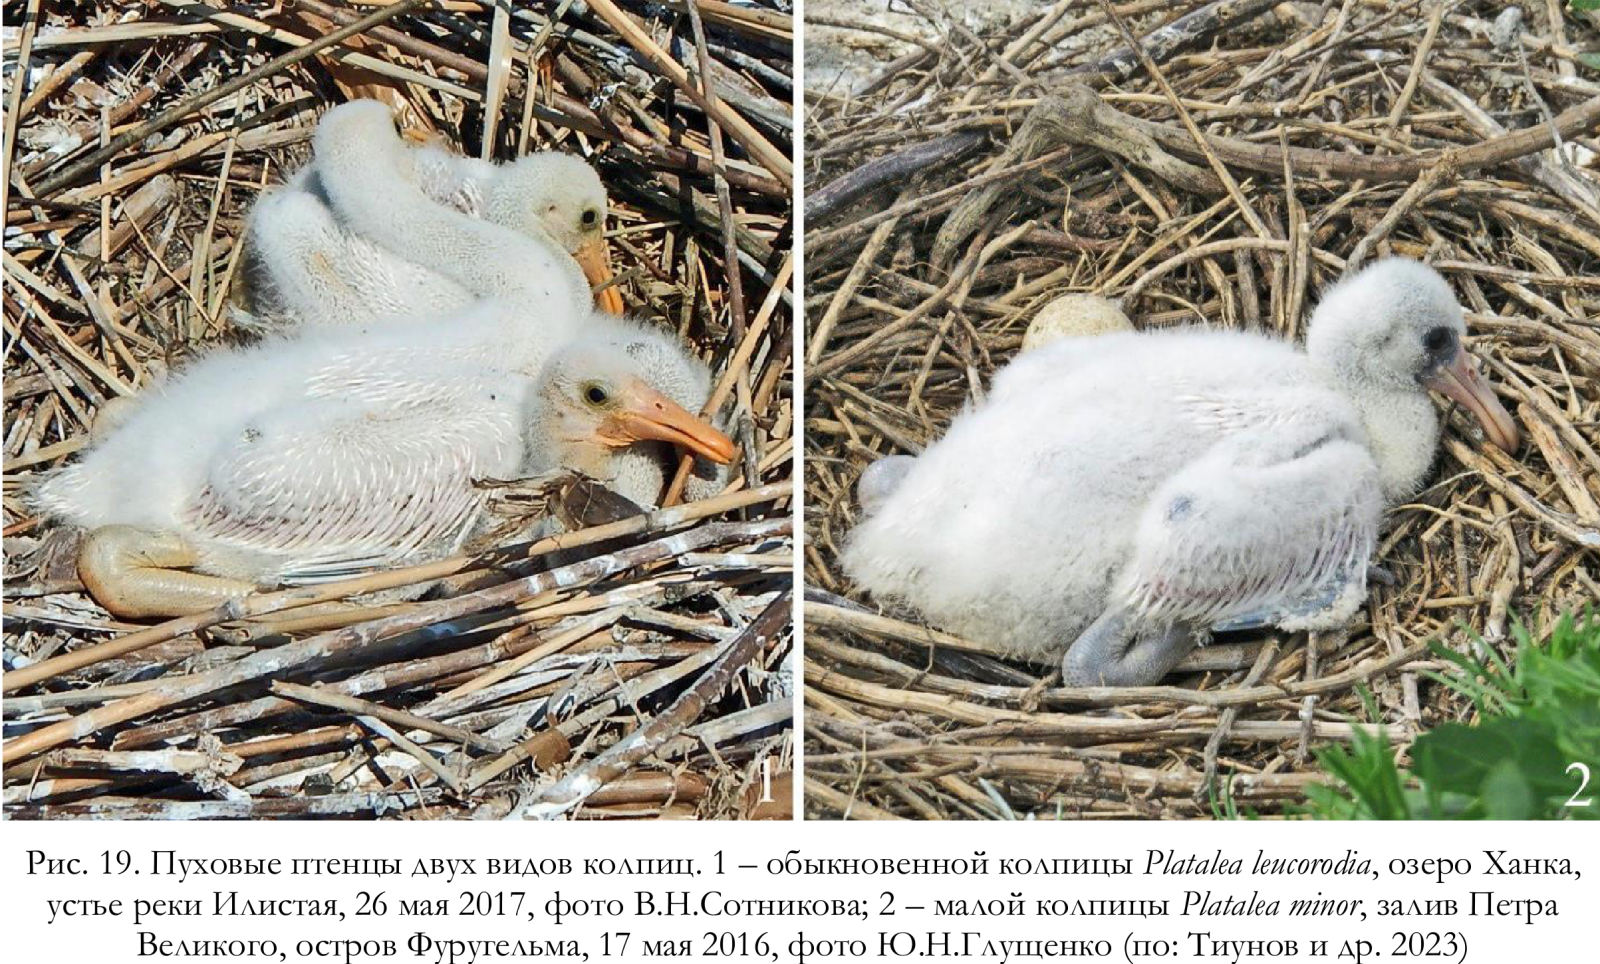
Известно, что клюв и ноги у пуховичков обыкновенной колпицы розовато-жёлтые (Спангенберг, Фейгин 1936), что полностью соответствует имеющимся у нас фотоснимкам (рис. 19.1). У подросшего пуховичка малой колпицы, примерно такого же возраста окраска ног имеет хорошо выраженный свинцово-сизый оттенок, который в значительной степени присутствует и на клюве (рис. 19.2). Судя по этим фотографиям, потемнение кожи, ног и клюва у птенцов малой колпицы происходит в более раннем возрасте, чем у обыкновенных.
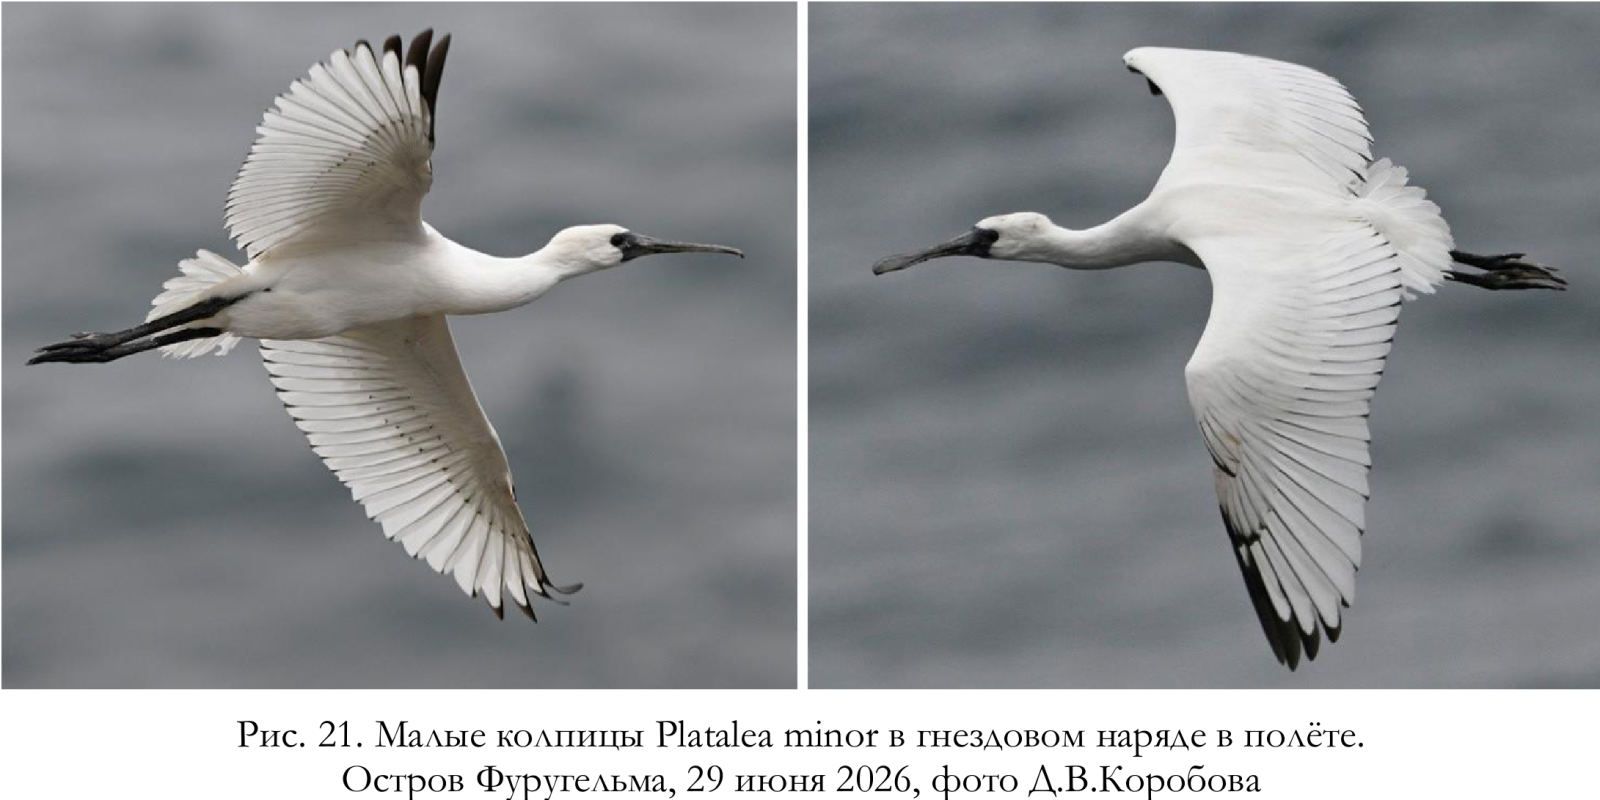
Гнездовой наряд. Контурное оперение птиц в гнездовом наряде белое (рис. 20), в то время как маховые перья, а также верхние и нижние кроющие крыла имеют тёмные стержни и чёрный рисунок на вершинах.
Он наиболее выражен на первых четырёх первостепенных маховых и последовательно уменьшается ближе к основанию крыла (рис. 21), при этом степень развития этого рисунка индивидуально изменчива. Клюв молодых особей заметно короче, чем у взрослых птиц; он гладкий, свинцово-серый с розоватым оттенком; ноги чёрные, а «маска» целиком чёрная (без жёлтого рисунка), и значительно менее обширная, чем у взрослых птиц, при этом её ширина индивидуально вариабельна.
Первый летний наряд. Малые колпицы в первом летнем наряде в Приморском крае встречаются очень редко: видимо, первое лето жизни большинство из них проводят южнее, ближе к основному ареалу вида или даже к районам зимовки. Достаточно подробное описание одного

экземпляра (хранится в Зоологическом музее Дальневосточного университета), который, судя по оперению, предположительно был в возрасте 1 года и 2-3 месяцев, имеется в отечественной литературе (Литвиненко, Шибаев 2011). Согласно изложенным выше данным, по облику он очень напоминает птицу в гнездовом наряде, но на голове уже имелся хохол (длина перьев от 25 до 30 мм), сменилась проксимальная часть первостепенных маховых, а остальное оперение было изношенным и выгоревшим; клюв постепенно светлел к концу. В нашем распоряжении имеется несколько летних фотографий малых колпиц, имеющих подобный облик (рис. 22), на основании чего их можно условно отнести к годовалым особям. Важно отметить, что надклювье у этих птиц ещё не имеет рельефа, присущего взрослым птицам, и, соответственно, характерного «чёрно-серого» рисунка.

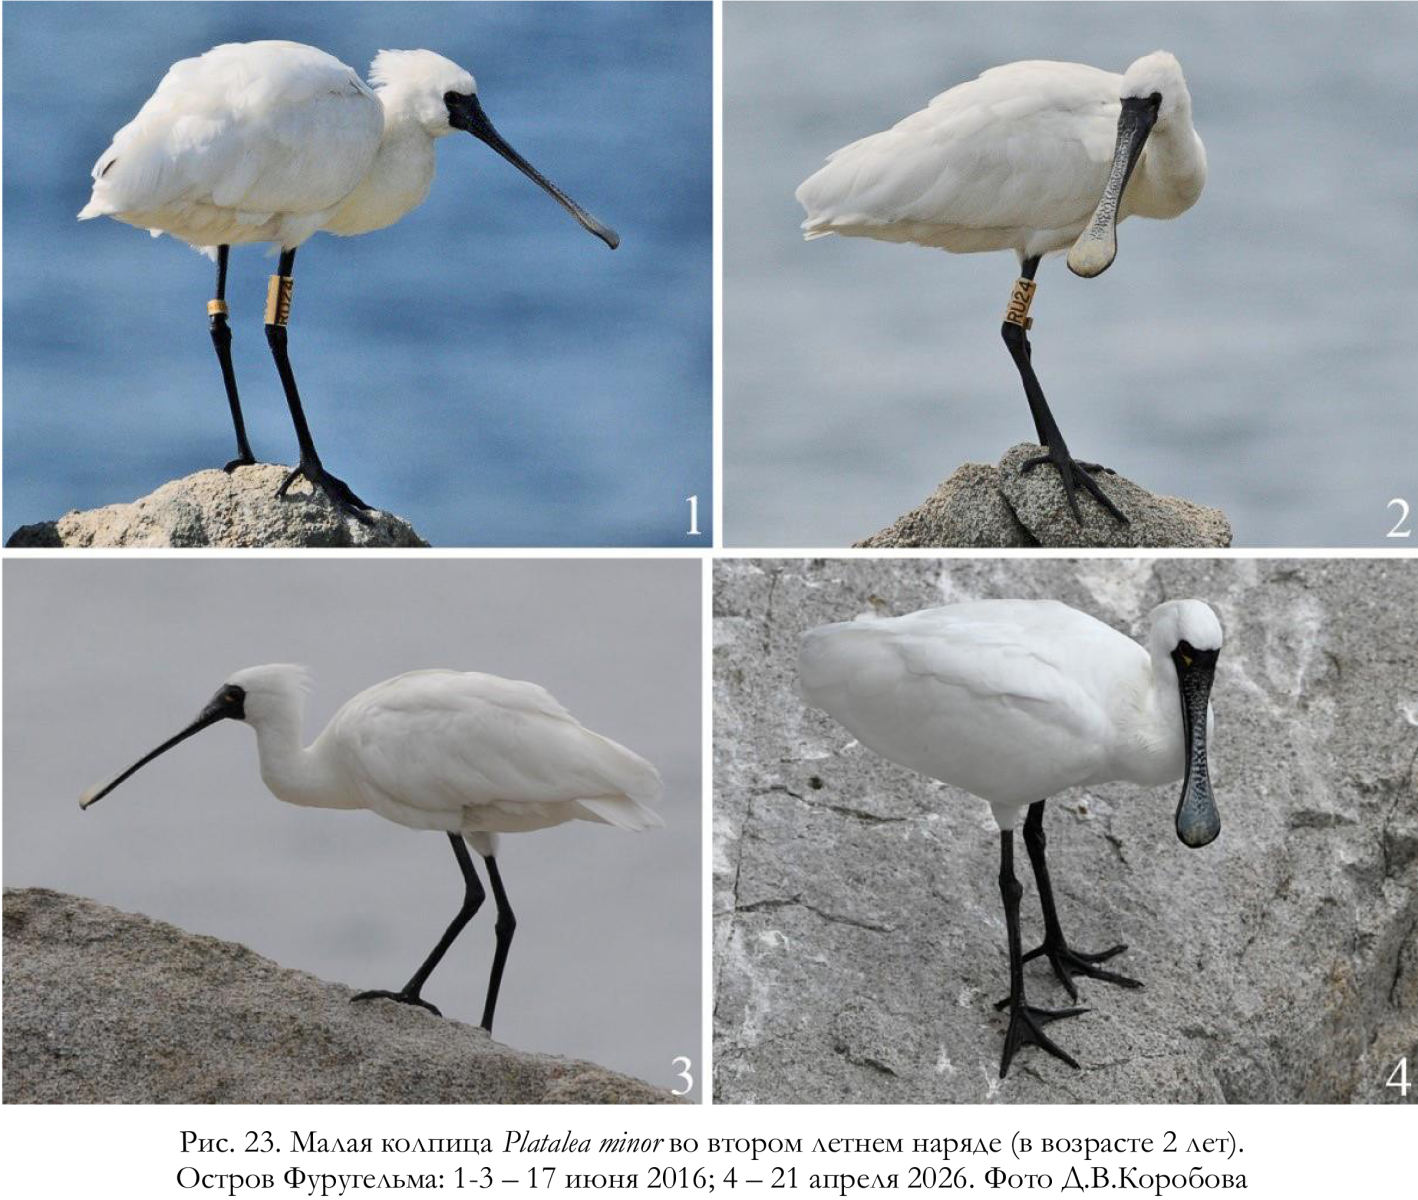
Второй летний (промежуточный) наряд. О том, как выглядят малые колпицы во втором летнем наряде (в возрасте около 2 лет), свидетельствуют фотографии одной из птиц, окольцованной, будучи птенцом, 23 июня 2014 на острове Фуругельма. Во время съёмки, проведённой нами 17 июня 2016 (рис. 23.1,2), эта птица имела очень короткий хохол, её покровное оперение было целиком белым, а на первостепенных маховых перьях был тёмный рисунок. В отличие от первогодков, её надклювье уже имело рельеф, достаточно хорошо выраженный в его начальной трети, но полностью отсутствующий в расширенной вершинной части (на «лопаточке»). Колпиц такого облика мы неоднократно наблюдали в гнездовой колонии как одиночными особями (рис. 23), так и в составе общих стай не гнездящихся птиц вместе с трёхлетками (рис. 24), значительная часть которых также не приступала к размножению.
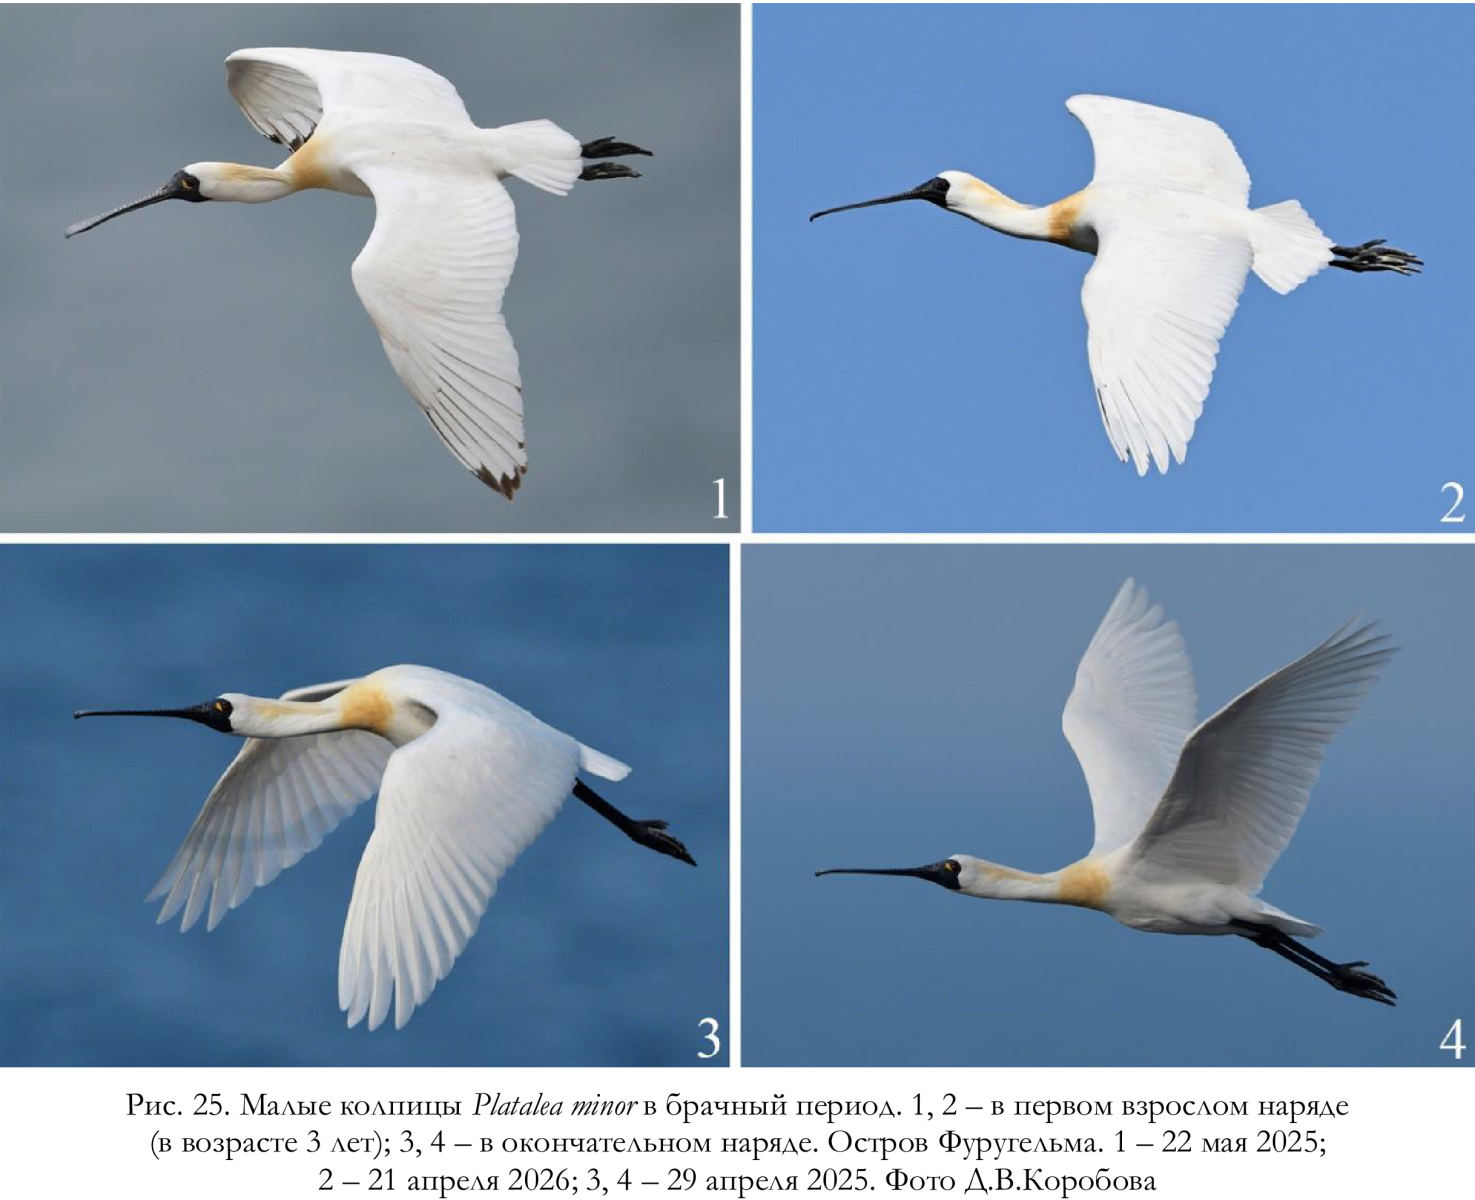
Первый взрослый и окончательный наряды. Первый взрослый наряд малые колпицы имеют в возрасте 3 лет. В брачный период такие птицы обычно отличаются от особей в соответствующем окончательном наряде только наличием тёмных «рисок» и стержней маховых перьев, заметных практически только у летящих птиц. Выраженность этих «меток» широко варьирует у разных особей от резко очерченных структур (рис. 25.1) до почти незаметных (рис. 25.2), увидеть которые можно лишь при детальном рассмотрении. У птиц в окончательном наряде (возраст 4 года и старше) маховые перья целиком белые (рис. 25.3,4).

Гибридизация. В условиях неволи внутри семейства ибисовых Threskiornithidae довольно обычны случаи гибридизации, которые имеют место, как внутри рода колпиц Platalea, так и между разными представителями подсемейств колпицевых Plataleinae и ибисовых Threskiornithinae (McCarthy 2006). Относительно гибридизации малой колпицы известен любопытный факт, когда в Берлинском зоопарке самка этого вида успешно скрестилась с самцом черноголового ибиса Threskiornis melanocephalus. У гибридного самца-потомка оперение головы было как у матери-колпицы, а клюв – как у отца-ибиса. Позже гибрид образовал пару с самкой розовой колпицы Platalea ajaja и эта смешанная пара произвела на свет несколько птенцов (Hancock et al. 1992). Таким образом, даже межродовые гибриды разных представителей семейства ибисовых могут сохранять фертильность.
Что касается гибридизации малой и обыкновенной колпиц, то она была выявлена на острове Гаксиам (Gaksiam) в Южной Корее, где самец P. leucorodia последовательно образовывал пары с двумя разными самками P. minor в 2012-2013 и 2014-2015 годах. Гибридное потомство (из 11 отложенных яиц успешно вылупились и выросли 9 птенцов) больше напоминало обыкновенных колпиц, имея более крупные размеры тела, более длинные клювы и ноги, чем у малых колпиц. У них также была узкая полоса чёрной голой кожи у основания верхней челюсти и на уздечке глаза, оранжево-жёлтый цвет на расширенной части клюва, жёлтый цвет под глазом и небольшой бледно-жёлтый голый подбородок, однако горло покрыто перьями как у малой колпицы (Kwon et al. 2017).
На острове Фуругельма предпосылки для возможной гибридизации двух видов колпиц впервые были выявлены в мае-июле 2006 года, когда в гнездовой колонии зарегистрировали не менее 5 обыкновенных колпиц, одна из которых (ещё не имеющая окончательного наряда) образовала пару с взрослой малой колпицей, а в течение второй половины июля неоднократно наблюдали кормление оперённого птенца обоими членами этой смешанной пары. В 2009 году половозрелая самка обыкновенной колпицы, сохраняющая некоторые черты ювенильного наряда, провела в колонии малых колпиц около 40 дней, совершая попытки спаривания с малой колпицей (Литвиненко, Шибаев 2011).
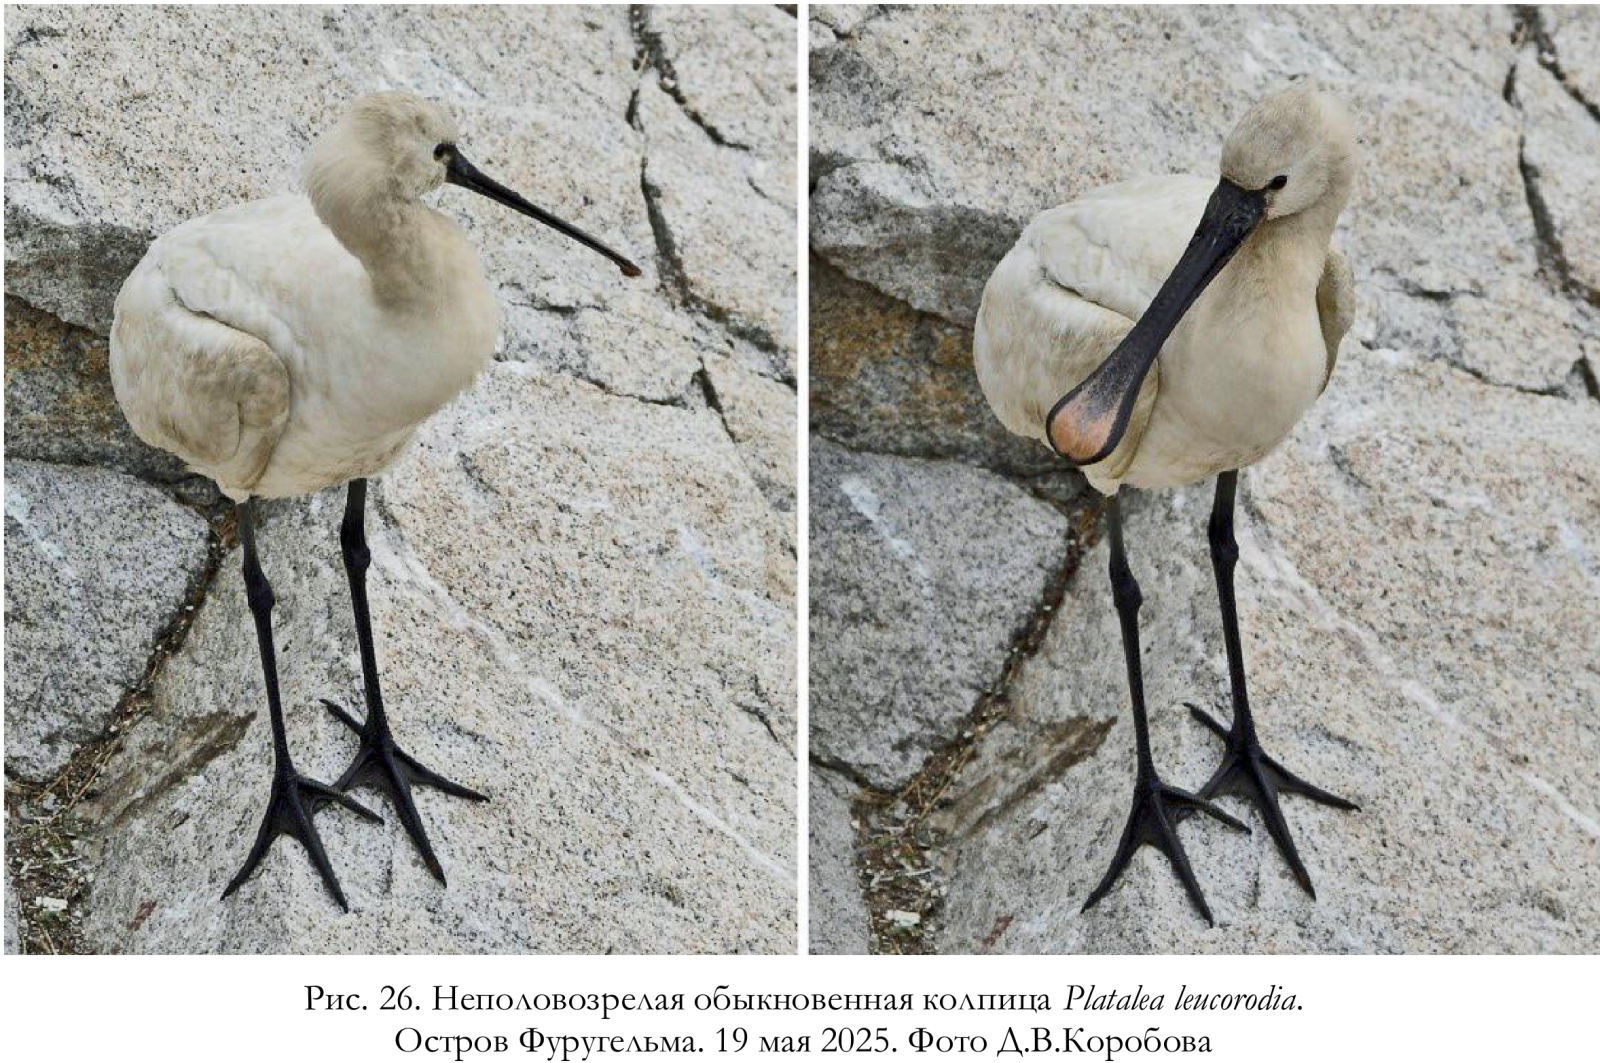
В годы наших наблюдений на острове Фуругельма птиц, которых с уверенностью можно было отнести к обыкновенным колпицам, достоверно наблюдали только дважды: 28 апреля 2016 отметили взрослую птицу в брачном наряде (рис. 13.2), а 19 мая 2025 зарегистрировали неполовозрелую особь (рис. 26). Особей, которые имели явные промежуточные морфологические признаки, указывающие на их гибридное происхождение, в 2016 году мы здесь не фиксировали, а в течение ряда последующих лет колонию на этом острове нам посещать не удавалось.
Позднее колпиц, которых мы признали в качестве фенотипически гибридных особей, наблюдали на озере Ханка. Так, 4 июня 2011 на окраине смешанной колонии цапель в дельте реки Илистая мы встретили и сфотографировали колпицу в полном брачном наряде (она имела длинный хохол охристого цвета и явный охристый налёт на перьях зоба), а, судя по наличию тёмного рисунка на первостепенных маховых, её возраст составлял 4 полных года. Она имела облик малой колпицы, но по размерам не отличалась от присутствующих рядом обыкновенных колпиц, а дистальная (расширенная) часть её надклювья имела явный охристый оттенок, что позволило высказать предположение о гибридном происхождении этого экземпляра (Коробов и др. 2012).
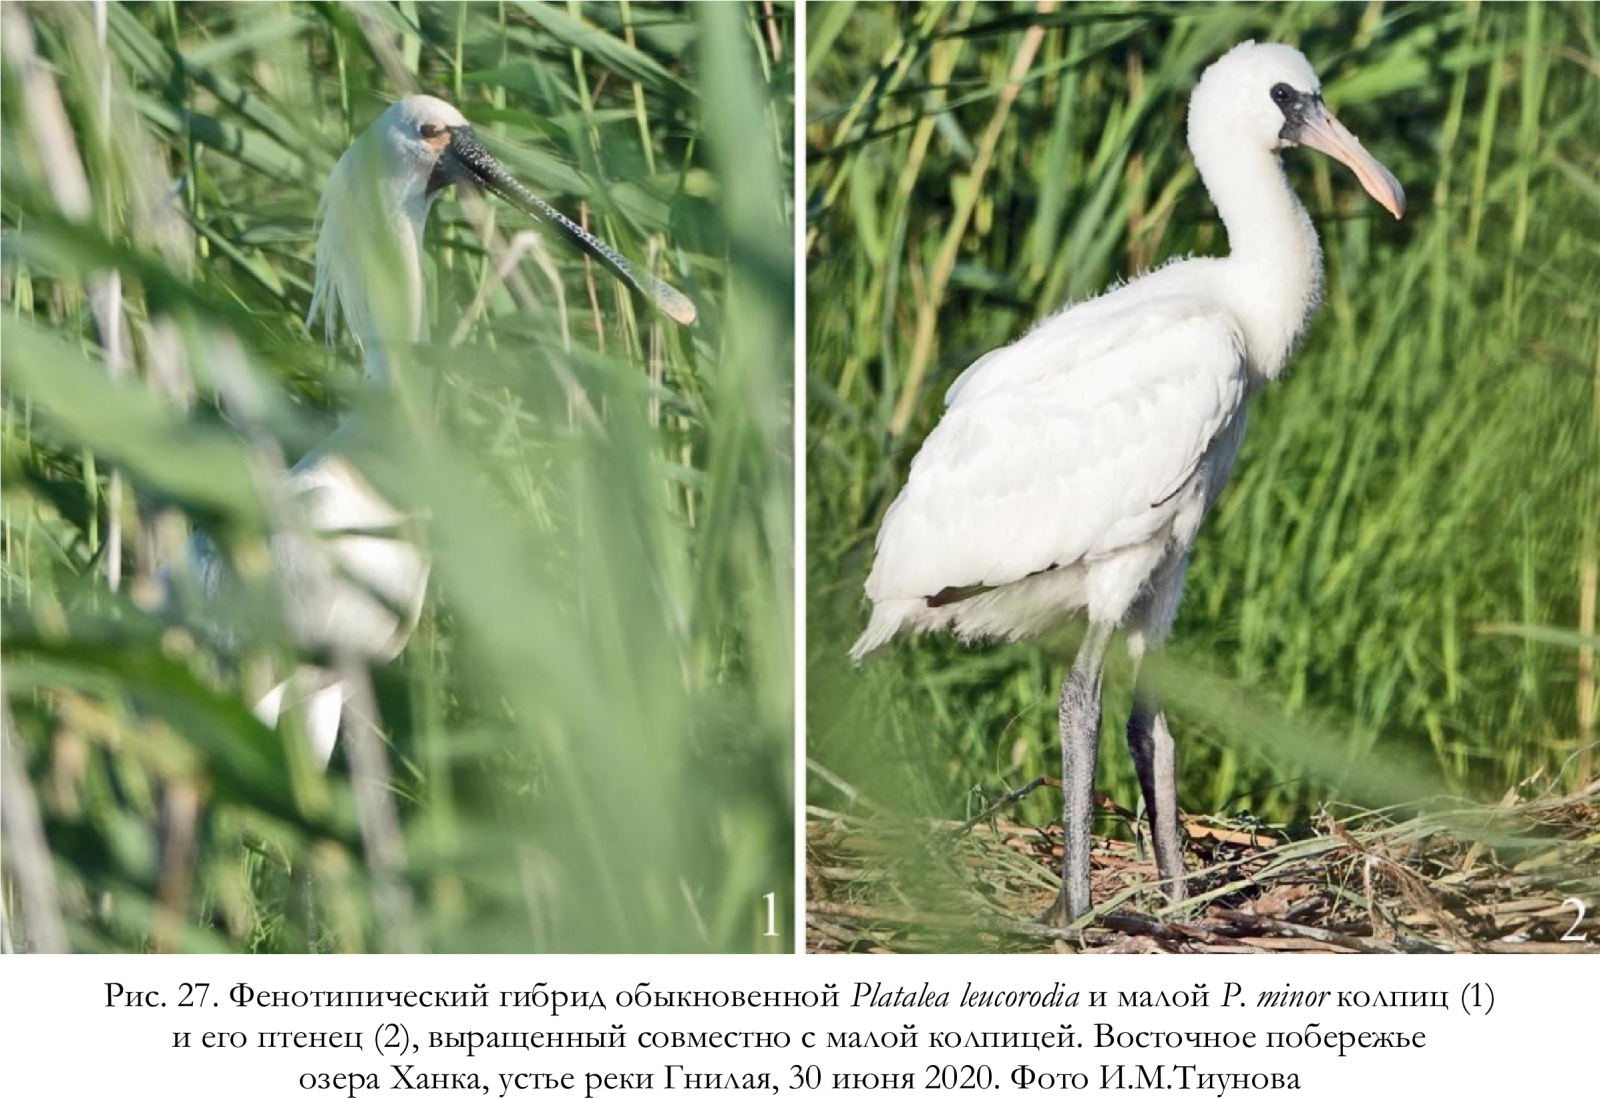
В 2020 году подобную по облику колпицу, находящуюся также в возрасте 4 лет, отметили в колонии обыкновенных колпиц у восточного побережья озера Ханка в районе устья реки Гнилая, где 15 мая она держалась в паре с малой колпицей (Tiunov 2021). По размерам и пропорциям тела она соответствовала обыкновенной колпице, но «маска» была значительно шире, кожистый участок на горле укорочен и был окрашен в чёрный цвет, а жёлтое предвершинное поле на надклювье оказалось размытым (рис. 27.1). Гнездо этой пары 29 мая содержало 2 яйца, размеры которых соответствовали таковым P. leucorodia, поэтому можно предположить, что гибридной была именно самка. «Маска» единственного птенца этой пары была чёрной и по ширине оказалась ближе к таковой у P. minor (рис. 27.2).
На побережье залива Петра Великого к северу от устья реки Туманная, вблизи государственной границей с КНДР, 13 августа 2023 мы наблюдали несколько одиночных птиц рода Platalea и их стай, включавших особей самых разных возрастных категорий. Общая численность составила 94 особи (самая крупная стая насчитывала 52 птицы). По габитусу (общие размеры, форма, размеры и окраска лицевой «маски» и оголённой части горлового мешка, окраска клюва и т.д.) среди них лишь 12 птиц полностью соответствовали P. leucorodia, а остальные больше походили на P. minor, хотя у части особей (фенотипических гибридов) по выше перечисленным признакам явно прослеживались элементы промежуточной внешней морфологии (Глущенко и др. 2023) (рис. 28).

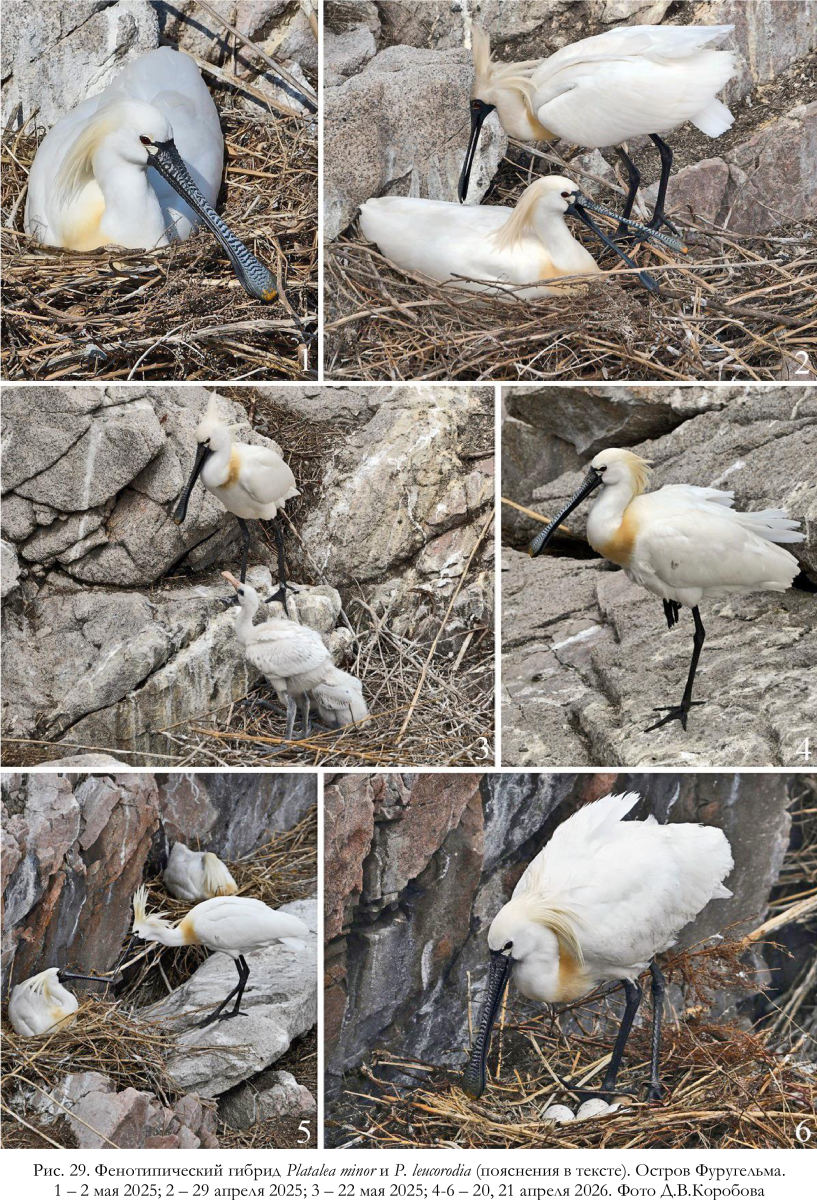
В 2025 году при проведении активных наблюдений и массовой фотосъёмки в гнездовой колонии мы выявили 2 взрослых гнездящихся колпиц, внешний облик которых по целому ряду параметров имел промежуточный характер. Одна из них на первый взгляд больше напоминала обыкновенную колпицу (рис. 29.1), но её лицевая «маска» была заметно шире, со светлым молочно-белым рисунком не только на уздечке, но и над глазом; охристое поле на расширенной части клюва сравнительно небольшое, а голый участок кожи на горле оказался очень коротким и имел чёрный цвет. Эта особь составляла семейную пару с типичной по окраске малой колпицей (рис. 29.2), а 22 мая 2025 в их гнезде было 3 частично оперённых птенца (рис. 29.3).
В 2026 году та же птица, имеющая описанный выше облик фенотипического гибрида (рис. 29.4), образовала пару, а её партнёр, судя по очертаниям охристого рисунка на «маске» (рис. 29.5), был тем же, что и в 2025 году. В их новом гнезде, расположенном теперь в другом месте колонии, 20 апреля 2026 находилась кладка из 4 яиц (рис. 29.6). Таким образом, семейные пары достоверно могут сохраняться по меньшей мере на протяжении двух смежных лет, при этом расположение их гнёзд может меняться независимо от того, что общее расположение колонии в эти годы оставалось неизменным.
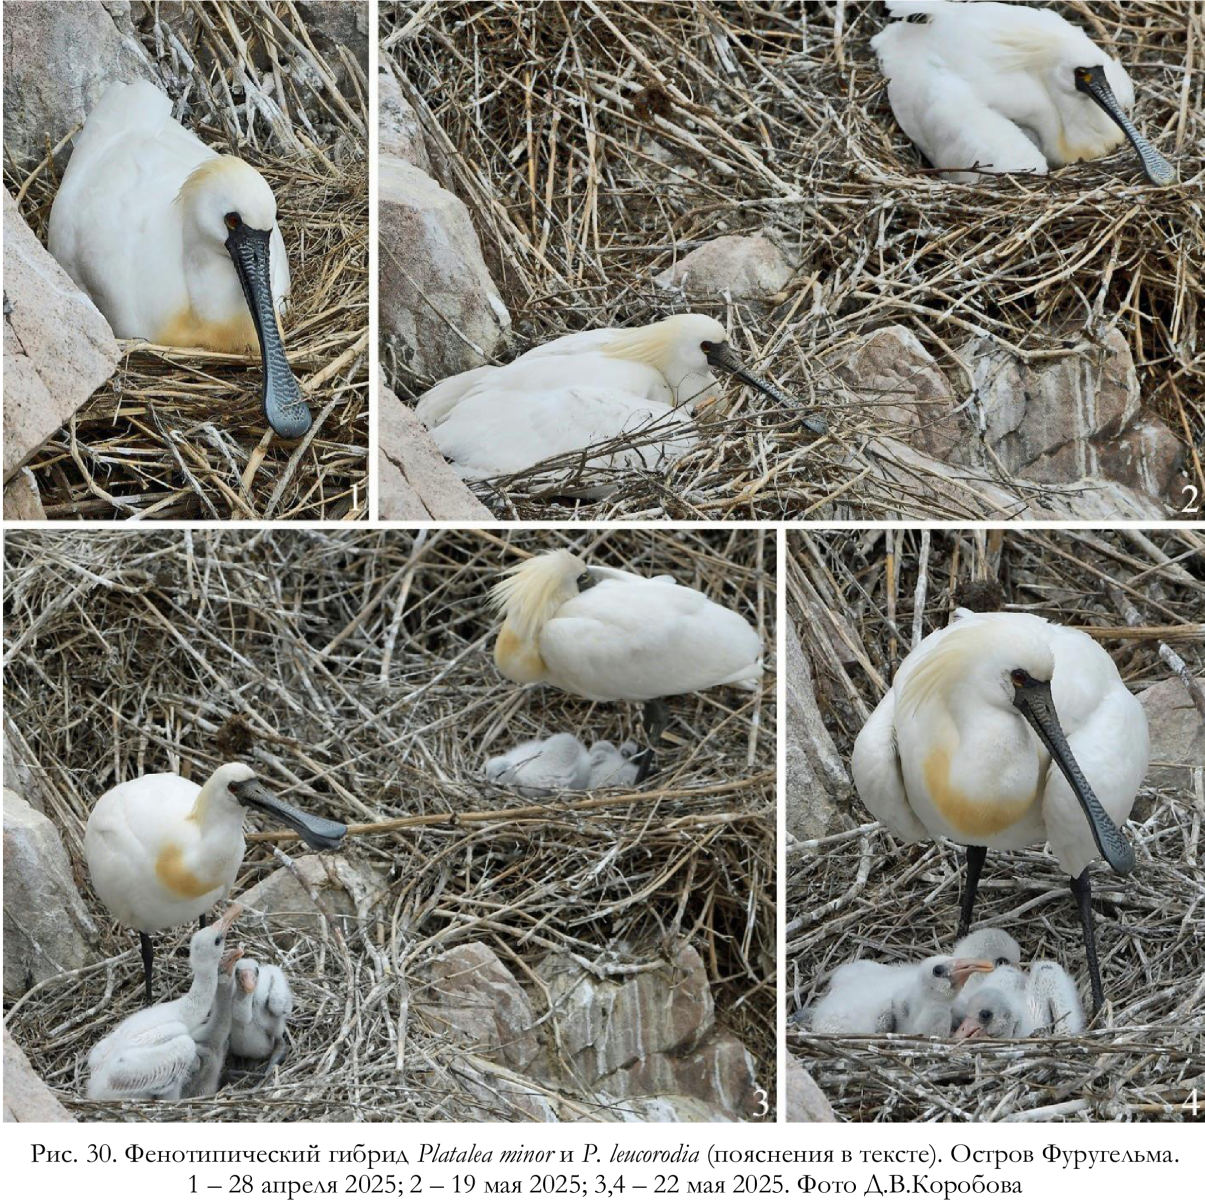
Другой экземпляр, носивший явные черты гибридного происхождения и обнаруженный в 2025 году на гнездовании в колонии на острове Фуругельма, по внешнему облику в целом соответствовал взрослой малой колпице в брачном наряде, но его лицевая «маска» была очень узкой (рис. 30.1), что обращало на себя внимание при сравнении с другой особью, гнездящейся по соседству (рис. 30.2,3 справа). 18 апреля эта колпица насиживала кладку, а во второй половине мая в её гнезде были 3 подросших, но ещё пуховых птенца, у которых 22 мая начали появляться пеньки контурных и маховых перьев (рис. 30.3 слева, 4).
Распространение. В гнездовой период основная часть мировой популяции малой колпицы сосредоточена на островах, расположенных у восточного побережья Жёлтого моря (Литвиненко, Шибаев 2011; Шибаев 2021; BirdLife International 2001; Brazil 2009; Del Hoyo, Collar 2014), а зимовка этого вида проходит главным образом в прибрежных районах Южного Китая, Гонконга, Вьетнама, а также островов Хайнань, Тайвань и Филиппины (Нечаев, Гамова 2009). В последние десятилетия зарегистрированы неоднократные случаи зимовки малых колпиц на внутренних водоёмах Китая, где они держались вместе с обыкновенными колпицами (Wood et al. 2013; Sullender et al. 2016; Chen et al. 2021).
Единственным местом регулярного размножения малых колпиц в России, как и в Японском море в целом, является остров Фуругельма (рис. 31.1), удалённый от основной части области гнездования более чем на 600 км (Литвиненко, Шибаев 2011) и входящий в состав Дальневосточного морского государственного заповедника (находится под управлением ФГБУ «Земля леопарда»). Иных мест размножения в заливе Петра Великого не выявлено, несмотря на специально предпринятые поиски и наличие подходящих для этого участков (Shibaev 2010).
На восточном побережье озера Ханка неподалёку от устья реки Гнилая (рис. 31.2) в 2020 году отмечен единичный случай гнездования одной малой колпицы в паре с фенотипическим гибридом малой и обыкновенной колпиц (Tiunov 2021).
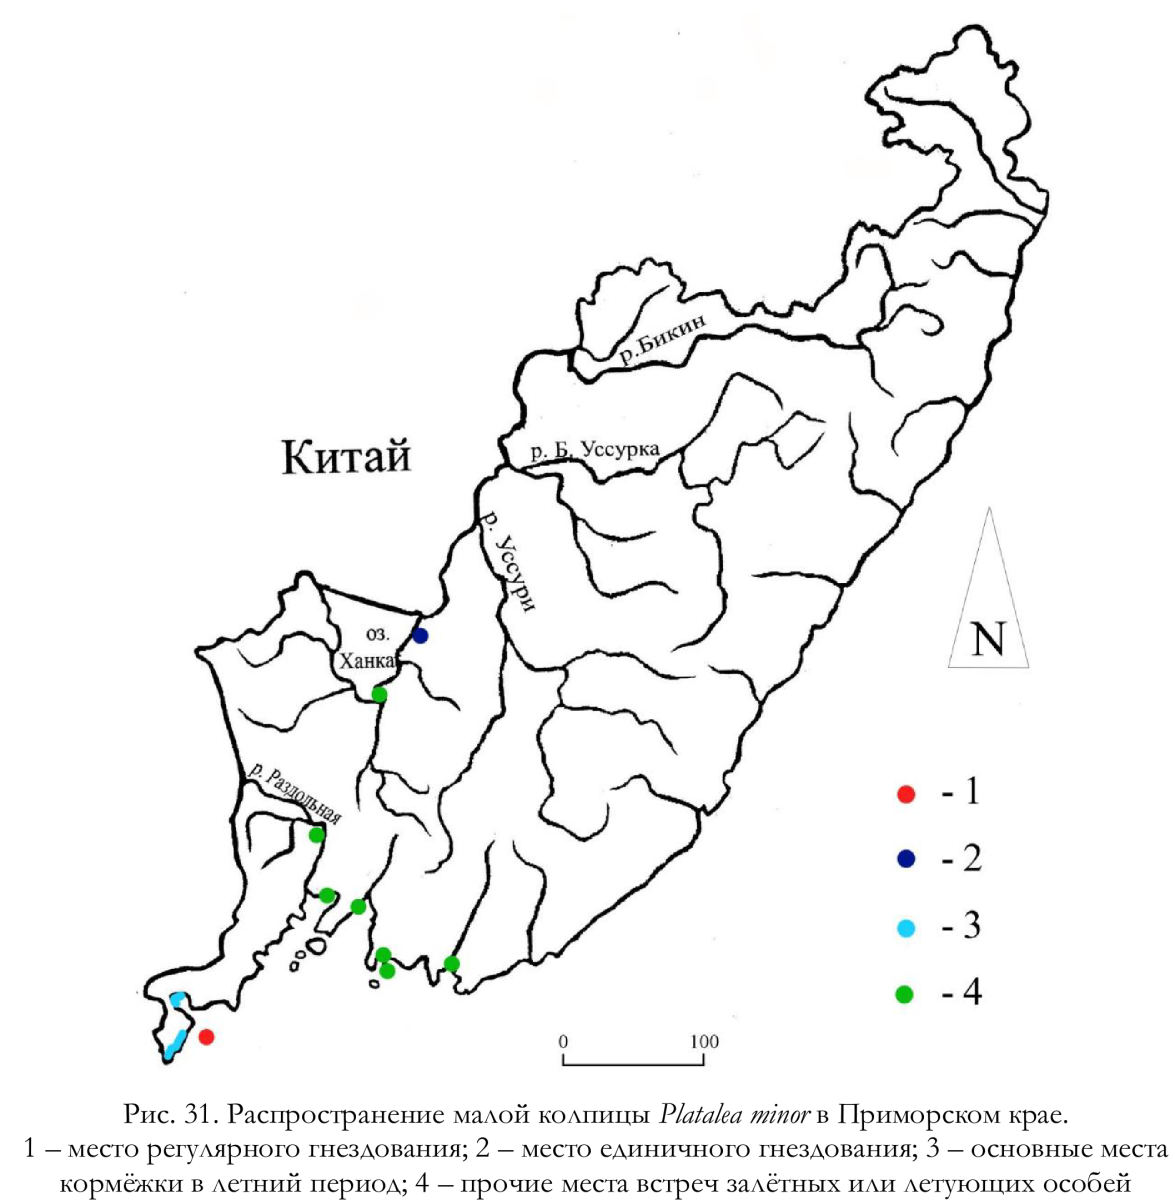
Кормящихся малых колпиц регулярно наблюдали главным образом у берегов западного сегмента залива Петра Великого от бухты Сивучья на севере до границы с КНДР на юге, а реже их встречали на мелководных побережьях бухт залива Посьета (рис. 31.3). В других локусах Приморского края нерегулярно регистрировали залётных и летующих малых колпиц (рис. 31.4). К числу наиболее привлекательных для них участков относится вершинная часть Амурского залива близ места впадения в него реки Шмидтовка, где этих птиц периодически регистрировали, зачастую в общих группах с обыкновенными колпицами (Коробов и др. 2012; Глущенко и др. 2016; Глущенко, Коробов 2023).
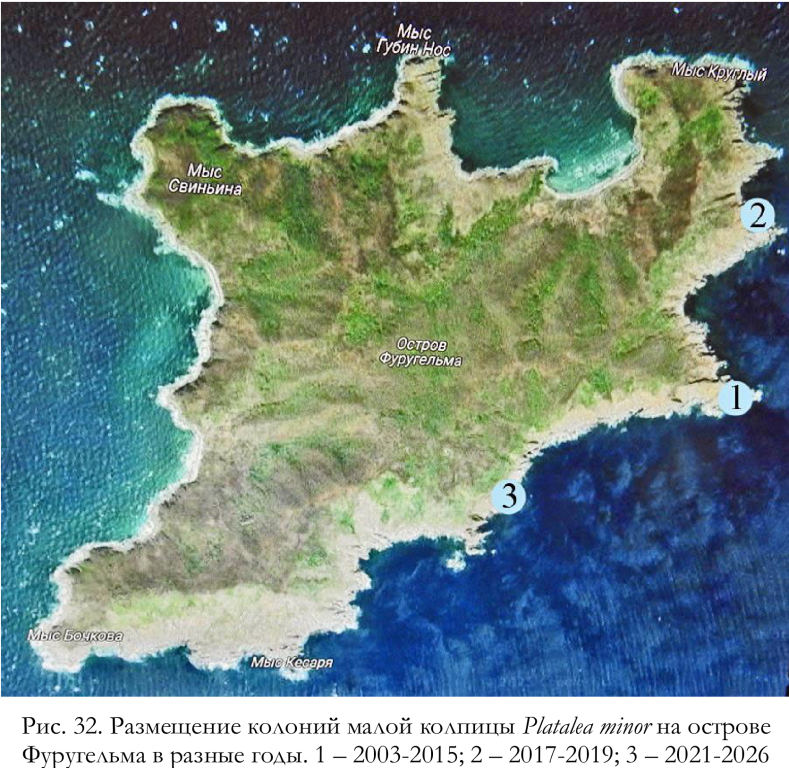
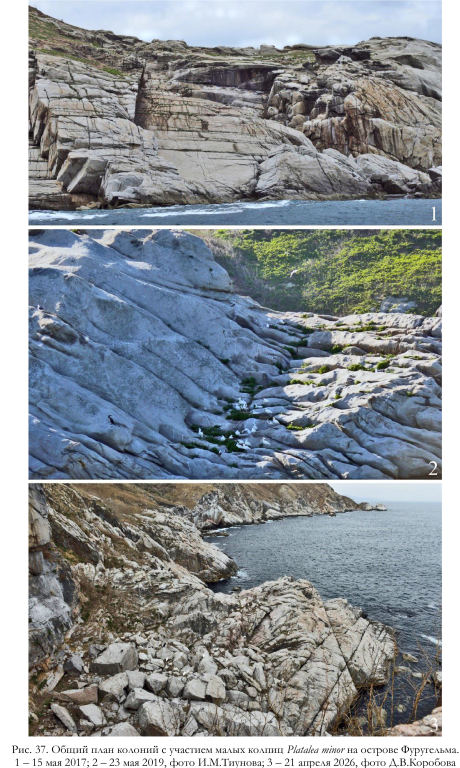
По данным предыдущих исследователей, малым колпицам «в определённой степени присущ гнездовой консерватизм. На о. Фуругельма после первой попытки гнездования (2002 г.) птицы прилетали в последующие три года на одну и ту же небольшую площадку» (Литвиненко, Шибаев 2011, с. 503). По нашим наблюдениям, на острове Фуругельма в разные годы колония малых колпиц занимала различные скалистые мысы, расположенные на обращённой в сторону открытого моря стороне острова. В 2016 году, помимо основного поселения, которое находилось на том же участке, что и с самого начала вселения этого вида на остров, сформировалось две субколонии, включавшие по 2 пары птиц в каждой.
Одна из них расположилась приблизительно в 600 м к северу (рис. 32.2), а вторая – примерно в 800 м к юго-западу от неё (рис. 32.3). В 2017 и 2018 годах единственная колония находилась на месте первой из выше упомянутых субколоний 2016 года, а с 2021 года всё население малых колпиц острова Фуругельма переместилось на место второй из них, находящейся на безымянном мысе, расположенном между мысом Клавдии и мысом Кесаря (42є27′46.18″ с.ш., 130є55′31.74″ в.д.).
Помимо острова Фуругельма, где малые колпицы гнездятся, и побережий западного сегмента залива Петра Великого, где они регулярно кормятся, в прибрежных районах Японского моря одну малую колпицу встретили 28 мая 2011 на озере Лебяжье (устье реки Партизанская), а две птицы держались здесь же 13-14 июня 2011 (Глущенко и др. 2016).
Двух годовалых особей Е.В. Кармазина отметила 29 мая 2022 в восточном сегменте залива Петра Великого на острове Путятина (рис. 22.1).
Примерно в том же районе, на побережье бухты Абрек, в том же 2022 году К.В.Дмитриенко встречал одиночных неполовозрелых малых колпиц 28 июля (рис. 22.2) и 5 августа (рис. 22.3).
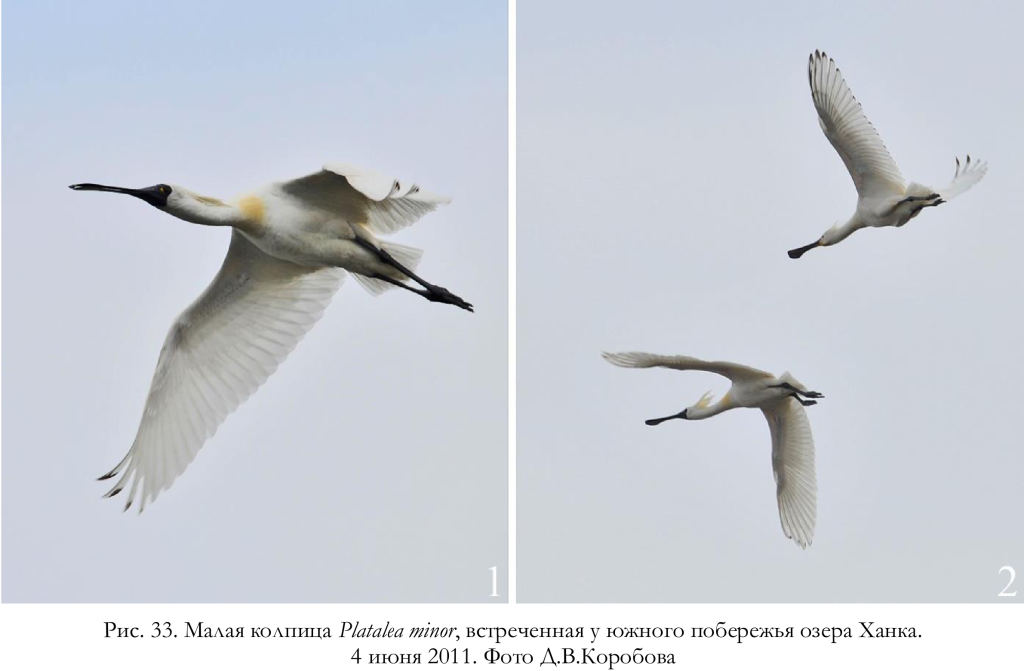
Во внутренних районах Приморья, помимо упомянутой выше пары, гнездившейся в 2020 году на восточном побережье озера Ханка, залётные малые колпицы встречены у южного берега этого озера в дельте реки Илистая. Первую из них встретили 4 июня 2011. Она держалась на окраине смешанной колонии цапель, сидела на жилой хатке ондатры и, будучи вспугнутой, стала кружить над колонией (рис. 33.1). При этом с колонии взлетела группа из 10 обыкновенных колпиц (позже выяснилось, что обыкновенные колпицы, большая часть которых представлена неполовозрелыми особями в возрасте 2 лет, здесь не гнездилась, а лишь отдыхала в дневное время). Малая колпица несколько раз пыталась присоединиться к кружащейся стае птиц своего рода, но одна из обыкновенных колпиц, к которой ближе всего она подлетала, каждый раз проявляла по отношению к ней агрессию, делая выпады клювом (рис. 33.2).
При повторном посещении этого места 6 июня 2011 малую колпицу обнаружить не удалось. Ещё одну взрослую малую колпицу наблюдали 24 июля 2012 в этом же районе в колонии с участием обыкновенной колпицы (Коробов и др. 2012).
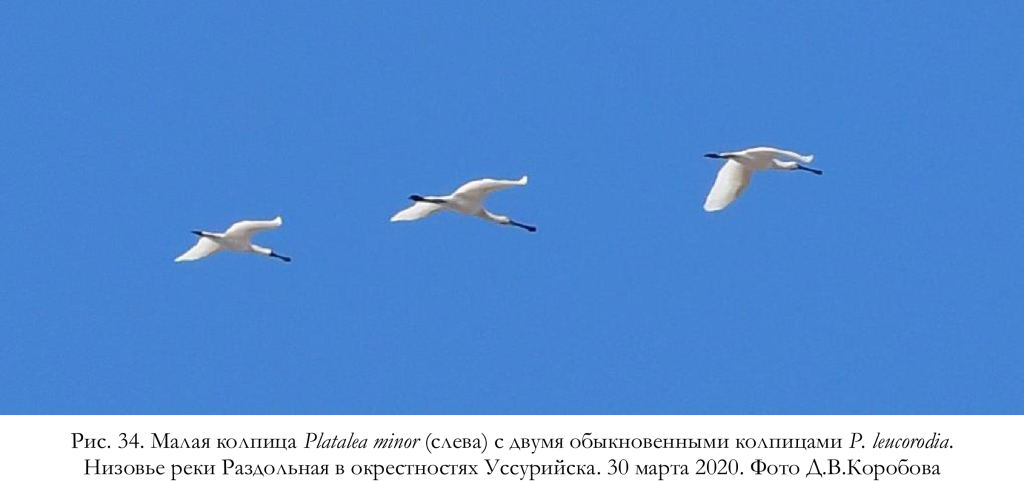
В низовье реки Раздольная в окрестностях Уссурийска одну взрослую малую колпицу, которая летела в северном направлении вместе с 2 взрослыми обыкновенными колпицами (рис. 34), встретили 30 марта 2020 (Глущенко, Коробов 2020). Следует отметить, что встречи малых колпиц в глубине материка – весьма редкое, но не уникальное явление.
Помимо таковых, отмеченных нами на Ханкайско-Раздольненской равнине, известны регистрации этих птиц в материковой части северо-восточного Китая. Так, 13 мая 1932 и 2 мая 1933 два экземпляра этого вида (самка и самец соответственно) добыты в окрестностях города Харбин (Лукашкин 1934), расположенного приблизительно в 800 км от ближайших известных на то время гнездовий малых колпиц. Места внутриматериковых встреч малых колпиц в разных районах юга Китая в пролётное, зимнее и летнее время хорошо известны (MacKinnon, Phillips 2000; Chen et al. 2021; и др.).
За пределами Приморского края на русском Дальнем Востоке малых колпиц достоверно не регистрировали. Указание на то, что одну особь этого вида наблюдали 27 июня 1990 на юге Сахалина на озере Лебяжье в Долинском районе (Здориков 2019), нам представляется не убедительным, поскольку автор публикации не отметил главное отличие двух видов колпиц, известных для Дальнего Востока России, – характер лицевой «маски», разница в которой в первую очередь обращает на себя внимание при совместном наблюдении этих птиц. Другие отличительные признаки, перечисленные в упомянутой публикации (несколько меньшие размеры и серо-струйчатый рисунок на лопатообразном клюве), не могут с полной уверенностью свидетельствовать о правильности определения либо в равной степени относятся к обоим видам (длинный хохол на затылке и желтоватая окраска перьев зоба).
Численность. Согласно международным учётам птиц на зимовках, с конца ХХ века мировая популяция малой колпицы подвержена устойчивой положительной динамике. Так, если зимой 1989/90 года учли только 288 особей (Kennerley 1990), то в 1997 году это число возросло до 535, а в период с 15 по 17 января 2016 от Кореи и Японии на севере до Тайланда и Филиппин на юге зарегистрировали 3356 птиц (Yu et al. 2016).
В 2022 году суммарно зарегистрировано 6162 экз. (Yu et al. 2022). Следует отметить, что вышеприведённые количественные показатели отражают не только имеющий место прирост численности малых колпиц, но и в значительной степени зависят от полноты обследования районов зимовки, которая с годами, безусловно, возрастает.
Многие специалисты прогнозируют существенное сокращение численности малых колпиц в ближайшем будущем вследствие возможной утраты больших площадей критически важных местообитаний (особенно в местах зимовки) вследствие реализации инфраструктурных проектов по освоению прибрежных районов (Chen et al. 2021). Кроме того, популяция малой колпицы пережила период «бутылочного горлышка», когда к 1988 году вся популяция сократилась до менее чем 300 особей, что привело к низкому генетическому разнообразию (Li et al. 2022) и в свою очередь негативно влияет на устойчивость к различным заболеваниям.
Случаи возвратного скрещивания обыкновенных и малых колпиц с образованием фертильного потомства, происходящие в популяции малой колпицы (Kwon et al. 2017; Tiunov 2021; наши данные), могут послужить необходимым притоком генов от другого близкого вида для изменения и разнообразия генофонда, что в свою очередь может повлиять на увеличение приспособленности к изменяющейся среде обитания (Глущенко и др. 2026).
На острове Фуругельма с 2004 по 2009 год ежегодно успешно размножались от 1 до 3 пар малых колпиц, а общая численность этих птиц в гнездовой сезон с учётом вставших на крыло молодых птиц в эти годы достигало 15-16 особей (Литвиненко, Шибаев 2011; Shibaev 2010). Наши учёты малых колпиц, гнездящихся на острове Фуругельма, которые нерегулярно проводились в период с 2016 по 2026 год, были основаны на тотальных подсчётах гнёзд, осуществляемых с разных точек, находящихся на значительном удалении от гнёзд (в целях минимизации беспокойства) с использованием бинокля и длиннофокусных фотоаппаратов. Из-за растянутости начала размножения отдельных пар в 2025 и 2026 годах учёты проводились дважды в сезон: в период массовой откладки яиц и в начале птенцового периода. Следует отметить, что в первом случае всегда имел место значительный недоучёт за счёт тех пар, которые начали гнездование с большим запозданием. Так, в 2025 году первый учёт проводили с 27 апреля по 3 мая, а второй – с 20 по 22 мая.
В первом случае зарегистрировано 31 гнездо, а во втором их оказалось 39, 3 из которых были ещё пустыми, но около них держались либо отдельные особи, либо сформированные пары, продолжавшие строительство. В других гнёздах находились кладки, содержащие от 1 до 4 яиц, либо птенцы самых разных возрастов. Детальный просмотр фотоматериала выявил ещё 3 дополнительных гнезда. Таким образом, общее число пар, гнездившихся в третьей декаде мая 2025 года, достигло 41, что оказалось максимальным за весь немногим более чем 20-летний период размножения малых колпиц на острове Фуругельма (Глущенко и др. 2016). Помимо гнездящихся птиц, колонию посещали неполовозрелые особи, которые чаще держались небольшими стайками, на некоторое время прилетавшими сюда и отдыхающими на скалах. Судя по примерным подсчётам, их общая численность составляла около 30 особей, таким образом, суммарно (не считая гнездовых птенцов), остров Фуругельма в 2025 году посещали 110-120 малых колпиц.
В 2026 году во время проведения первого учёта, состоявшегося с 19 по 23 апреля (период массовой откладки яиц), зарегистрировали 25 жилых гнёзд, 6 из которых были ещё пустыми, но на них держались взрослые птицы. Результаты второго учёта, проведённого в начале птенцового периода (12-13 июня), следующие: 47 действующих гнёзд и 90-95 птенцов разных возрастов. Таким образом, можно предположить, что с учётом гнездарей, холостых неполовозрелых птиц и птенцов в этот период остров посещали 205-210 малых колпиц. Наблюдения, проведённые здесь 30 июня 2026, внесли лишь некоторые коррективы к предыдущему учёту, но не повлияли на общую оценку численности, поскольку многие птенцы оказались лётными и часть из них уже могла покинуть остров. В целом в 2025 и 2026 годах, когда учёты проводились в оба указанных периода, число гнёзд в птенцовый период было, соответственно, в 1.32 и 1.88 раза выше, чем в разгар откладки яиц.
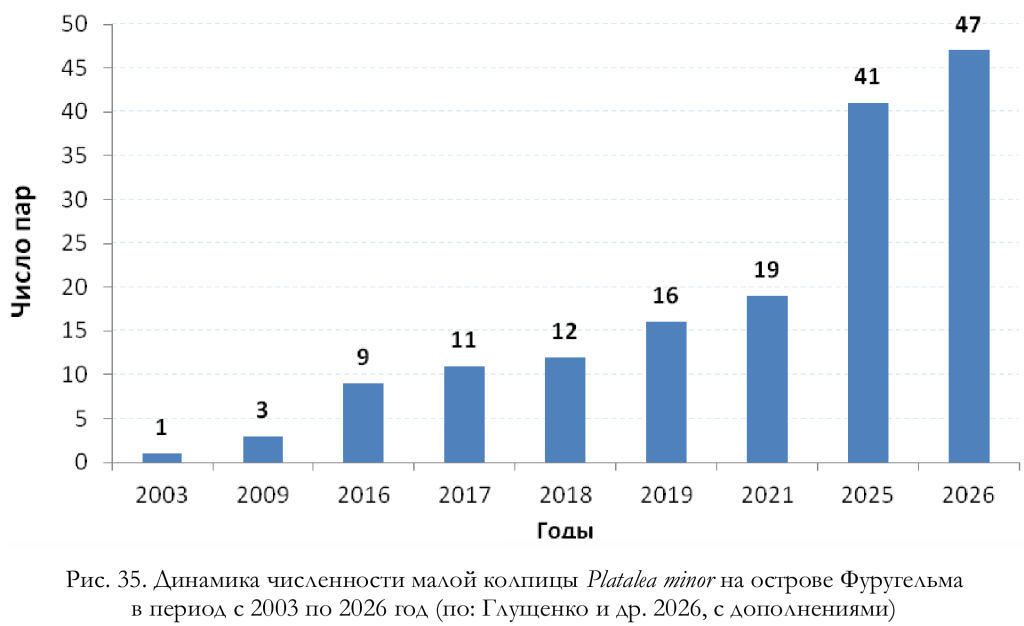
Таким образом, по данным учётов гнёзд малых колпиц, проводимых на острове Фуругельма, численность гнездящихся здесь птиц с начала текущего столетия прогрессивно увеличивалась (рис. 35).
На рисунке 35 обращает на себя внимание заметный скачок численности, произошедший в первой половине 2020-х годов, когда число гнездящихся пар в 2021 году составило лишь 19, а уже через 4 года, в 2025 году, достигло 41. Одной из причин этого является непреднамеренная методическая погрешность в сроках проведения учётов: с 2016 по 2021 год они проводились в разгар откладки яиц, когда многие пары ещё не приступили к размножению, а для 2025 и 2026 годов в графике приняты количественные характеристики учётов, проведённых в начале птенцового периода. Поэтому при дальнейшем мониторинге численности малых колпиц учёты гнёзд следует проводить в оптимальное время, каким, по нашему опыту и соответствующим расчётам, является период с 25 мая по 15 июня. Учёты в более ранние сроки чреваты занижением численности, а учёты в более поздние сроки, не выявят число гнездящихся пар, поскольку часть подросших к этому времени птенцов уже будут находиться в скоплениях молодняка за пределами своих гнёзд. Однако достоинством более поздних учётов могут оказаться промежуточные данные по успешности гнездования малых колпиц.
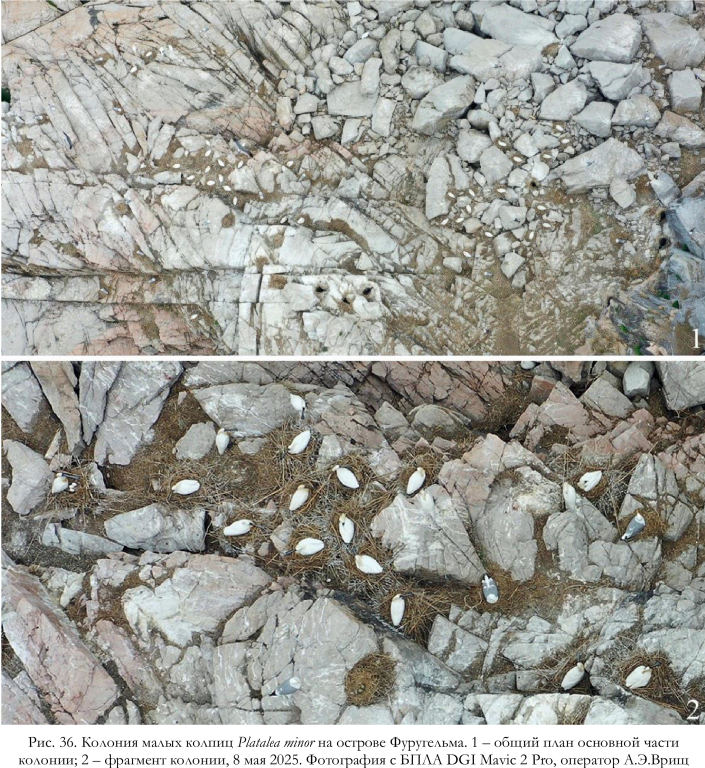
Мониторинг колоний с участием малых колпиц могут проводить только орнитологи, детально знающие ситуацию. Эти работы можно выполнять путём визуального наблюдения и фотосъёмки с возможно малой дистанции. Дополнительные сведения можно получать путём стационарно установленной высококачественной видеокамеры с дистанционным управлением, а также с применением БПЛА (рис. 36).
Весенний пролёт. Не прослежен. Ранее предполагали, что в Южное Приморье «первые малые колпицы прилетают, по-видимому, где-то в начале апреля» (Литвиненко, Шибаев 2011, с. 502). По нашим расчётам, на юге Приморья первые птицы могут появляются уже в третьей декаде марта, однако специальные наблюдения в это время года в необходимых локациях никогда не проводились. Самая ранняя из известных для Приморского края встреча малой колпицы, произошедшая в низовье Раздольной в окрестностях Уссурийска, датирована 30 марта 2020 (Глущенко, Коробов 2020).
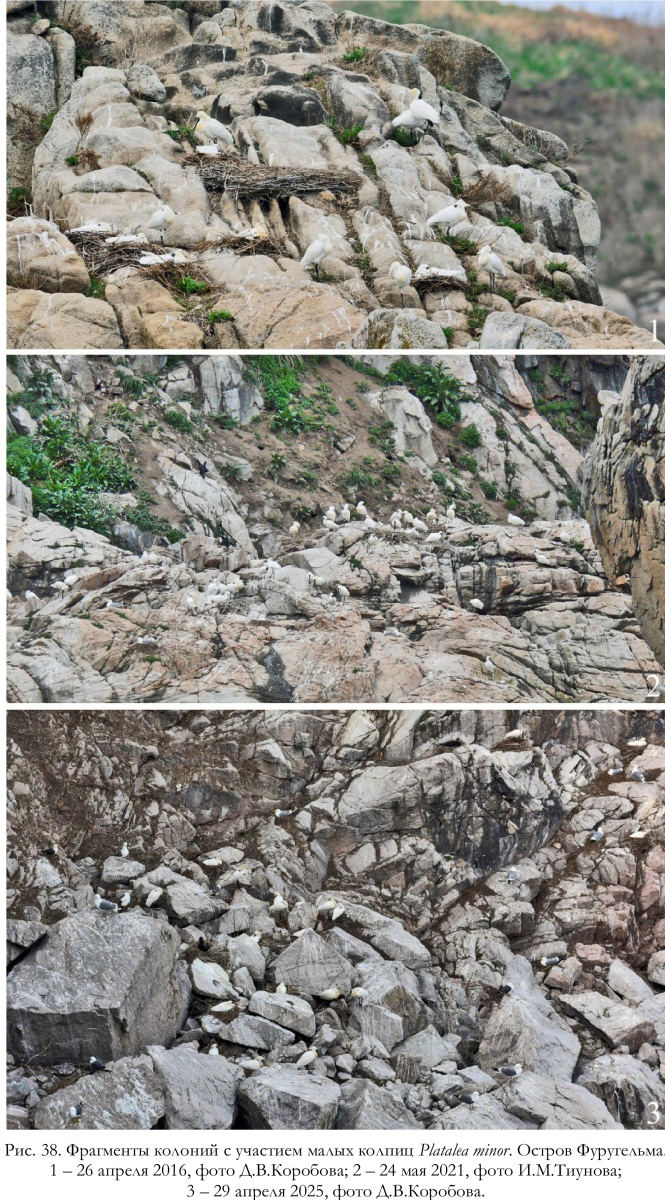
Местообитания. Гнездовья малых колпиц, аналогично таковым желтоклювых цапель Egretta eulophotes, тесно связаны с небольшими скалистыми морскими островами вблизи материкового побережья. В годы наших наблюдения (начиная с 2016) на острове Фуругельма эти колпицы гнездились на скалистых мысах острова, обращённых к открытому морю (рис. 32, 37). Для формирования колонии они выбирали такие участки мыса, где имелись серии выровненных площадок, размеры каждой из которых достаточны для размещения гнезда (рис. 38).

В непосредственной близости от гнёзд малых колпиц находились гнёзда чернохвостых Larus crassirostris и тихоокеанских L. schistisagus чаек (Литвиненко, Шибаев 2011). По нашим наблюдениям, поселения малых колпиц здесь формировались среди огромного птичьего «базара», занимавшего значительную часть острова и образованного разными видами околоводных и водоплавающих птиц. В непосредственной близости от гнёзд колпиц располагались жилые гнёзда монгольских Larus mongolicus (рис. 39.1-4), тихоокеанских и чернохвостых чаек и японских бакланов Phalacrocorax capillatus (рис. 39.3,4), а в недалёком окружении гнездились беринговы бакланы Phalacrocorax pelagicus, желтоклювые цапли, очковые чистики Cepphus carbo и тупики-носороги Cerorhinca monocerata.

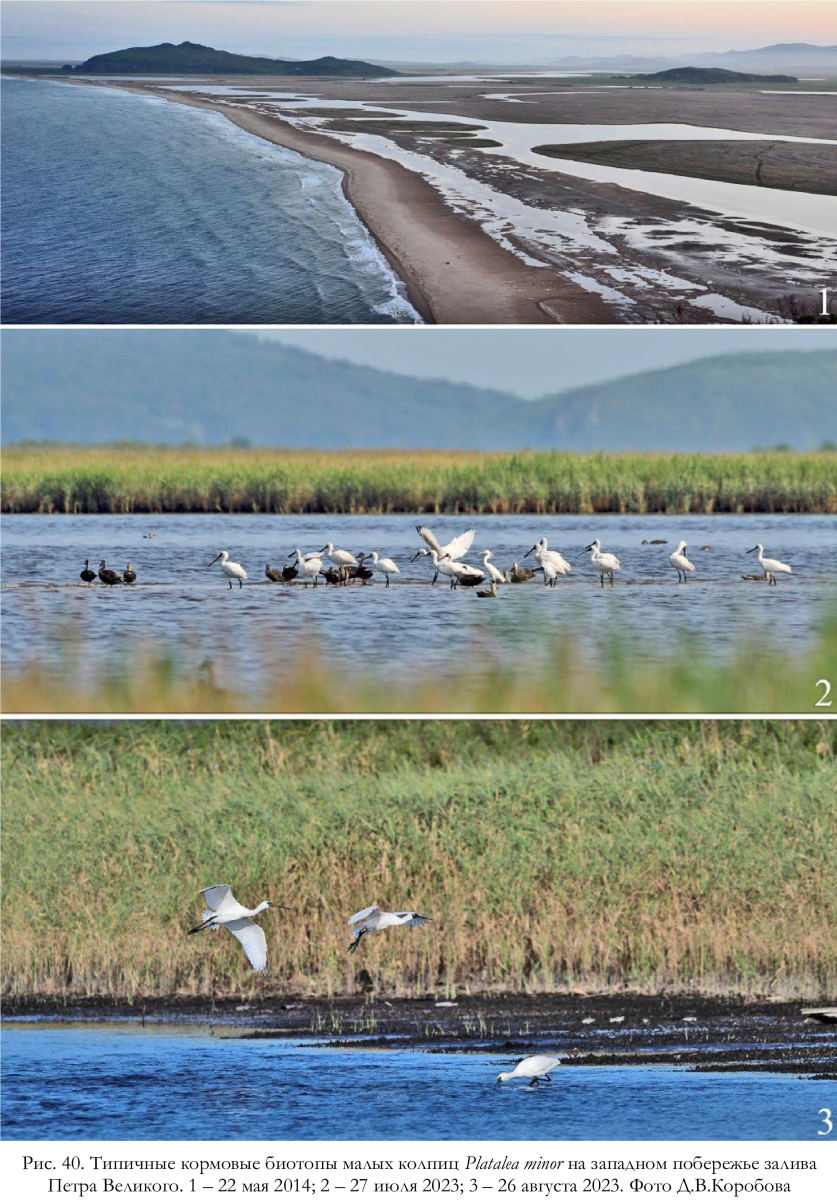
По данным Н.М. Литвиненко и Ю.В. Шибаева (2011), кормовыми стациями малых колпиц в Южном Приморье являются солоноватые мелководные части лагун и приустьевые участки рек. По нашим наблюдениям, как и в случае с желтоклювыми цаплями, основными местами кормёжки малым колпицам, гнездящимся на острове Фуругельма, служат солоноватые прибрежные лагуны, мелководные морские заливы и протоки материкового побережья (рис. 40). Подходящие для этого места, куда гнездящиеся птицы улетали кормиться, расположены в 13-20 км от гнездовых поселений у западного побережья залива Петра Великого, преимущественно от устья протоки, соединяющей озеро Птичье с морем, к югу до озера Первая Протока.
На побережье озера Ханка смешанная пара колпиц с участием малой гнездилась в обширной колонии обыкновенных колпиц, серых Ardea cinerea, рыжих Ardea purpurea и больших белых Casmerodius albus цапель, которая располагалась среди прибрежного мелководья, большей частью заросшего тростником (рис. 41).
Гнездование. Судя по наблюдениям в условиях неволи, половая зрелость самок малых колпиц наступает в возрасте около 2 лет и 8 месяцев, а у самцов – 1-2 годами позднее (Chong et al. 2000 – цит. по: Литвиненко, Шибаев 2011).
На острове Фуругельма в 2004-2009 годах в размножении участвовали приблизительно 36% птиц в возрасте около 3 лет, что может быть обусловлено «начальным периодом колонизации, и более молодые половозрелые птицы получают возможность для более ранней самореализации» (Литвиненко, Шибаев 2011, с. 502). В период наших наблюдений некоторые птицы в возрасте 3 лет, узнаваемые по брачному наряду, но при наличии тёмных «рисок» на первостепенных маховых, также принимали участие в размножении, но их доля среди гнездящихся птиц не выяснена.

На гнездовьях, расположенных на островах в Жёлтом море, малые колпицы появляются в последних числах марта либо в апреле (Ueta et al. 2002). Сроки, когда они начинают посещать гнездовую колонию на острове Фуругельма, в деталях не выяснены. Самая ранняя регистрация на гнездовом участке в 2009 году датирована 11 апреля (Литвиненко, Шибаев 2011), а в последующие годы колонию ранней весной посещать не удавалось.
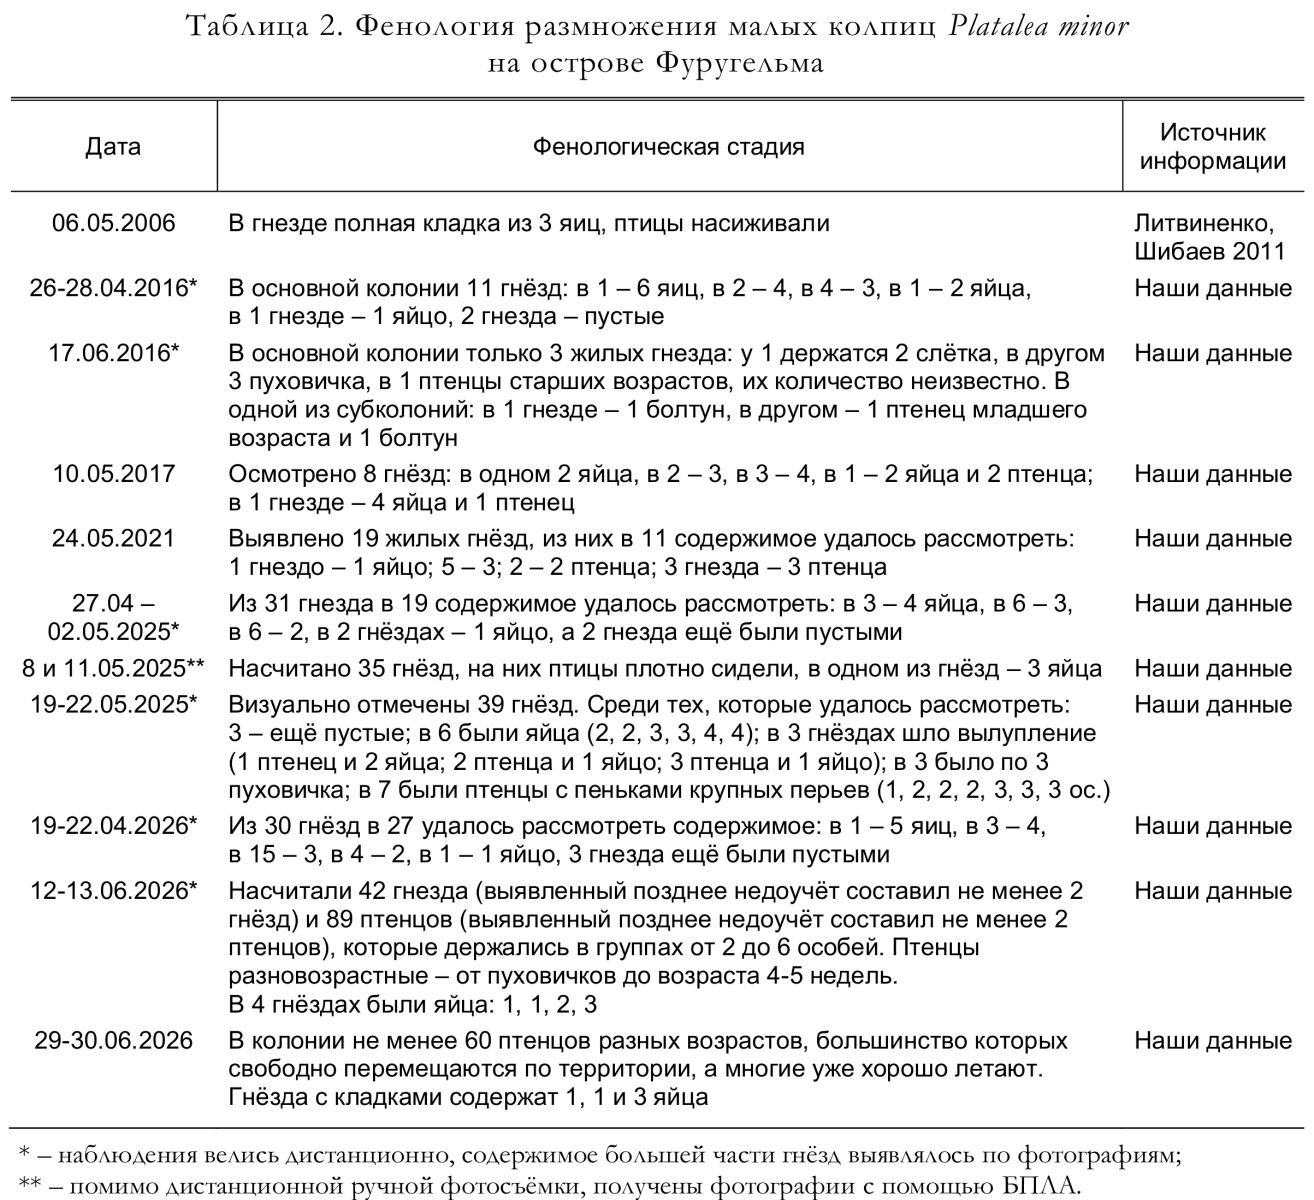
Судя по отрывочным данным разных лет (Литвиненко, Шибаев 2011; наши данные) и соответствующим расчётам, гнездовой период малых колпиц на острове Фуругельма очень сильно растянут и длится с начала второй декады апреля до середины августа (табл. 2), а судя по наличию кладок в конце июня, он может заканчиваться ещё позднее.
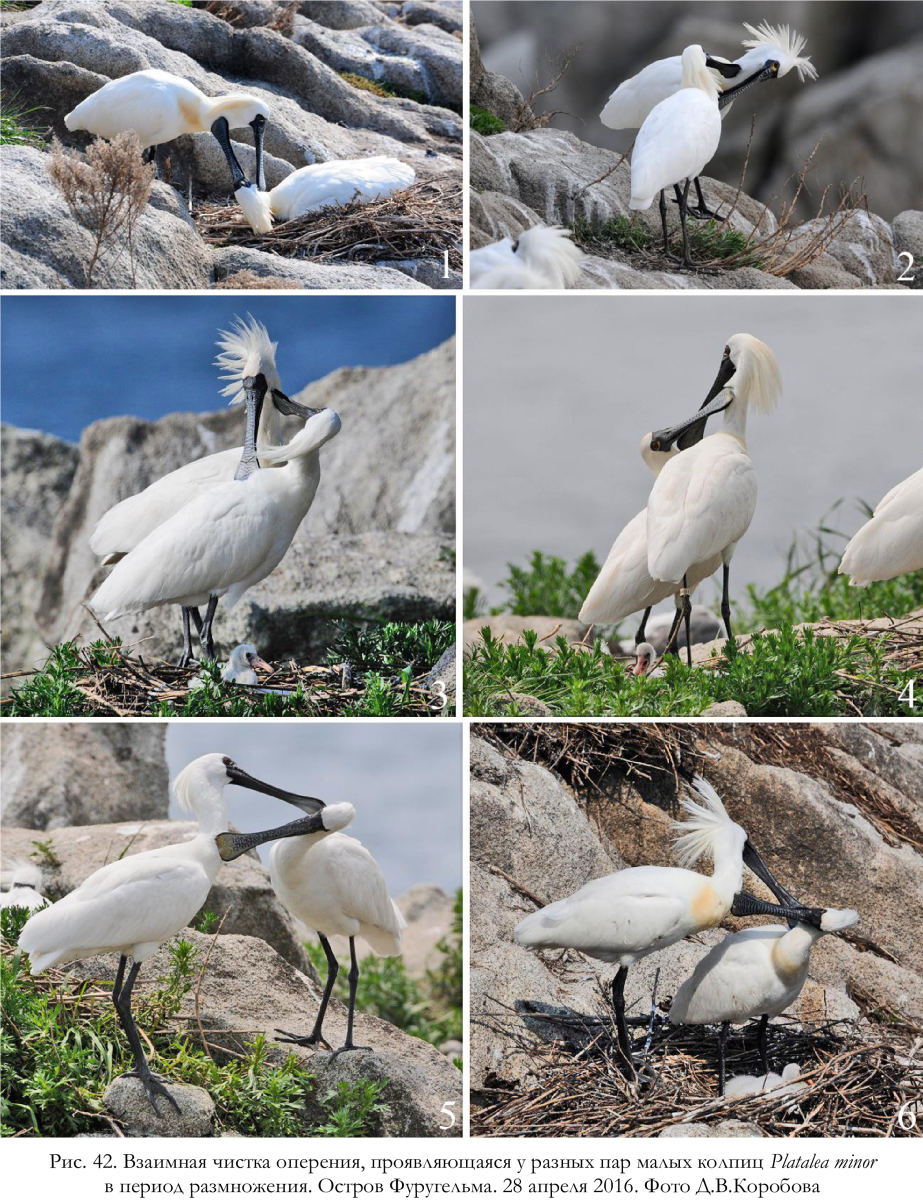
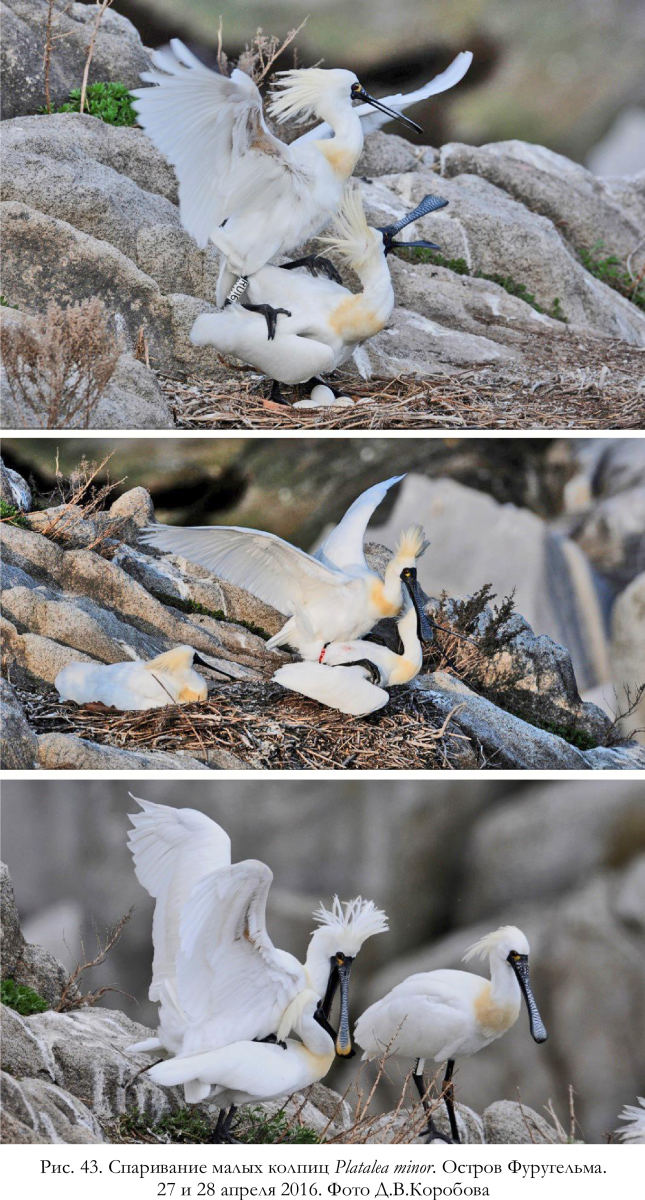
В период откладки яиц, который, судя по расчётам, начинается в середине апреля, брачные партнёры ухаживают друг за другом, нередко прибегая к взаимной чистке оперения (рис. 42.1,2), которая продолжается в птенцовый период (рис. 42.4-6) и позднее, а также к периодическому спариванию (рис. 43). Чаще всего все эти действия происходят непосредственно на гнезде.
Несмотря на социальную моногамию, в сексуальном плане нами установлено явление, близкое к промискуитету, поскольку неоднократно наблюдалось спаривание свободных от насиживания самцов с чужими самками, насиживающими кладки в соседних гнёздах. Частным подтверждением этому служит отмеченное нами 27 и 28 апреля 2016 спаривание трёх разных самцов, один из которых был с красным пластиковым кольцом (рис. 44.1), второй – с белым (рис. 44.2), а третий – без кольца (рис. 44.3), с одной и той же самкой, насиживающей кладку.
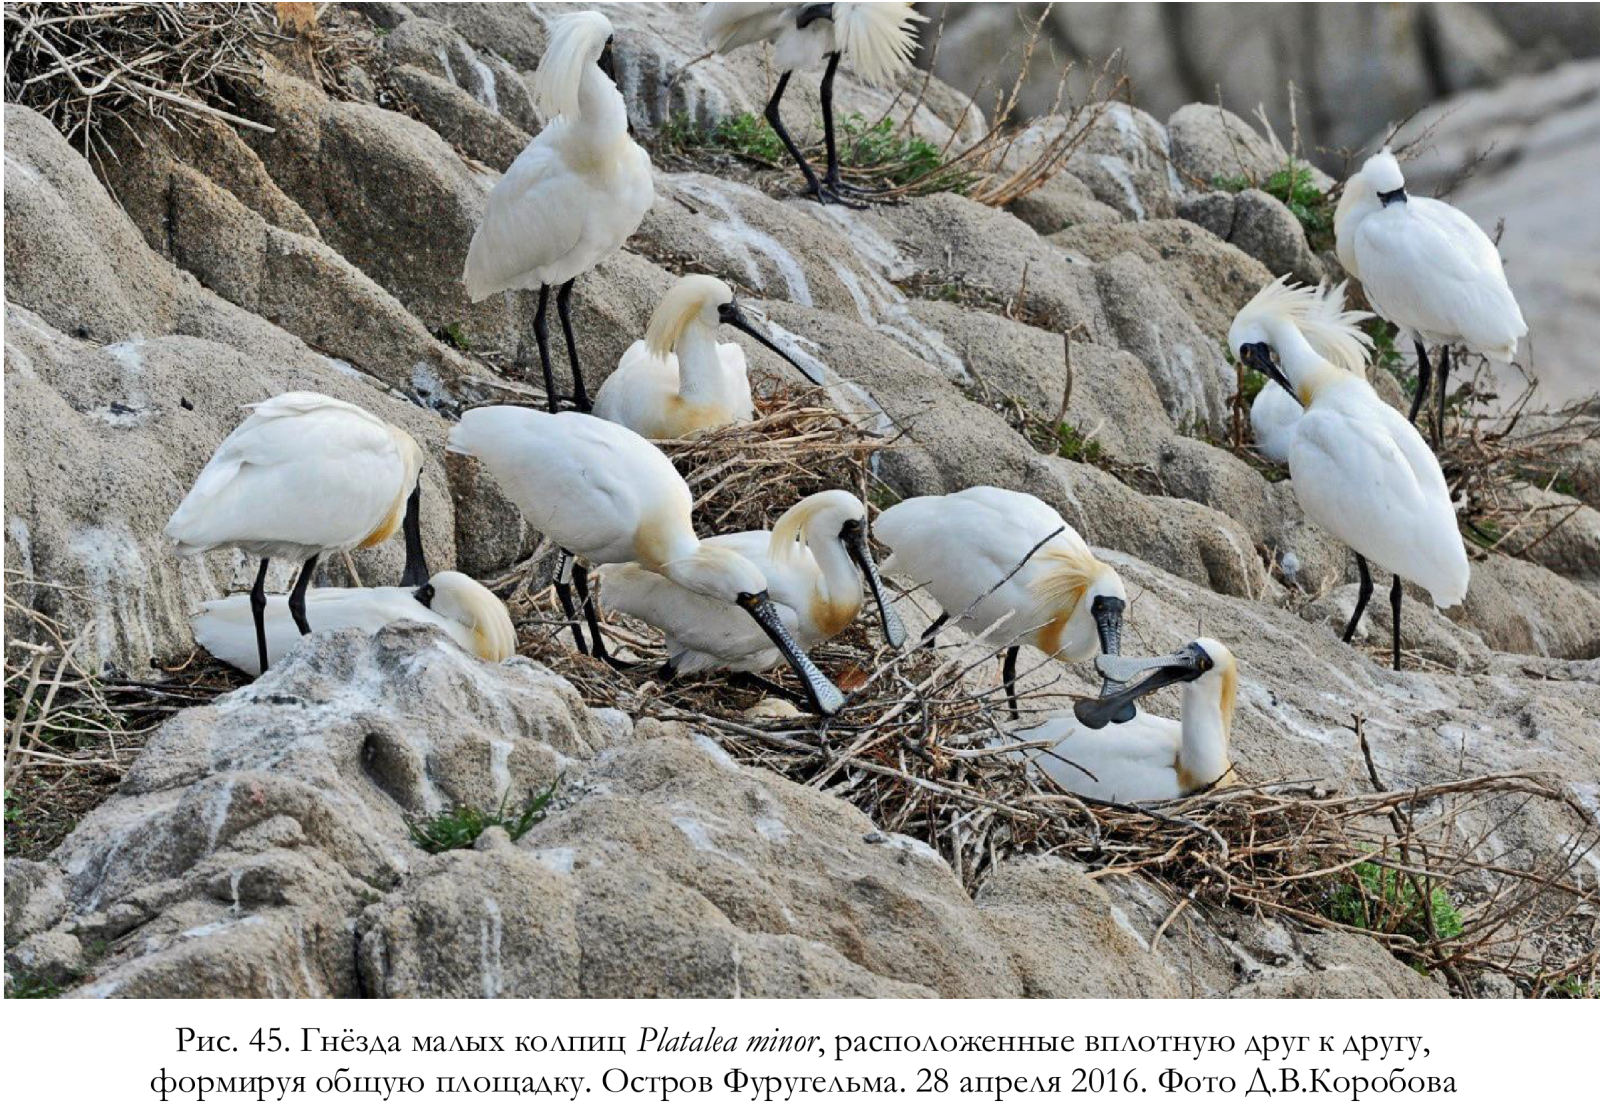
Этому явлению, в частности, способствует очень близкое расположение смежных гнёзд, края которых в ряде случаев соприкасаются друг с другом, а в ряде случаев образуется общая площадка (рис. 36, 45). Отсутствие физических преград между гнёздами приводит к тому, что постройки находятся буквально «в шаговой доступности» для многих самцов колонии. Сопротивления со стороны самок попыткам спаривания со стороны чужих самцов мы не наблюдали. Всё было молчаливо и без жестов агрессии со стороны самок. Самцы, являющиеся хозяевами гнёзд, во время спаривания их самок со сторонними самцами порой угрожали чужакам, подлетая к ним со взъерошенным хохлом, но до реальных активных драк с нанесением сколько-нибудь сильных ударов или укусов обычно дело не доходило. Таким образом, установление реального отцовства птенцов каждого конкретного гнезда может вызывать оправданное сомнение, что важно помнить при рассмотрении потомства смешанных пар с обыкновенными и гибридными колпицами.
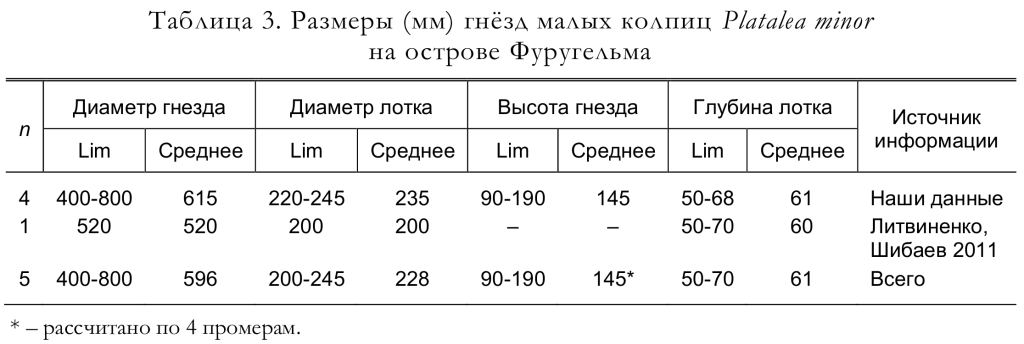
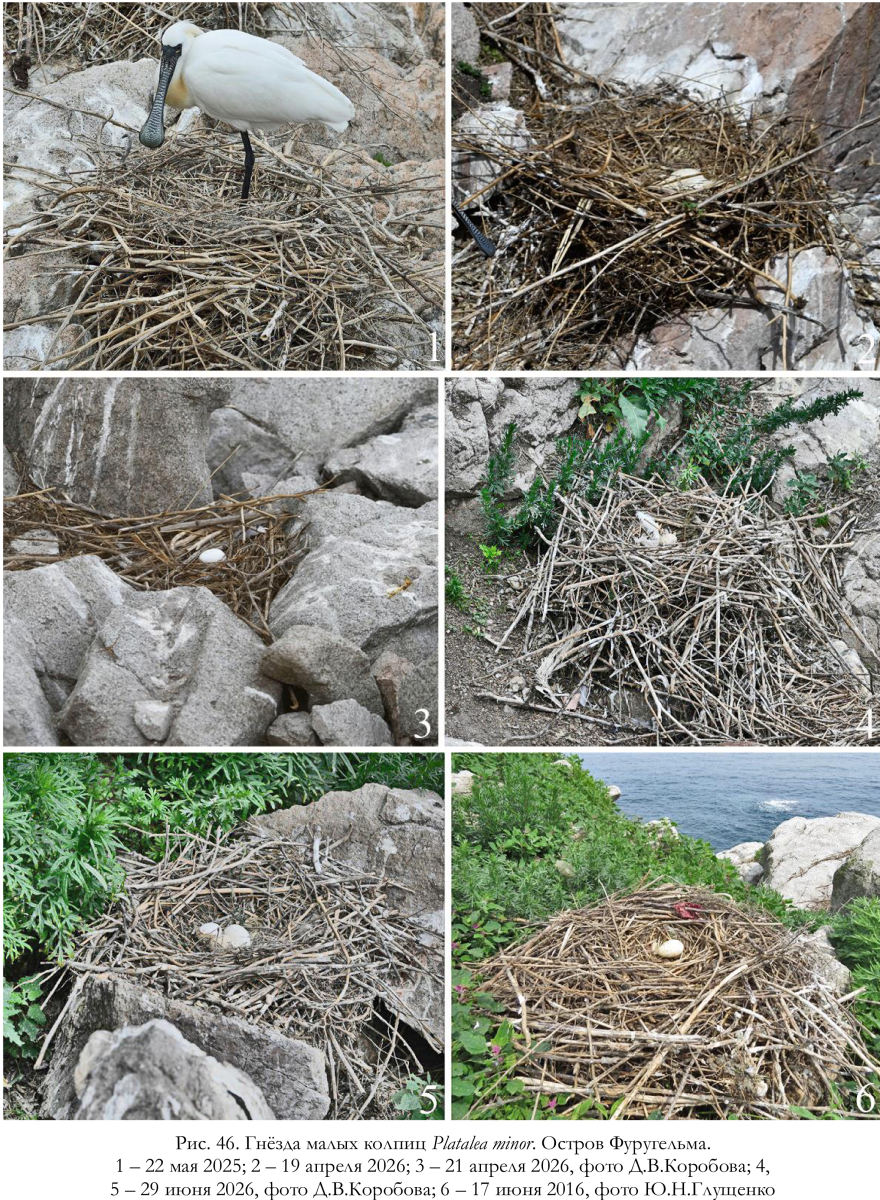
Материалом для гнёзд малым колпицам на острове Фуругельма служили сухие стебли полыни, а выстилка лотка содержала мягкие стебли злаков (Литвиненко, Шибаев 2011). По нашим данным, для строительства гнёзд птицы использовали наиболее доступные в этих условиях сухие стебли полыни Artemisia sp., мари Chenopodium sp., лебеды Atriplex sp. и горца Polygonum sp., в дополнение к которым птицы нередко брали сухие ветки бузины Вильямса Sambucus williamsii. Длина кусков строительного материала в ряде случаев могла быть значительной, намного превышая длину самих птиц. В лоток колпицы укладывали более тонкие сухие стебли разных травянистых растений (рис. 46.1), а в некоторых гнёздах имелись немногочисленные перья (рис. 46.3,4) и некоторые искусственные материалы в виде кусков пластика (рис. 46.4,6), обрывков тонких верёвок (рис. 46.4) и различного другого мусора. Размерные характеристики гнёзд малых колпиц приведены в таблице 3.
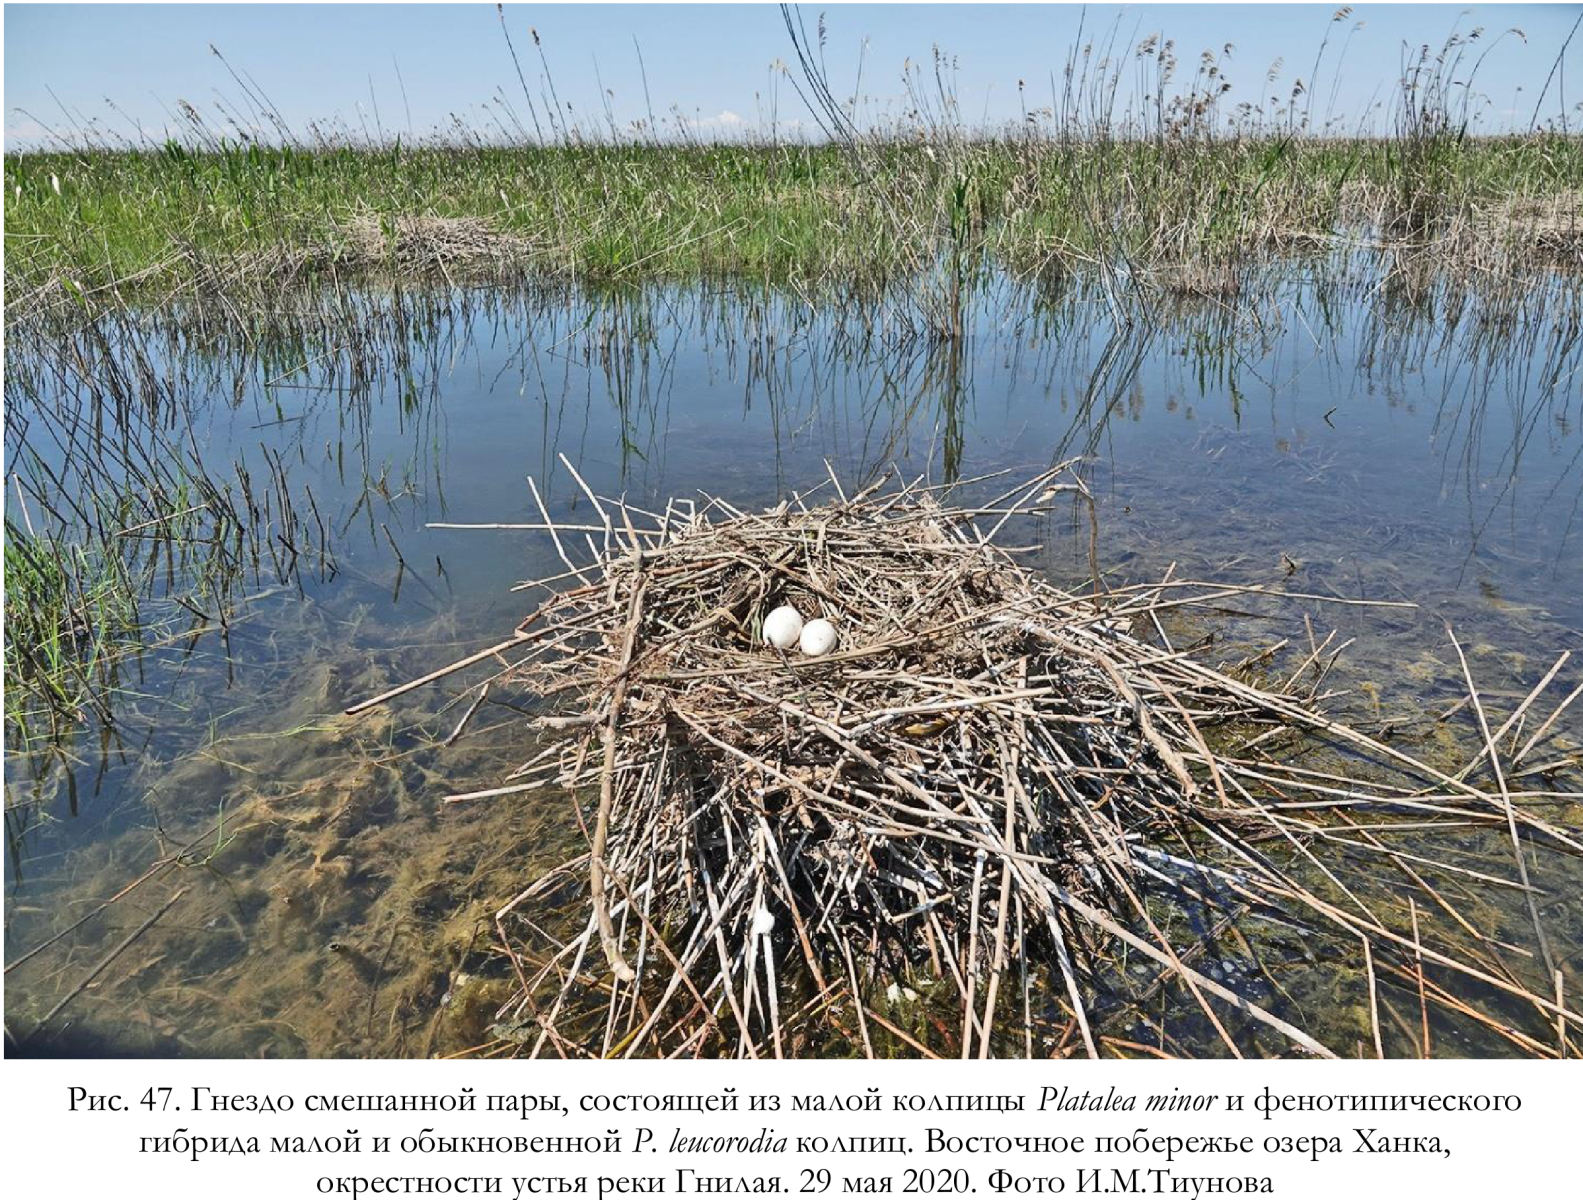
Гнездо смешанной пары, обнаруженное в 2020 году у восточного побережья озера Ханка, как и многие построенные в этих условиях гнёзда обыкновенных колпиц, располагалось среди мелководья у зарослей тростника и было построено преимущественно из сухих стеблей этого растения. На момент его обнаружения, 15 мая, в нём находилось 1 яйцо; 29 мая – 2 яйца (рис. 47), а 30 июня в нём находился 1 оперённый птенец (рис. 27.2).
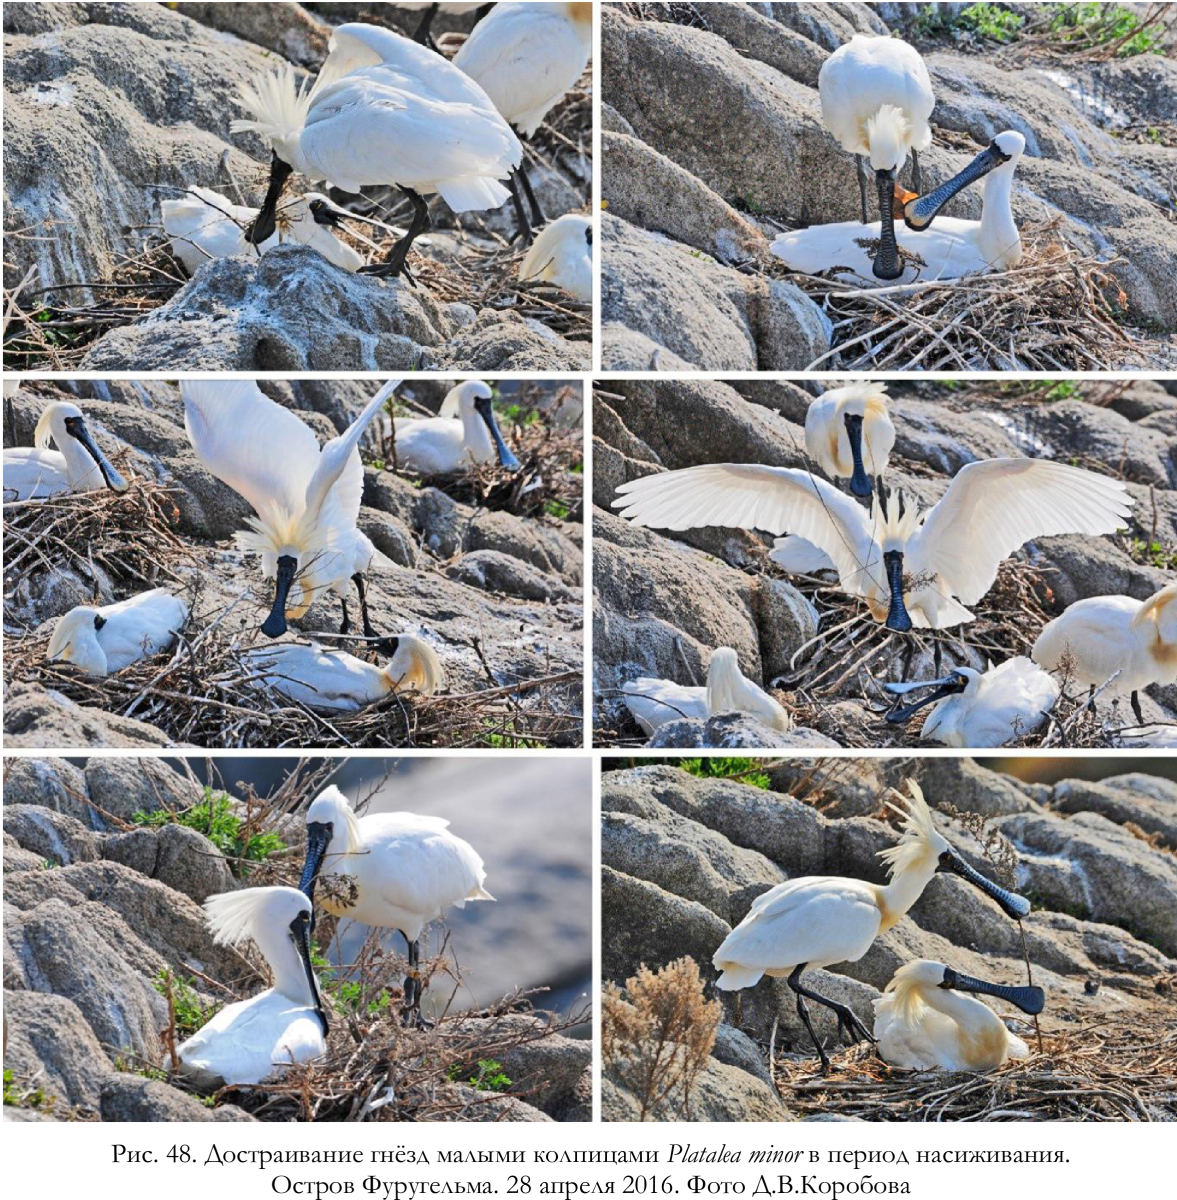
По данным, полученным за рубежом, в период инкубации и выкармливания птенцов малые колпицы достраивают гнёзда, при этом самец приносит строительный материал, передавая его самке, которая укладывает его в постройку (Chong et al. 1996 – цит. по: Литвиненко, Шибаев 2011, с. 503). По нашим наблюдениям, в течение всего гнездового периода, но чаще всего в период насиживания колпицы регулярно достраивают гнездо, принося новый строительный материал, который свободная от насиживания птица передаёт той, которая сидит в гнезде (рис. 48).
Откладка яиц происходит в основном со второй половины апреля и, судя по расчётам, может продолжаться до середины июня (табл. 2).
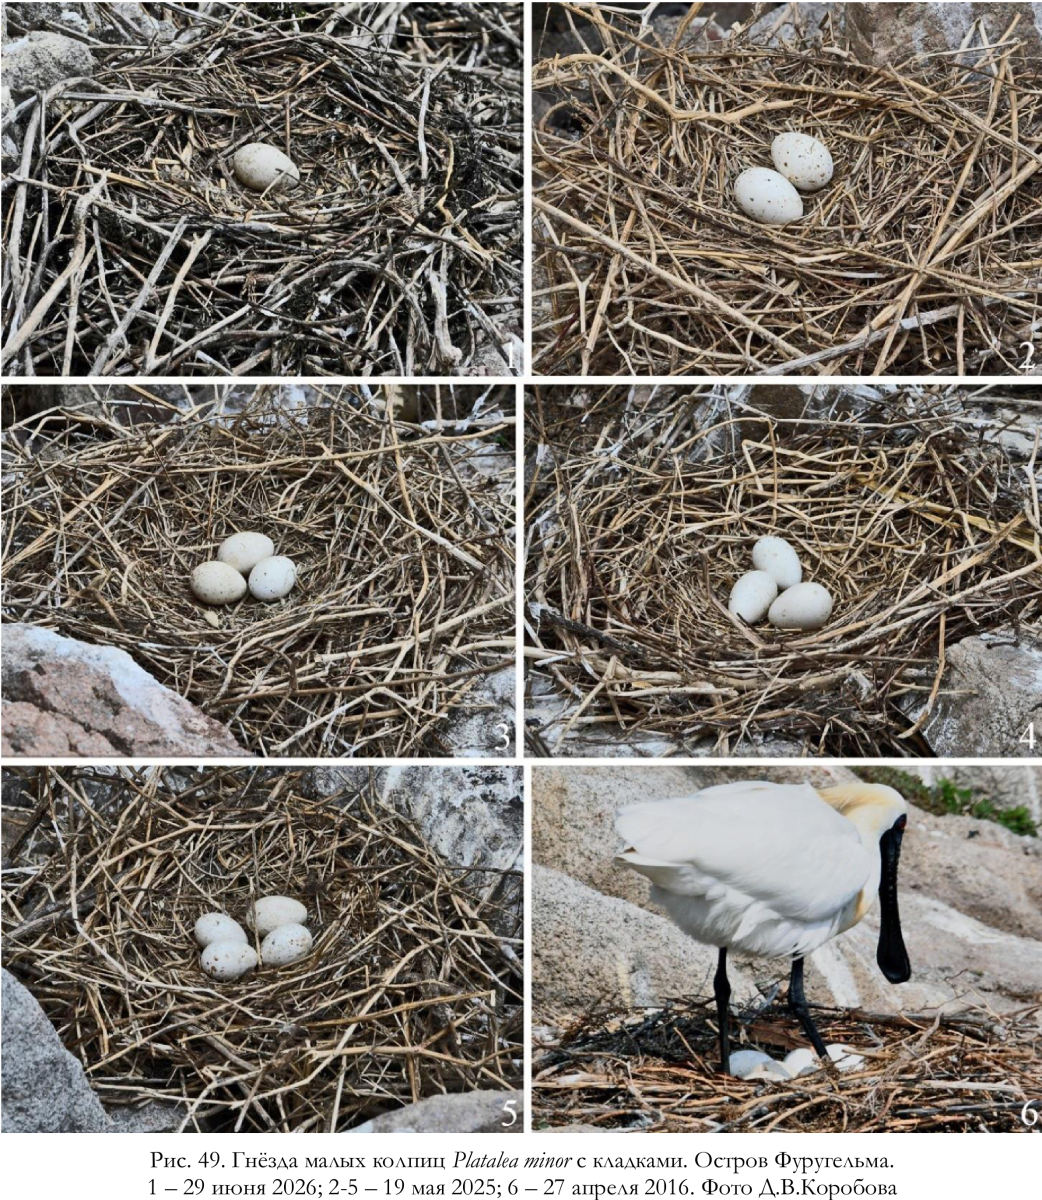
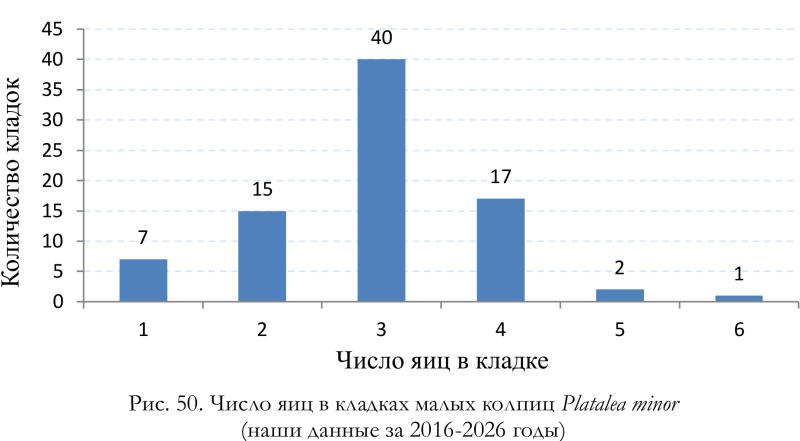
В гнезде, осмотренном на острове Фуругельма 6 мая 2006, находилось 3 яйца (Литвиненко, Шибаев 2011). По нашим данным, кладки малых колпиц (n = 82) содержат от 1 до 6 яиц (рис. 49, 50), средняя величина кладки – 2.94 яйца. При этом надо отметить, что поскольку насиженность яиц не уточнялась (наблюдения в подавляющем большинстве случаев велись дистанционно), явно не все учтённые кладки были завершёнными, следовательно, среднее число яиц в кладке несколько больше, чем указано нами. Также нельзя исключать и того, что крупные кладки малых колпиц, состоящие из 5 и 6 яиц, могли быть отложены двумя самками, что предполагается и для обыкновенных колпиц (Белик 2011).
Линейные размеры яиц малой колпицы и индекс их удлинённости приведены в таблице 4. Согласно нашим данным, вес свежих яиц (n = 10) варьировал от 51.2 до 67.2 г и в среднем составил 60.15 г. Объём яиц, рассчитанный по формуле: V = 0.51LB2, где L – длина яйца, B – максимальный диаметр (Hoyt 1979), составил 51.2-64.9, в среднем 58.03 см3 (n = 19). Одно из яиц, коллектированных на острове Фуругельма, имело белый фон с беспорядочно разбросанными мелкими и более крупными светло-коричневыми и зеленовато-коричневыми пятнами, а три других яйца выглядели грязновато-белыми с бледно-бурыми не очень многочисленными пятнами (Литвиненко, Шибаев 2011). Окраска скорлупы яиц некоторых кладок, дистанционно сфотографированных нами на острове Фуругельма, показана на рисунке 51.
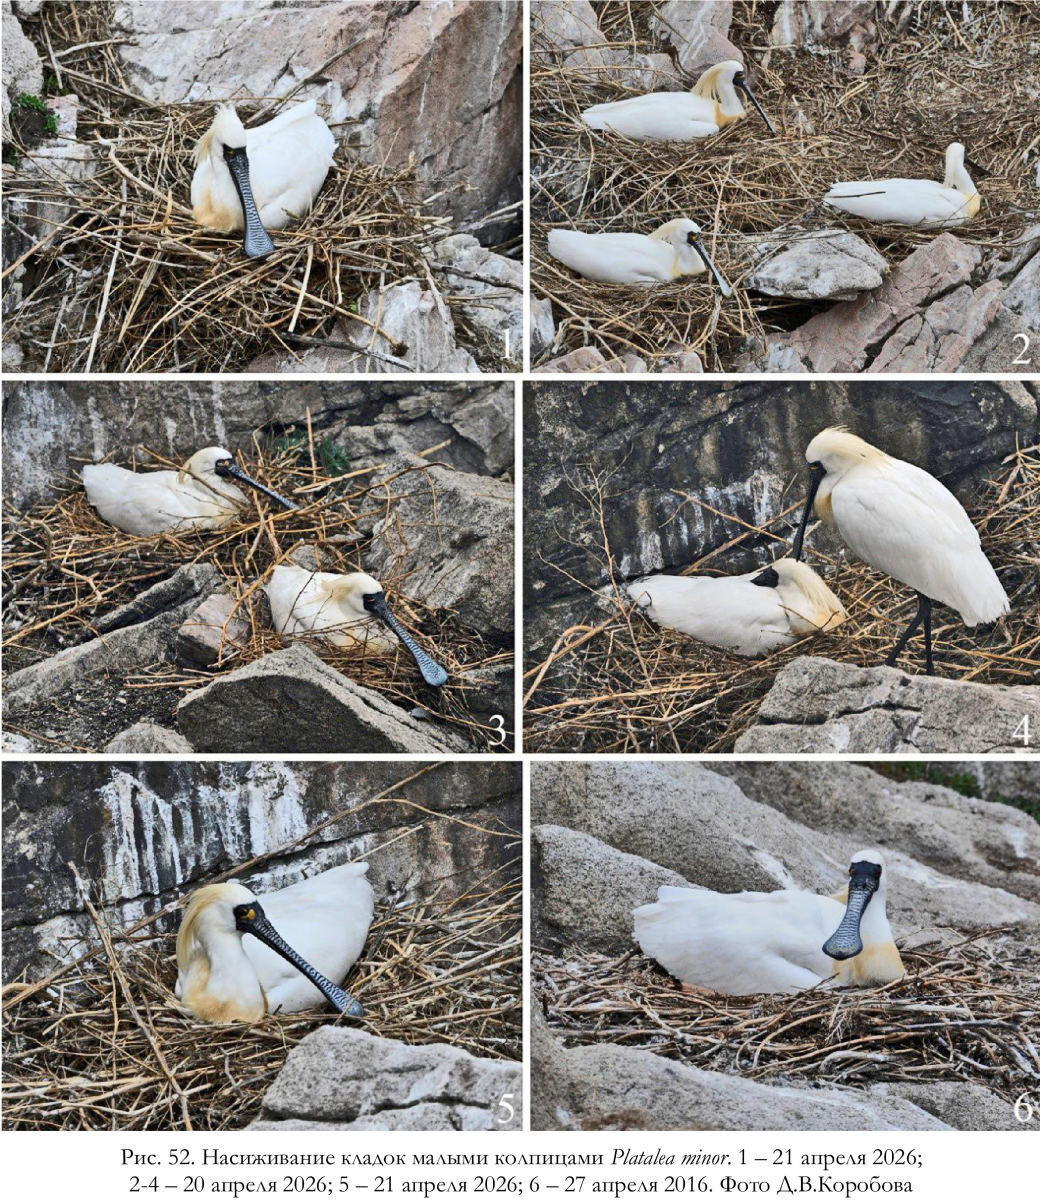
В насиживании кладки участвуют как самка (рис. 52.2), так и самец (рис. 52.1). Процесс смены партнёров на гнезде, который проходил в течении 3 мин (с 11:02 до 11:05 по местному времени), нами отмечен 20 апреля 2026. За этот период свободная от насиживания птица принесла и передала насиживающей особи фрагмент строительного материала, который был уложен в гнездо. После ритуальных движений, заключавшихся в широком раскрывании клювов и распускании хохлов, насиживающая особь покинула постройку и занялась приведением оперения в порядок, а её партнёр, перевернув яйца кладки, уселся на них (рис. 53).
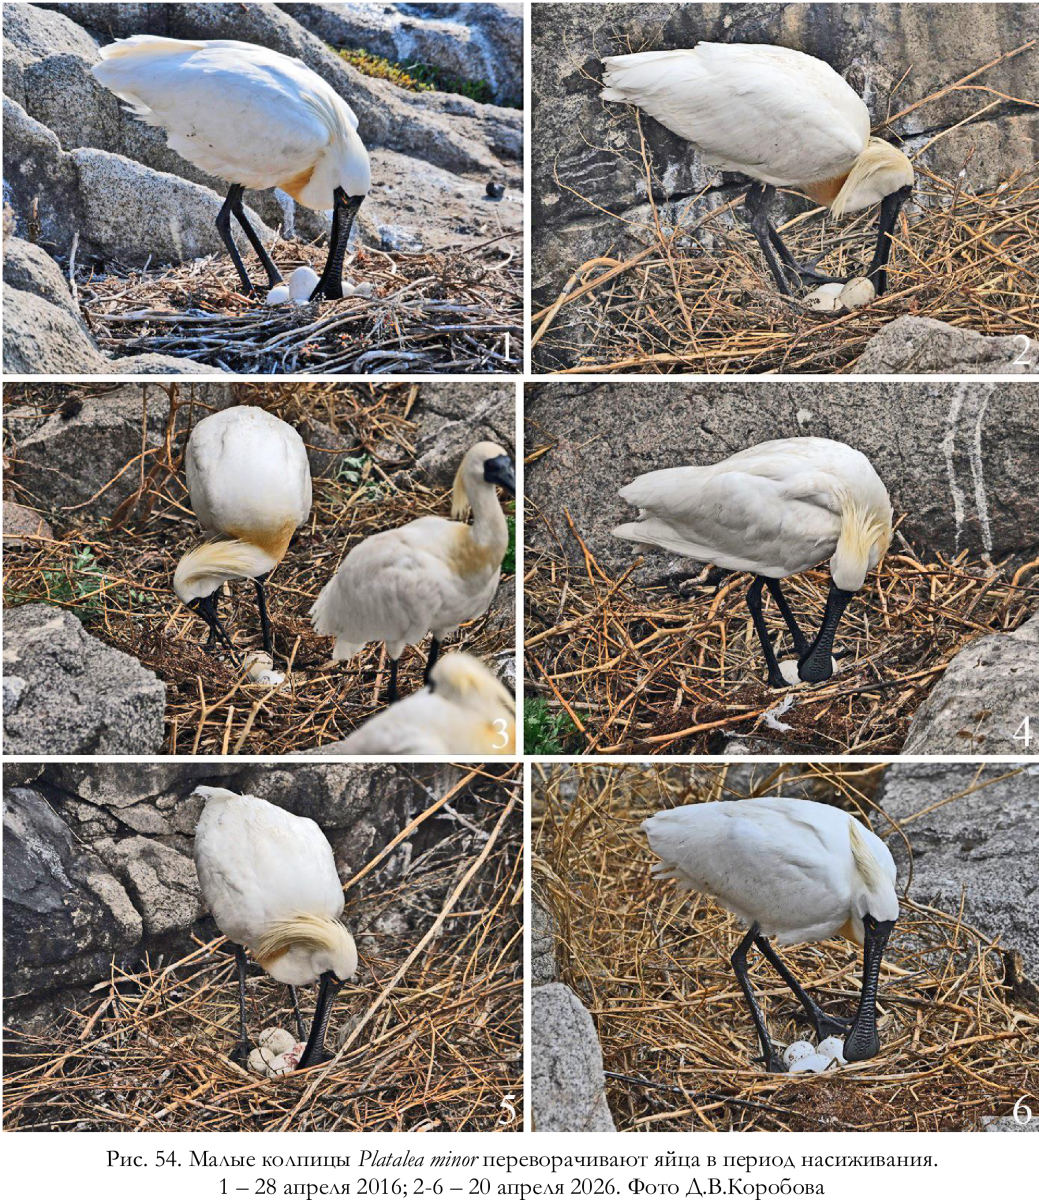
Периодическое переворачивание яиц насиживающие птицы производят регулярно (рис. 54).



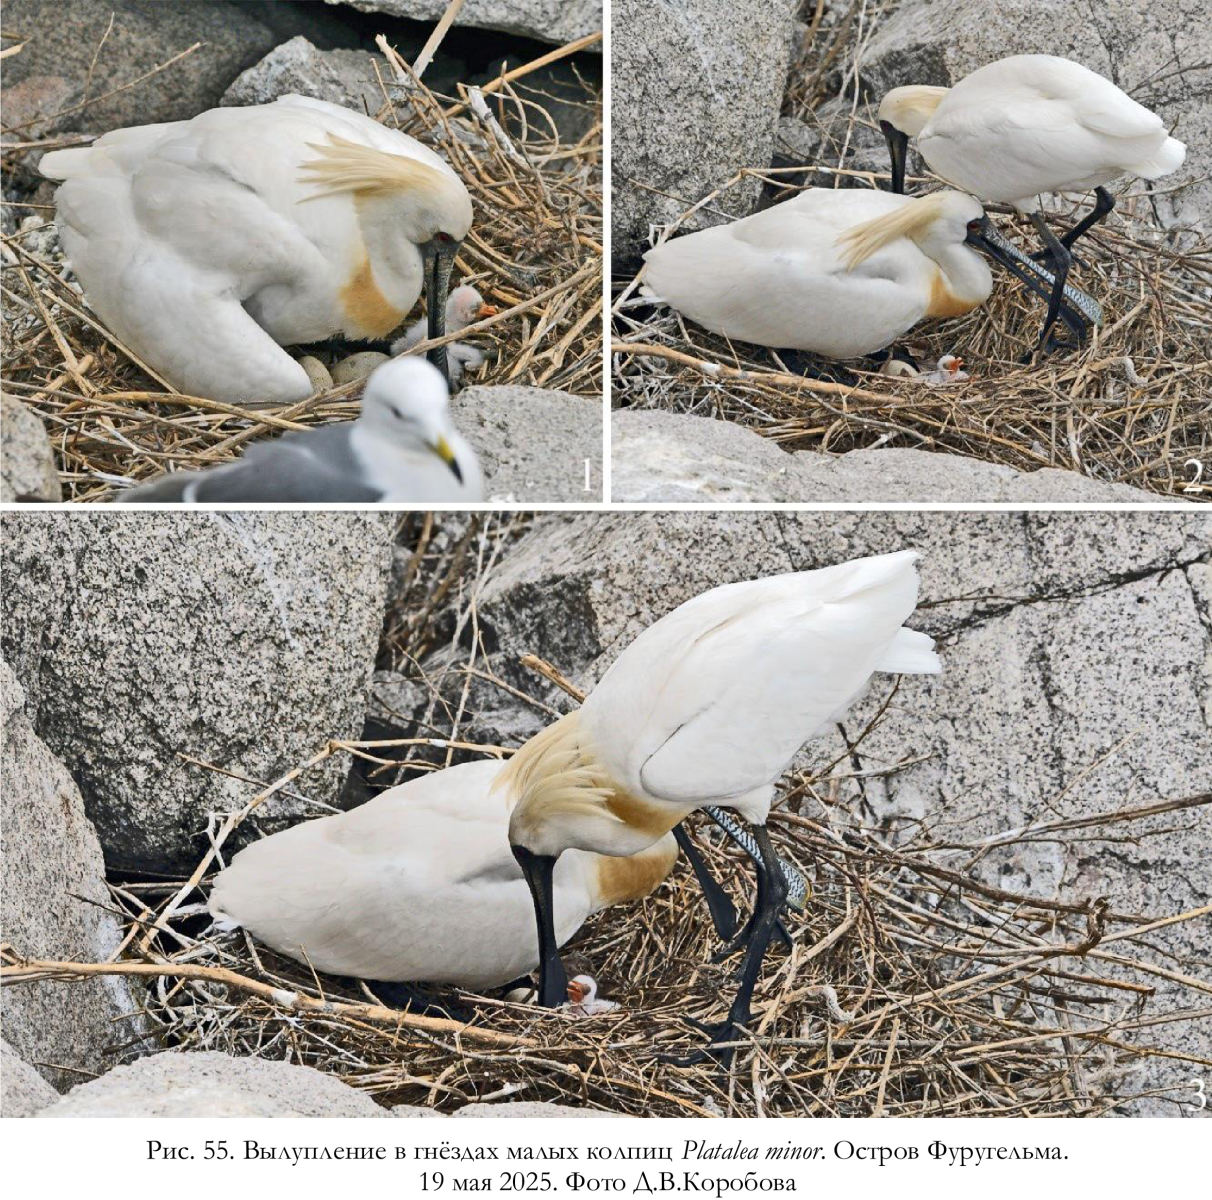
Процесс вылупления птенцов в 3 кладках мы наблюдали 19 мая 2025 (рис. 55), при этом одна из взрослых птиц, находящаяся рядом с гнездом, помогала птенцу освободиться от скорлупы (рис. 55.3).
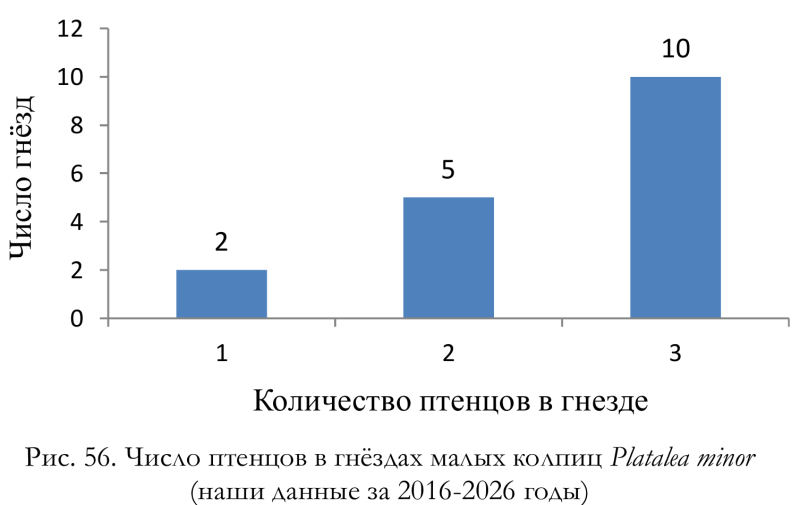
Пуховых птенцов мы наблюдали со второй половины мая до второй половины июня, хотя при наличии кладок в конце июня некоторое количество пуховичков, скорее всего, бывает и в июле. Согласно нашим дистанционным наблюдениям, в гнёздах было от 1 до 3 птенцов (рис. 56), а в среднем на одно гнездо приходилось 2.47 птенца (n = 17).
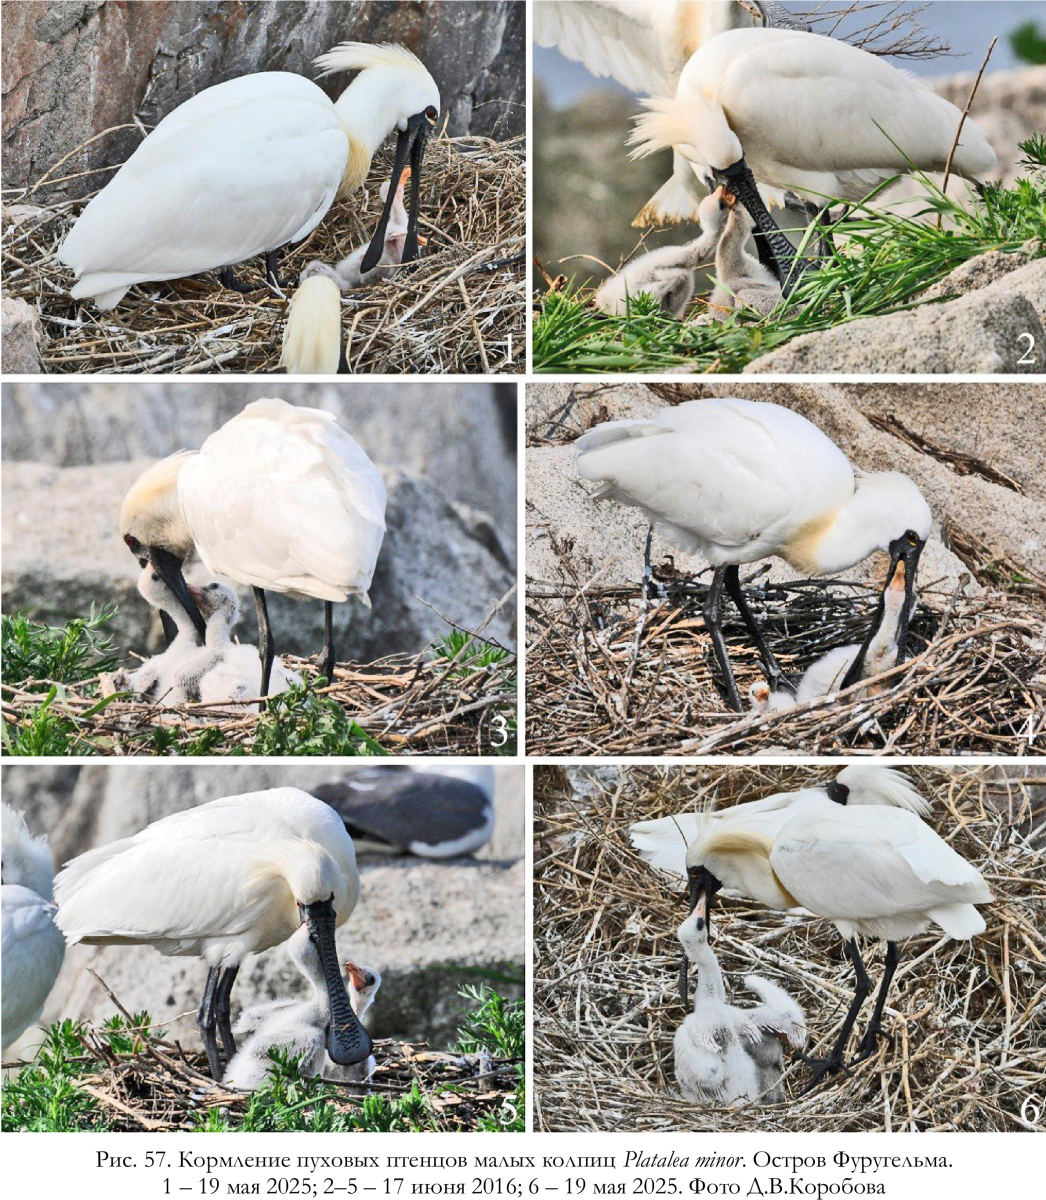
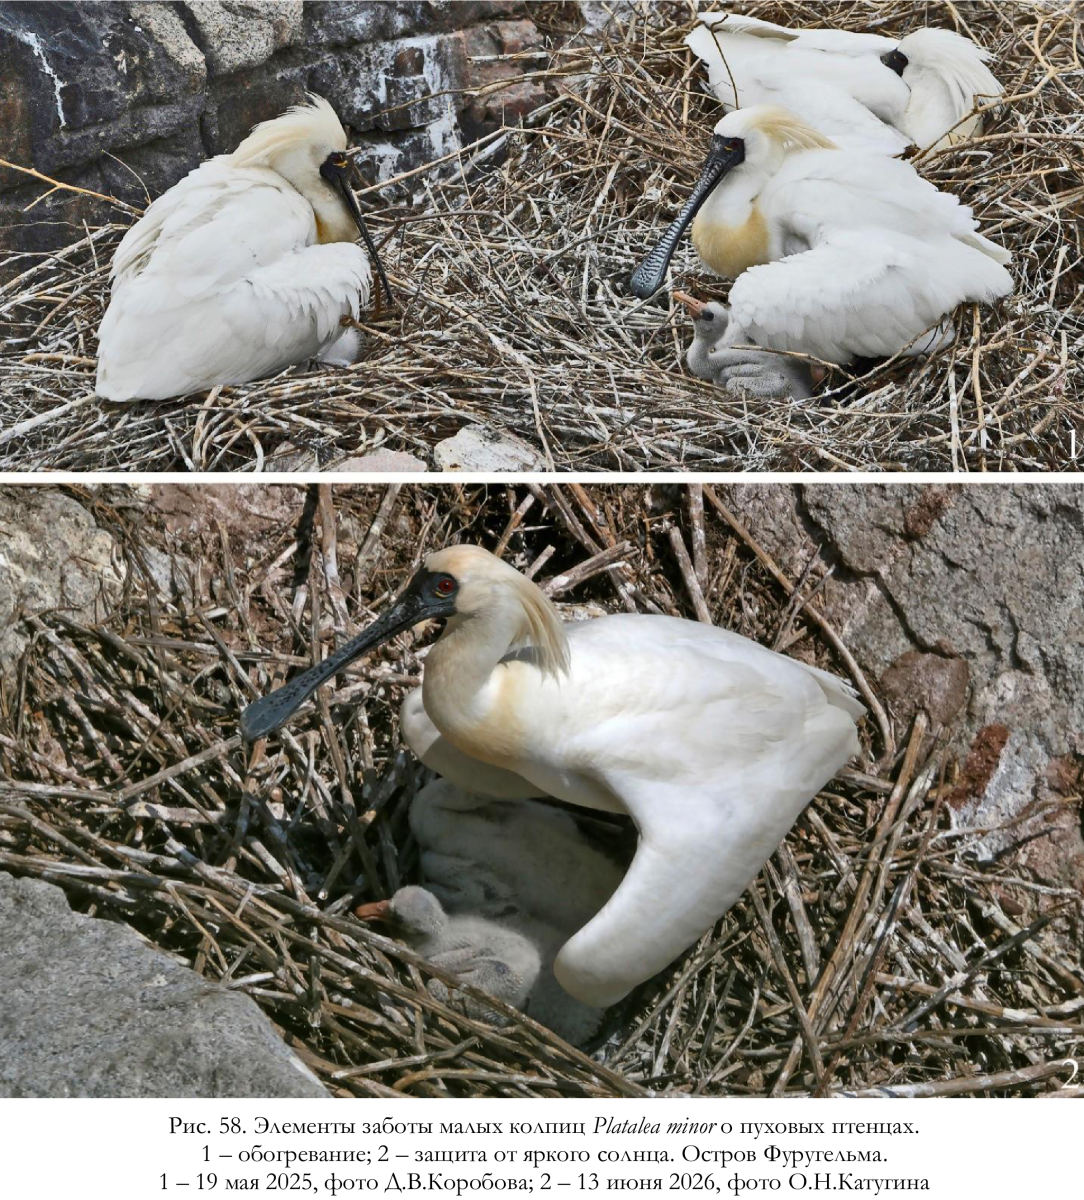
Пуховых птенцов взрослые птицы кормят (рис. 57), охраняют от возможных нападений чаек и обогревают (рис. 58.1), а при необходимости защищают от яркого солнца, создавая тень полураскрытыми крыльями (рис. 58.2).
По наблюдениям в Южной Корее на острове Токто, взрослые малые колпицы постоянно находятся при птенцах до 11-го дня после их вылупления (Chong et al. 1996).
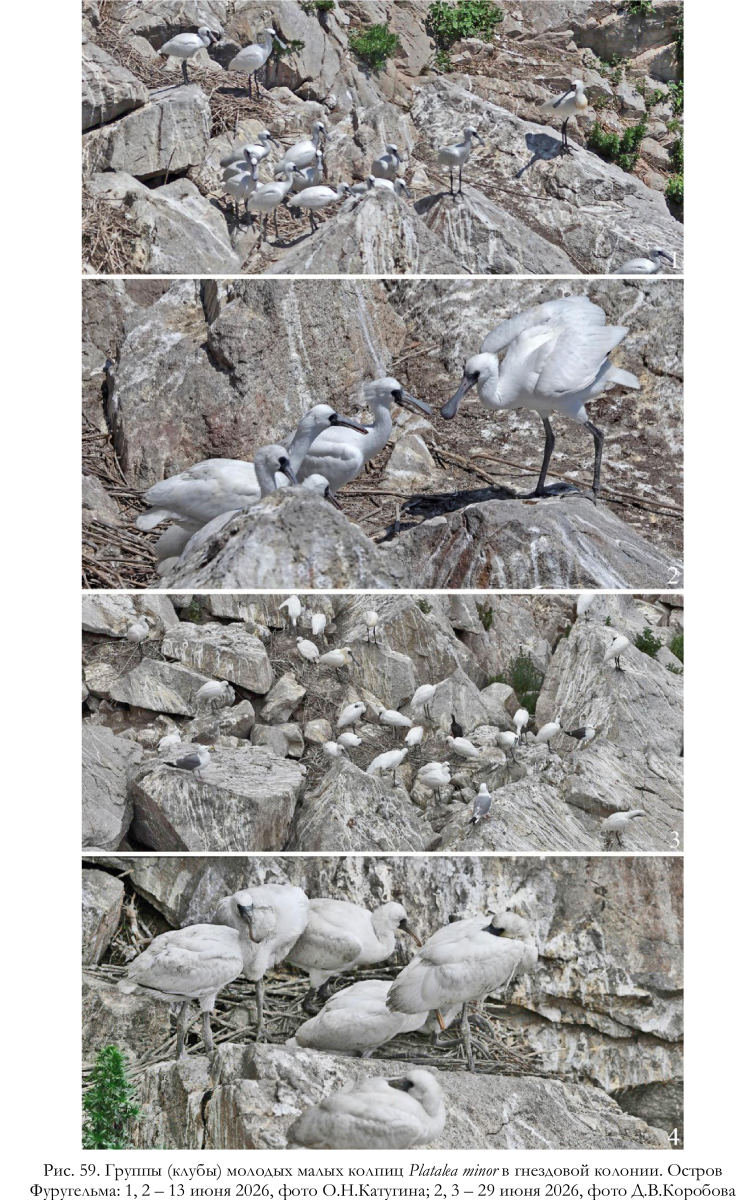
В июне подросшие птенцы одевают гнездовой наряд и ещё не умея летать могут временно покидать гнездо. В пределах колонии они нередко формируют птенцовые группы (клубы) из особей разных выводков (рис. 59). По данным, полученным в Южной Корее, птенцы малой колпицы полностью оперяются и обретают способность к полёту в возрасте около 40 дней (Chong et al. 1996).
В 2003 году погибли обе кладки, как первая, так и повторная; в 2004 и 2005 годах в 3 гнёздах суммарно вылупились 7 птенцов, 4 из которых дожили до вылета (Литвиненко, Шибаев 2011). По нашим данным, в 2026 году из 47 выявленных гнёзд к 13 июня дожили 89 птенцов (в 4 гнёздах в этот день ещё сохранялись кладки), из которых к 30 июня в колонии оставались около 60 птенцов разного возраста, а остальные, скорее всего, к этому времени покинули остров.
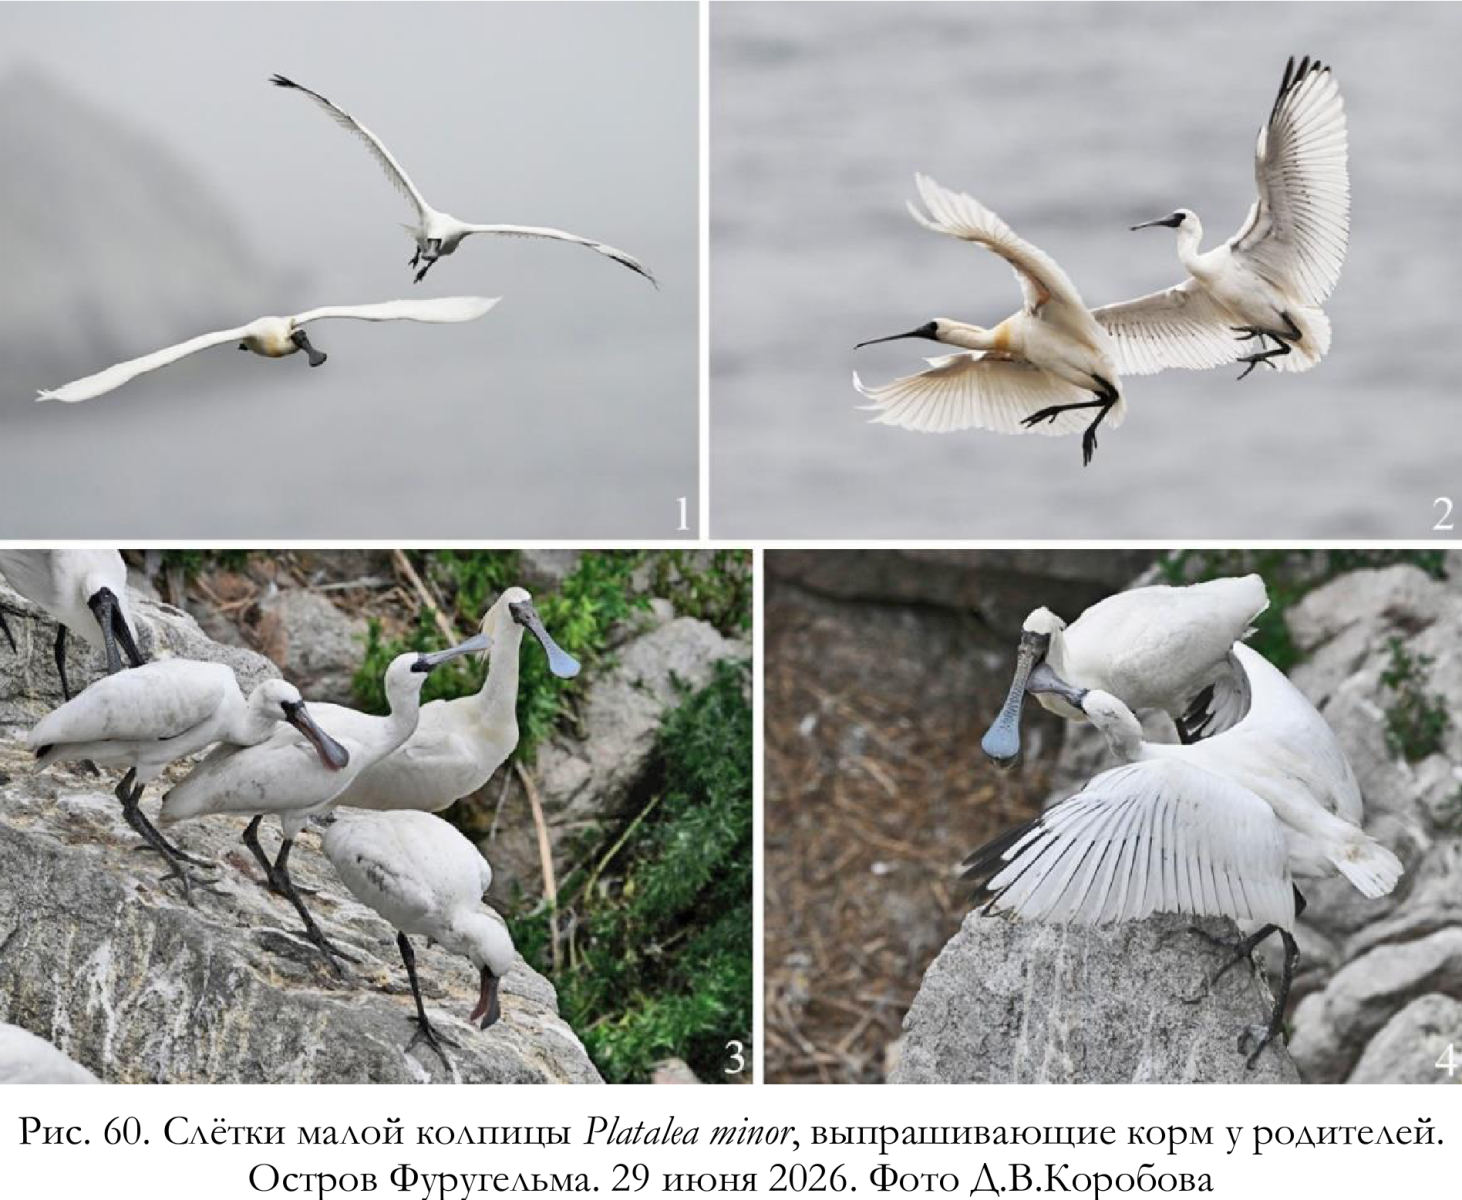
После того как молодые особи начинают хорошо летать, они ещё долгое время находятся в колонии, преследуя родителей и выпрашивая у них корм (рис. 60), а взрослые продолжают их кормить (рис. 61).
Послегнездовые кочёвки и осенние миграции. Наиболее подробные сведения по данному вопросу собраны нами в 2023 году, когда на мелководных лагунах и протоках западного побережья залива Петра Великого, расположенных от мыса Островок Фальшивый до озера Первая Протока, в послегнездовой период мы провели 5 полных учётов численности (Глущенко, Коробов 2023). Первый из них состоялся 11 июля, когда суммарно учли 68 птиц с обликом Platalea sp., при этом наиболее крупное скопление включало 54 особи (рис. 62.1), среди которых выделялись 6 особей с явными внешними чертами Platalea leucorodia, а остальные, согласно ряду морфологических признаков, нами были приняты за Platalea minor.

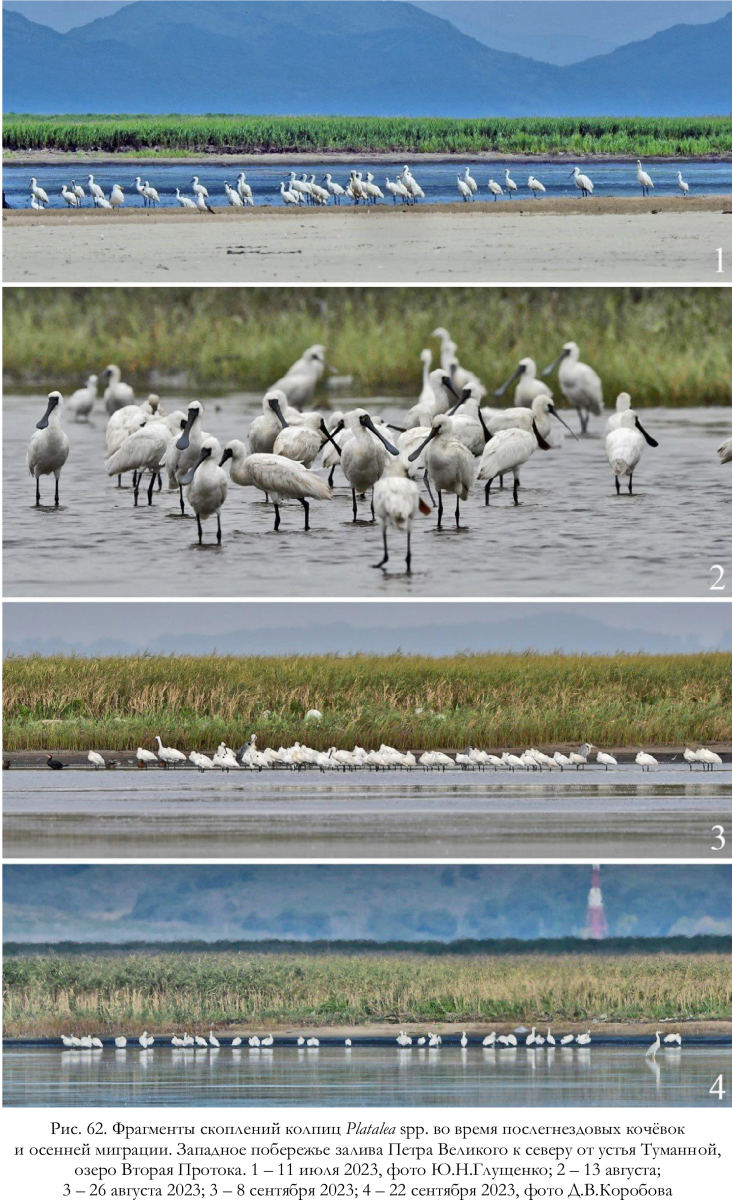
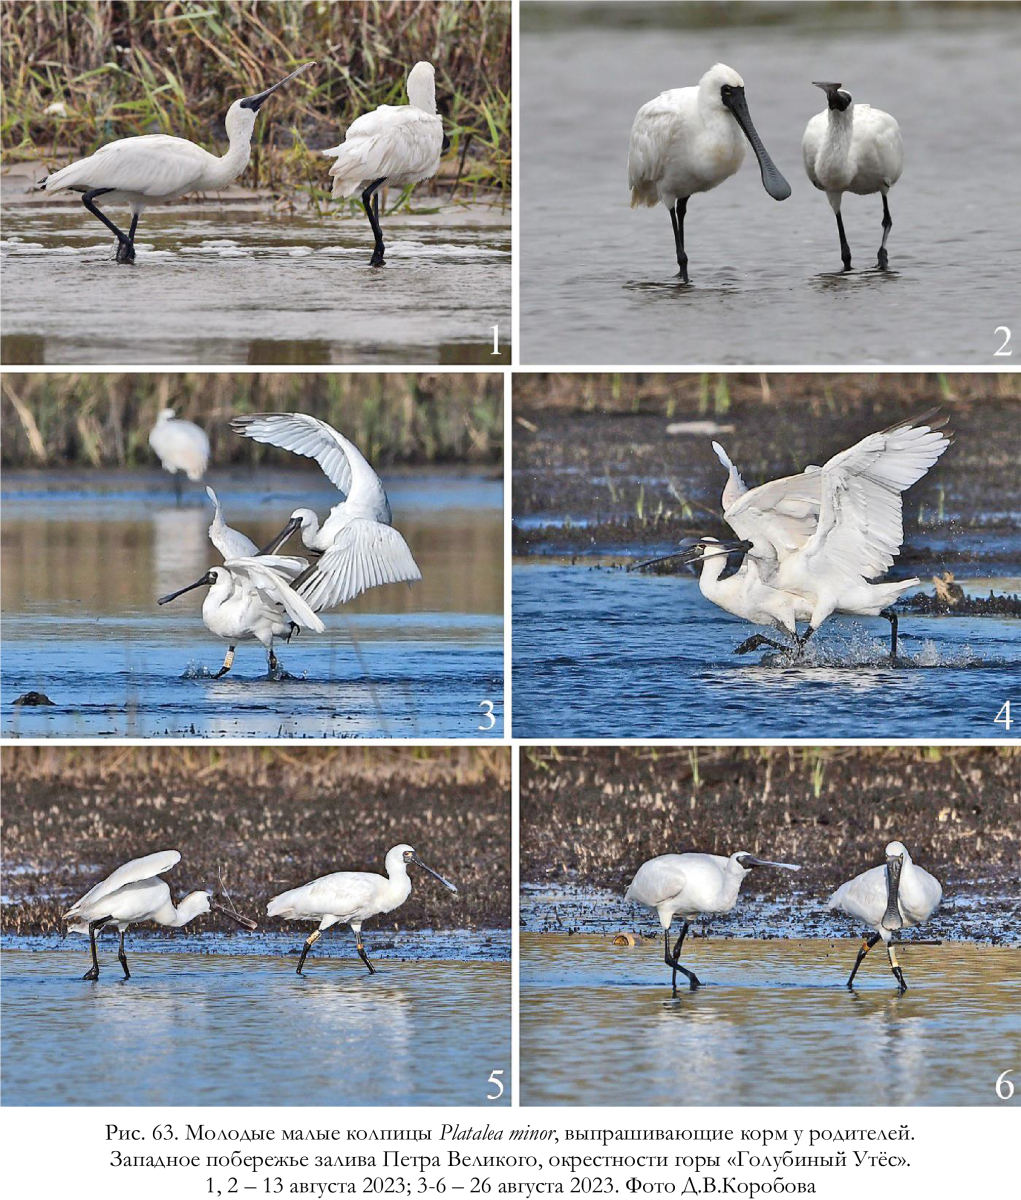
13 августа 2023 на том же маршруте наблюдали несколько одиночных птиц рода Platalea и их стай, включавших особей самых разных возрастных категорий. Общая численность составила 94 особей, а наиболее крупная стая насчитывала 52 птицы. По габитусу (общие размеры, форма, размеры и окраска «маски» и оголённой части горлового мешка, окраска клюва и т.д.) среди них лишь 12 птиц полностью соответствовали P. leucorodia, а остальные больше походили на P. minor, хотя у части особей (фенотипических гибридов) по вышеперечисленным признакам явно прослеживались элементы промежуточной внешней морфологии (Тиунов и др. 2023). Некоторые молодые малые колпицы 13 августа ещё продолжали выпрашивать корм у родителей, бегая за ними следом и кивая головой (рис. 63.1,2). Взрослые предпочитали уходить от их преследования, но изредка кормили молодняк.
Общая численность всех колпиц 26 августа 2023 здесь составила 65 особей, при этом самая крупная стая включала 39 птиц, среди которых «фенотипически чистыми» Platalea leucorodia были лишь 6. В этот день некоторые молодые колпицы продолжали выпрашивать корм у родителей (рис. 63.3-6).
Максимальное число колпиц Platalea spp. в 2023 году мы отметили 8 сентября, когда суммарно насчитали 112 экз., лишь 17 из которых обладали явными признаками P. leucorodia. Самая крупная группа включала 79 особей (рис. 62.3). В этот день мы в последний раз наблюдали кормление взрослой птицей молодой малой колпицы.
Наш очередной учёт численности колпиц на лагунах побережья к северу от устья реки Туманная состоялся 22 сентября 2023, когда суммарно мы насчитали 52 экз. Platalea spp. Судя по анализу сделанных фотоснимков, в этой группе впервые за все учёты 2023 года преобладали обыкновенные колпицы (рис. 62.4), но точную долю участия каждого из видов колпиц определить не удалось. Таким образом, в послегнездовой
период 2023 года в прибрежных районах крайнего юго-запада Приморского края на однодневном маршруте мы максимально насчитывали до 95 колпиц, которые по морфологическим признакам соответствовали малым и их фенотипическим гибридам с обыкновенными колпицами.
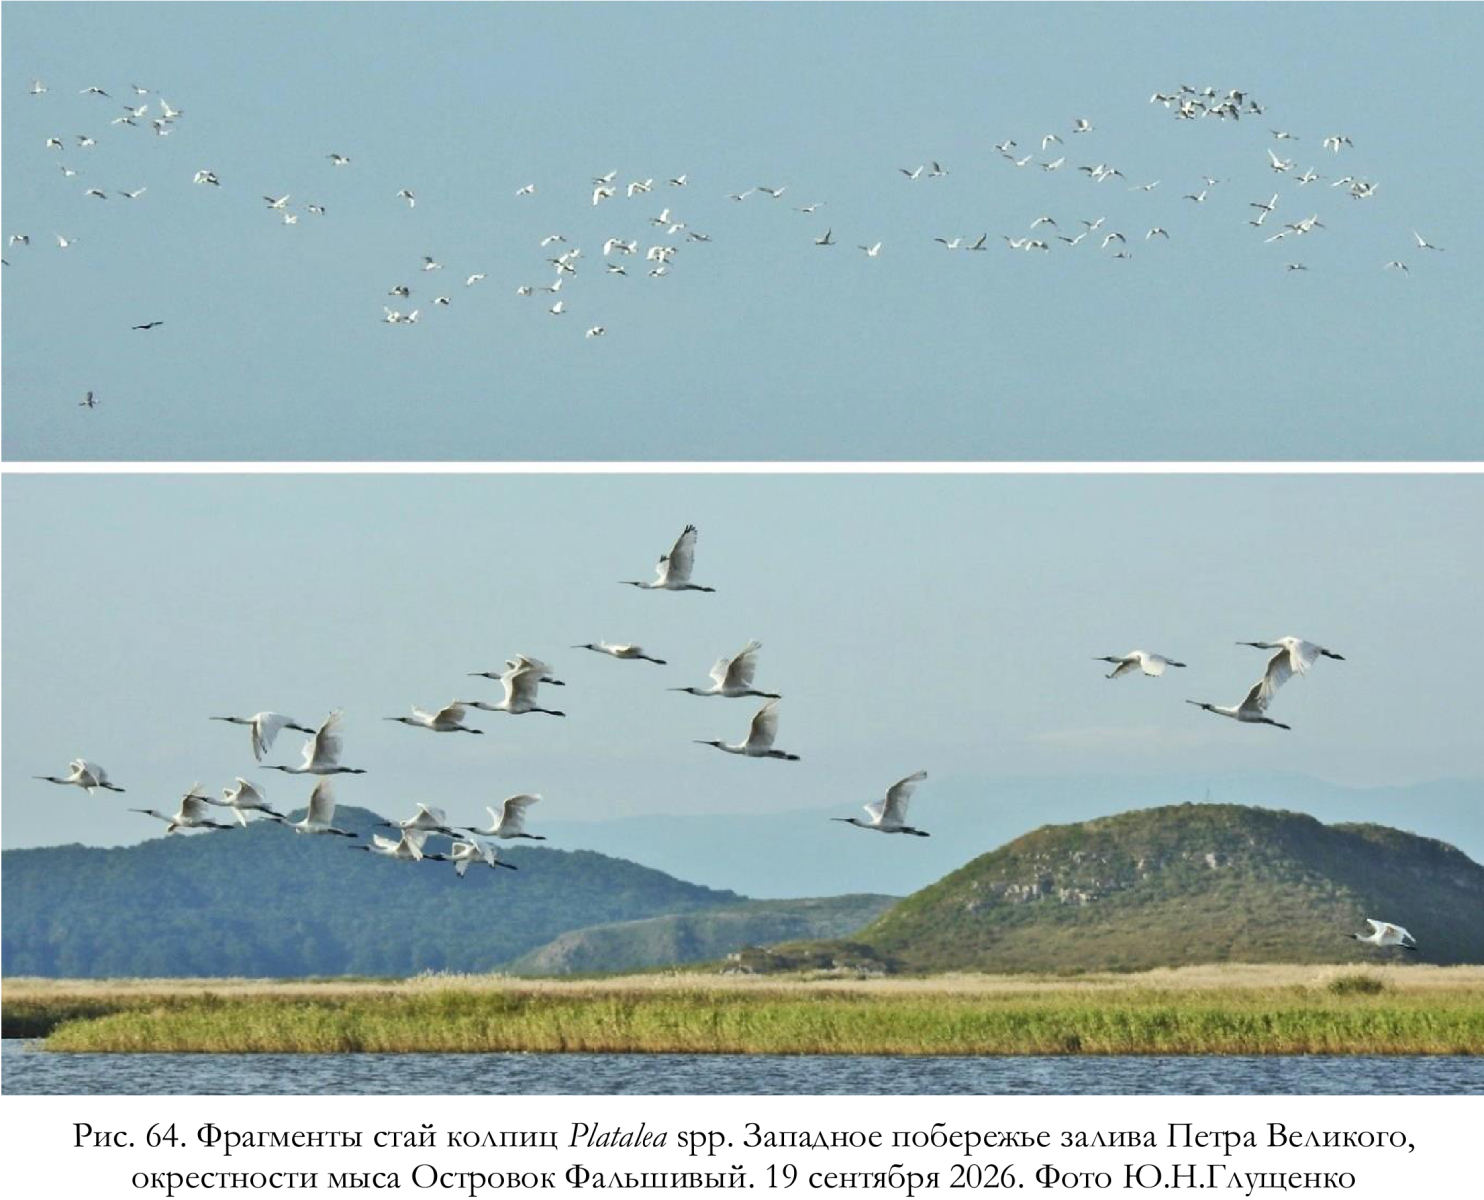
На том же участке побережья (от озера Вторая Протока до мыса Островок Фальшивый) 19 сентября 2026 мы отметили около 180 колпиц, самая крупная стая которых включала около 120 особей (рис. 64.1), около 80 % которых были малыми колпицами. В другой группе, насчитывающей 32 птицы (рис. 64.2), лишь одна была обыкновенной колпицей, а остальные оказались малыми колпицами.
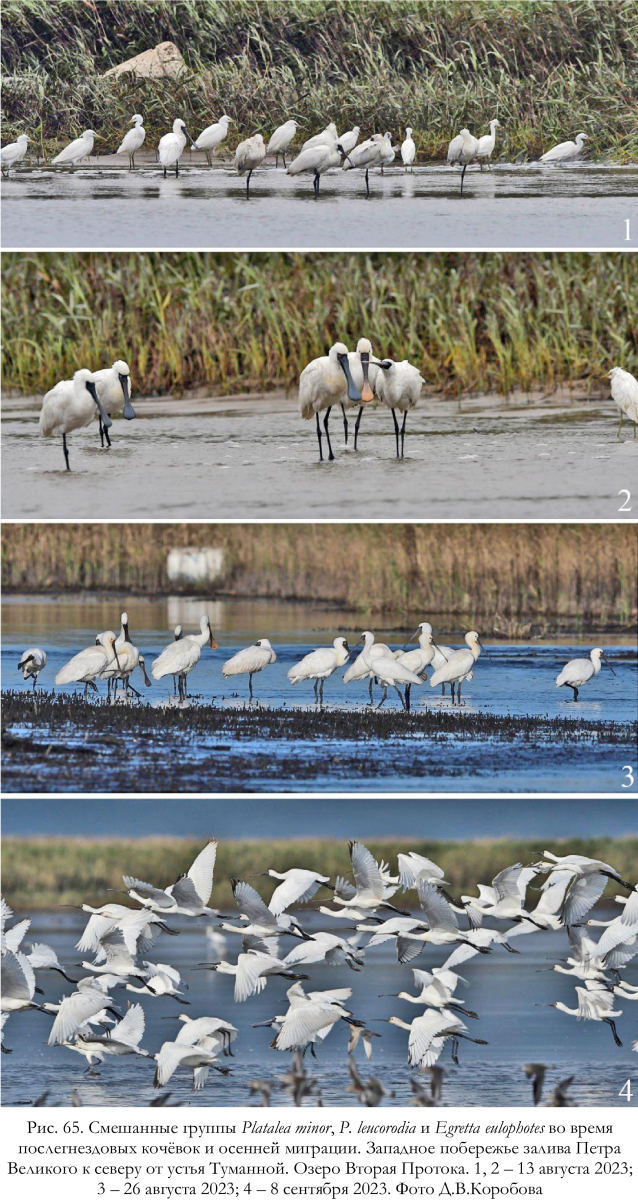
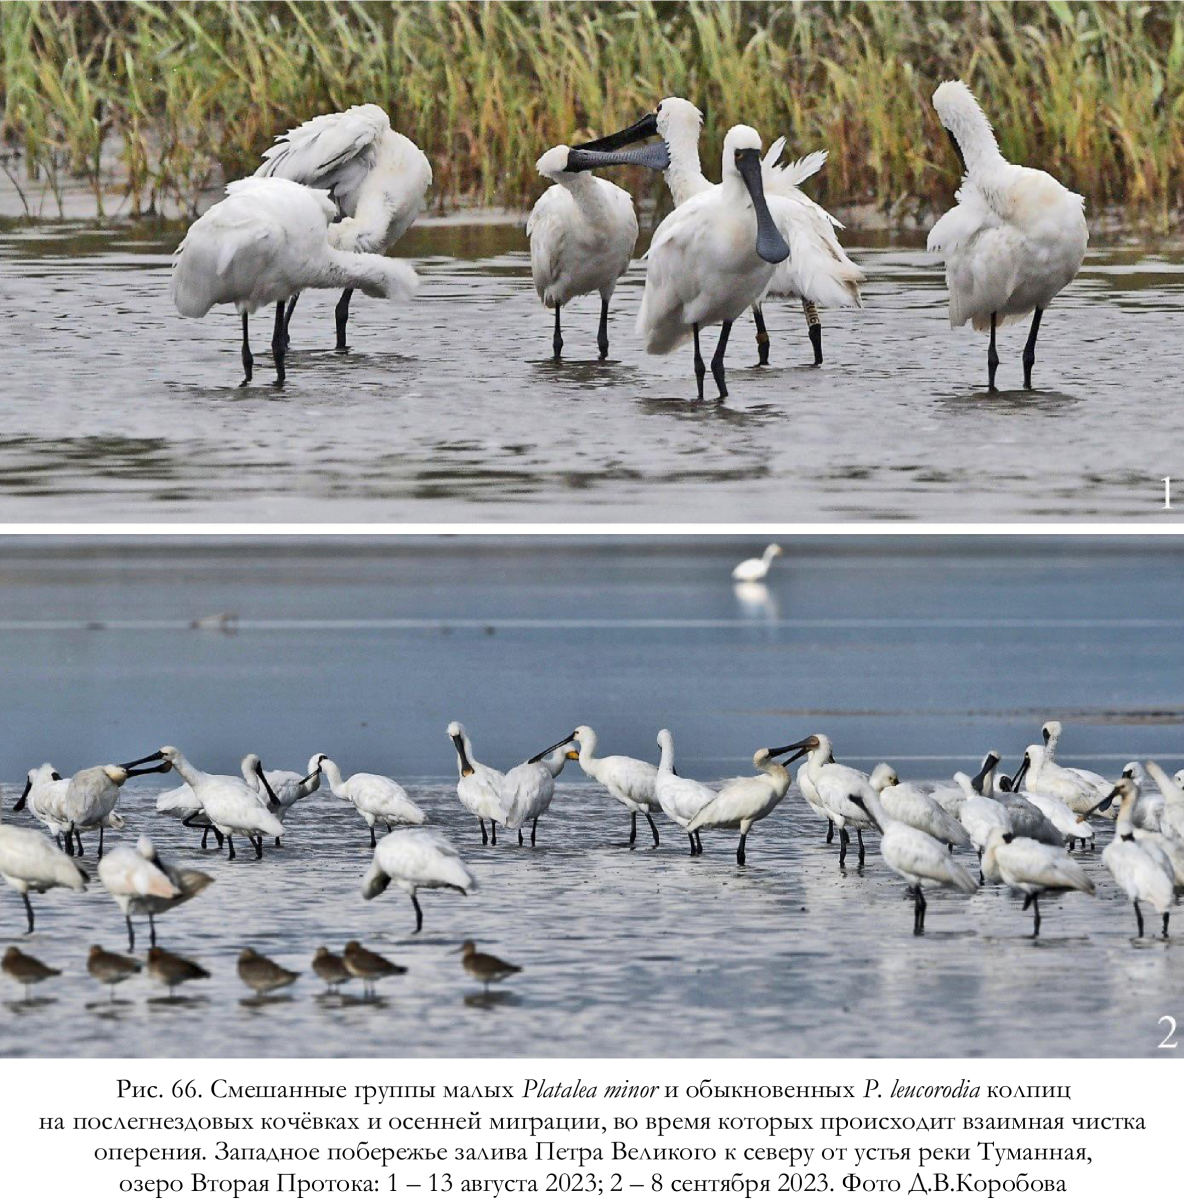
Во время послегнездовых кочёвок малые колпицы чаще всего держатся в смешанных группах с желтоклювыми цаплями и обыкновенными колпицами (рис. 65), при этом во время отдыха пары обоих видов колпиц периодически предпринимают взаимную чистку оперения, отмеченную нами как в августе (рис. 66.1), так и в сентябре (рис. 66.2). Октябрьские и более поздние встречи малых колпиц на юге Приморского края вполне возможны, но достоверно не выявлены.
Неблагоприятные факторы, враги, гибель. Одной из наиболее значимых проблем, с которой малые колпицы сталкиваются в Приморье, является отсутствие охраны в основных местах кормёжки этих птиц на западном побережье залива Петра Великого. Как и в случае с желтоклювой цаплей (Глущенко и др. 2026), эти угодья лежат преимущественно за пределами особо охраняемых природных территорий и здесь проявляется мощный фактор беспокойства со стороны отдыхающих и охотников (Назаров 1989; Шибаев 2015, 2021). Такая ситуация сохраняется до сих пор, поскольку Хасанский природный парк, формально объявленный здесь в 1997 году, фактически не функционирует и давно назрела необходимость включения этой территории в состав Дальневосточного морского заповедника (Литвиненко, Шибаев 2005; Глущенко и др. 2009, 2010, 2012; Litvinenko, Shibaev 2000), который в настоящее время находится под управлением ФГБУ «Земля леопарда».
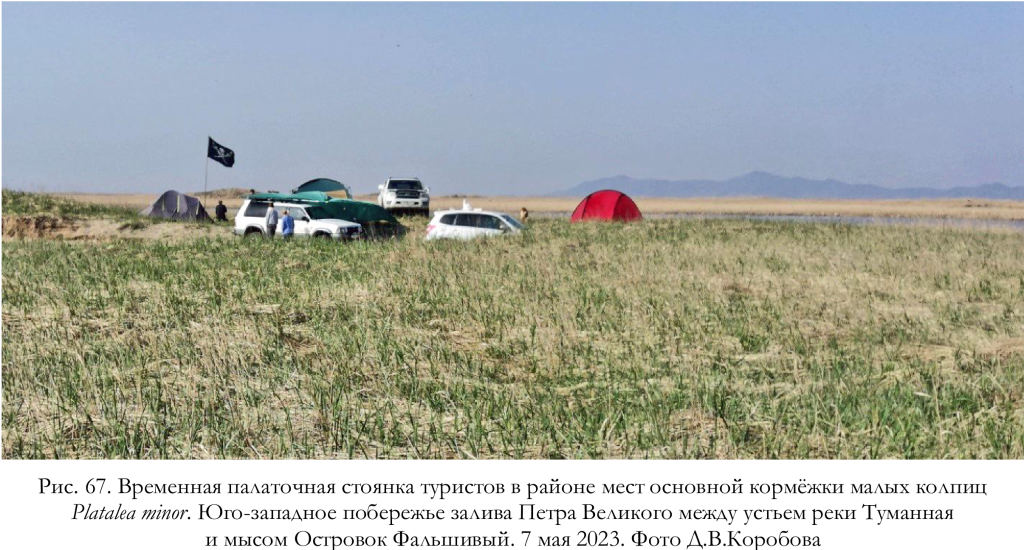
Многие участки песчаного побережья, расположенные в непосредственной близости от основных мест кормёжки малых колпиц, в настоящее время занимают представители неорганизованного туризма, создающие временные палаточные стоянки, а вдоль берега регулярно снуют их транспортные средства. Присутствие людей сильно беспокоит кормящихся птиц, вынужденных концентрироваться на отдалённых участках мелководий, обладающих менее качественной кормовой базой. Наибольший наплыв туристов здесь отмечен во второй половине лета, но в небольшом количестве они прибывают сюда уже в начале мая (рис. 67).
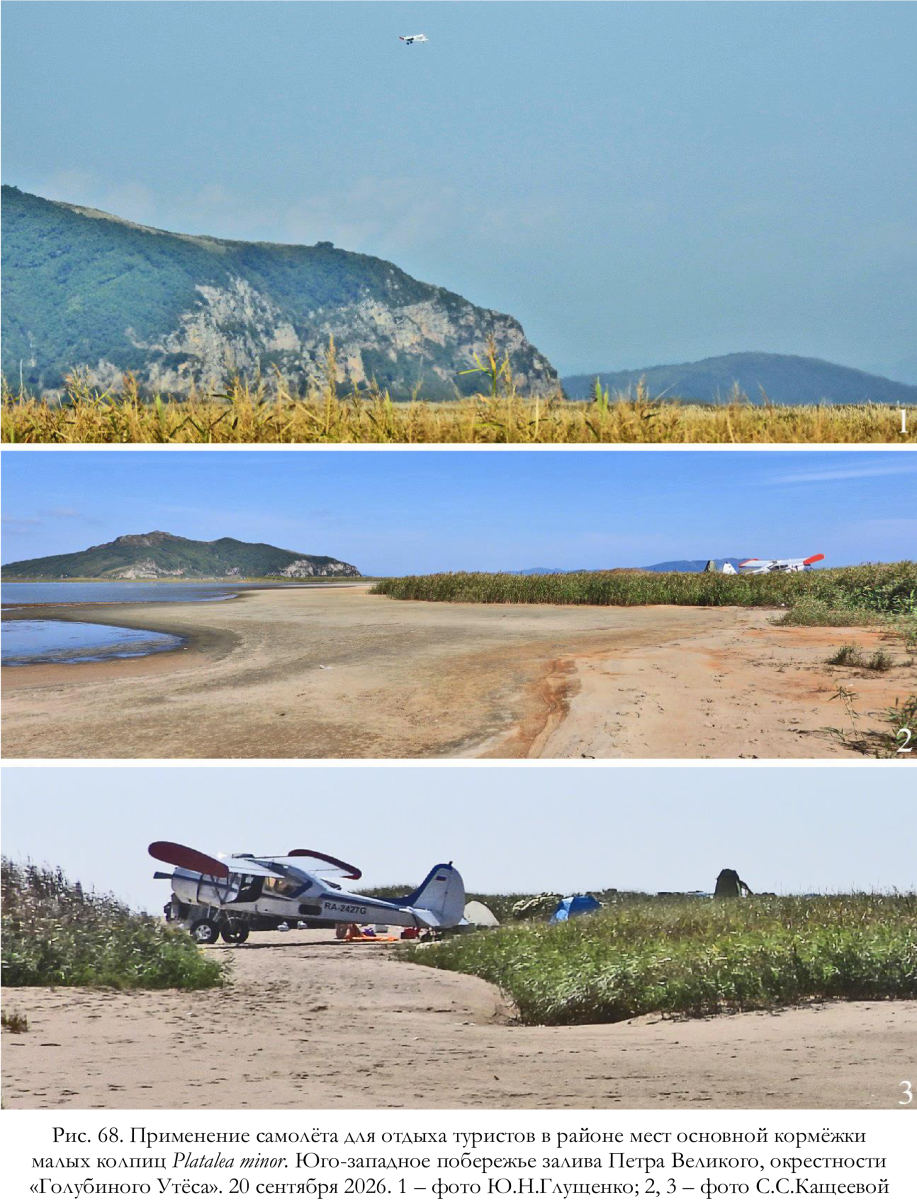
В последние годы туристы, отдыхающие в районе основных мест кормёжки малых колпиц и желтоклювых цапель, используют самолёт, который не только доставляет людей на место отдыха, но и совершает регулярный облёт территории (рис. 68, при этом вспугивая птиц. Такая практика, безусловно, должна быть искоренена в ближайшее время, чему может активно способствовать включение данной территории в состав национального парка «Земля леопарда» с введением необходимых ограничений её использования.
Помимо воздействия фактора беспокойства, в местах кормовых скоплений малых колпиц выявлены случаи их нелегального отстрела. Следует отметить, что первый в России экземпляр этого вида, попавший в руки орнитологов, был убит браконьерами и найден на побережье залива Голубиный 5 августа 1995 (Нечаев, Шибаев 1996). Остатки другой убитой взрослой птицы мы нашли на одной из проток этого залива 21 мая 2014.
На острове Токто, расположенном у восточного побережья полуострова Корея, выявлено разорение крупными чайками гнёзд малых колпиц с кладками (Chong et al. 1996). В пределах колонии на острове Фуругельма гнёзда этих птиц также могут разоряться монгольскими, тихоокеанскими и чернохвостыми чайками, особенно в случае, когда гнездящиеся птицы вспугнуты людьми. Следовательно, в репродуктивный период (с начала апреля до конца августа) необходимо ввести полный запрет на посещение района колонии посторонними лицами.
В заключение ещё раз отметим, что в настоящее время местная группировка малой колпицы увеличивает свою численность. Ранее этот вид, в отличие от обыкновенной колпицы, обитающей в тростниковых зарослях внутренних водоёмов, считался исключительно прибрежноморской птицей, места размножения и зимовок которого приурочены к морским побережьям. Это делало P. minor крайне уязвимым к любым изменениям природной среды.
Случаи гнездования и зимовки малой колпицы, отмеченные на территории водно-болотных угодий внутренних водоёмов, возможно, являются следствием гибридизации P. minor и P. leucorodia и возвратного скрещивания. Это может привести к потере статуса исключительно прибрежно-морского вида и представляет огромный потенциал для увеличения численности популяции малой колпицы за счёт возможности расширения ареала вглубь материка. Помимо этого, возможность зимовки части особей на менее уязвимых и подверженных изменениям водноболотных комплексах внутренних территорий увеличивает шансы на выживание и сохранение этого редкого вида (Глущенко и др. 2026). При этом не следует забывать, что в случае активной взаимной диффузии гнездовых поселений этих видов в дальней перспективе нельзя исключать ассимиляцию более малочисленной малой колпицы её более многочисленным родственным видом – обыкновенной колпицей, которая на востоке ареала в текущем столетии характеризуется весьма активной экспансией (Тиунов и др. 2023).
Литература
• Белик В.П. 2011. Колпица Platalea leucorodia Linnaeus, 1758 // Птицы России и сопредельных регионов: Пеликанообразные, Аистообразные, Фламингообразные. М.: 470-497.
• Глущенко Ю.Н., Кальницкая И.Н., Коробов Д.В. 2009. Проблемы охраны японского (Grus japonensis) и даурского (G. vipio) журавлей на весеннем пролёте в Юго-Западном Приморье // Животный и растительный мир Дальнего Востока 13: 50-54.
• Глущенко Ю.Н., Кальницкая И.Н., Коробов Д.В. 2012. О некоторых экологических проблемах Ханкайско-Раздольненской равнины и Юго-Западного Приморья // Животный и растительный мир Дальнего Востока 16: 19-27.
• Глущенко Ю.Н., Коробов Д.В. (2020) 2023. Два новых вида птиц в фауне Уссурийского городского округа: малая колпица Platalea minor и большой кроншнеп Numenius arquata // Рус. орнитол. журн. 32 (2308): 2393-2394. EDN: ZWSPGG.
• Глущенко Ю.Н., Коробов Д.В. 2023. Интересные орнитологические наблюдения и находки на юго-западе Приморского края в 2023 году // Рус. орнитол. журн. 32 (2362): 5038-5057. EDN: XDDJAI.
• Глущенко Ю.Н., Коробов Д.В., Кальницкая И.Н. 2010. Некоторые природоохранные проблемы, возникающие при ведении весенней охоты на водоплавающих птиц в Юго-западном Приморье и возможные пути их решения // Животный и растительный мир Дальнего Востока 14: 65-79.
• Глущенко Ю.Н., Коробов Д.В., Тиунов И.М., Беляев Д.А., Катин И.О. 2026. Динамика численности и естественная гибридизация малой колпицы Platalea minor Temminck et Schlegel, 1849 (Ciconiiformes: Threskiornithidae) на острове Фуругельма (залив Петра Великого, Японское море) // Биология моря 52, 3: 68-73.
• Глущенко Ю.Н., Нечаев В.А., Редькин Я.А. 2016. Птицы Приморского края: краткий фаунистический обзор. М.: 1-523.
• Глущенко Ю.Н., Сотников В.Н., Коробов Д.В., Акулинкин С.Ф., Вялков А.В., Кочетков Д.Н., Калинин Е.Д. 2016. Орнитологические наблюдения в Приморском крае в 2016 году // Рус. орнитол. журн. 25 (1339): 3491-3504. EDN: WKBQRX.
• Здориков А.И. 2019. О встречах редких видов птиц, новых для Сахалина и Курильских островов // Рус. орнитол. журн. 28 (1722): 330-334. EDN: VRNOUE.
• Коробов Д.В., Глущенко Ю.Н., Кальницкая И.Н., Сурмач С.Г. 2012. Залёты малой колпицы – Platalea minor Temminck et Schlegel, 1849 на побережье оз. Ханка // Дальневост. орнитол. журн. 3: 11-14.
• Литвиненко Н.М., Шибаев Ю.В. 1999. Новые орнитологические находки и наблюдения на крайнем юго-западе Приморья // Рус. орнитол. журн. 8 (71): 9-16. EDN: KEZXLV.
• Литвиненко Н.М., Шибаев Ю.В. 2005. Малая колпица Platalea minor Temminck et Schlegel, 1849 // Красная книга Приморского края: Животные. Редкие и находящиеся под угрозой исчезновения виды животных. Владивосток: 209.
• Литвиненко Н.М., Шибаев Ю.В. 2011. Малая колпица Platalea minor Temminck et Schlegel, 1849 // Птицы России и сопредельных регионов: Пеликанообразные, Аистообразные, Фламингообразные. М.: 497-507.
• Лукашкин А.С. (1934) 2014. Новые орнитологические находки и некоторые наблюдения над птицами Северной Маньчжурии // Рус. орнитол. журн. 23 (1012): 1849-1871. EDN: SFPDOT.
• Нечаев В.А. 2003. Новые сведения о птицах Южного Приморья // Рус. орнитол. журн. 12 (210): 86-89. EDN: IJVUJH.
• Нечаев В.А., Гамова Т.В. 2009. Птицы Дальнего Востока России (аннотированный каталог). Владивосток: 1-564.
• Нечаев В.А., Шибаев Ю.В. (1996) 2005. Малая колпица Platalea minor — новый вид фауны России // Рус. орнитол. журн. 14 (288): 442-443. EDN: IBMWFV.
• Романов А.Л., Романова А.И. 1959. Птичье яйцо. М.: 1-620.
• Сотников В.Н. 2023. Каталог коллекций. Птицы – Aves. Оологическая и нидологическая коллекции. Вып. 1. Неворобьиные – Non-Passeriformes. Киров: 1-240.
• Спангенберг Е.П., Фейгин Г.А. 1936. Птицы нижней Сыр-Дарьи и прилегающих районов // Сб. тр. Зоол. музея Моск. ун-та 3: 41-134.
• Тиунов И.М., Глущенко Ю.Н., Коробов Д.В., Сотников В.Н., Шохрин В.П. 2023. Колпица Platalea leucorodia на Дальнем Востоке России // Рус. орнитол. журн. 32 (2334): 3635-3663. EDN: HPZSBM.
• Тиунов И.М., Катин И.О. 2020. Колониально гнездящиеся птицы залива Петра Великого Японского моря (Пеликанообразные, Аистообразные) // Биология моря 46, 6: 377-383.
• Шибаев Ю.В. 2015. Желтоклювая цапля – редкий вид на северном пределе гнездования (современное состояние, элементы биологии) // 14-я Международ. орнитол. конф. Сев. Евразии. 1. Тезисы. Алматы: 544.
• Шибаев Ю.В. 2021. Малая колпица Platalea minor Temminck et Schlegel, 1849) // Красная книга Российской Федерации: Животные. М.: 536-537.
• BirdLife International 2001. Threatened birds of Asia: The BirdLife International Red Data Book. Cambridge: 1-3038.
• Brazil M. 2009. Birds of East Asia. China, Taiwan, Korea, Japan, and Russia. London: 1-529.
• Chen Y., Yu Y.-T., Meng F., Deng X., Cao L., Fox A.D. 2021. Migration routes, population status and important sites used by the globally threatened Black-faced Spoonbill (Platalea minor): a synthesis of surveys and tracking studies // Avian Research 12. Art. ID 74. https:// doi.org/10.1186/s40657-021-00307-z.
• Chong J-R., Isumi T., Heizo S. 2000. Captive breeding biology of Black-faced Spoonbill // Conserv. and res. of Black-faced Spoonbill and their habitat. Proc. of the International workshop in Tokyo, 12-16 June, 1997. 2nd ed.: 47-53.
• Chong J-R., Pak U.I., Rim C.Y., Kim T.S. 1996. Breeding biology of Black-faced Spoonbill Platalea minor // Strix 14: 1-10.
• Del Hoyo J., Collar N.J. 2014. Illustrated Checklist of the Birds of the World. Vol. 1: Non-Passeriformes. Barcelona: 1-903.
• Hancock J.A., Kushlan J.A., Kahl M.P. 1992. Storks, Ibises and Spoonbills of the World. London: 1-385.
• Hoyt D.F. 1979. Practical methods of estimating volume and fresh weight of bird eggs // Auk 96: 73-77.
• Kwon I.K, Lee K.S., Lee J.Y. et al. 2017. Hybridization between the black-faced Spoonbill (Platalea minor) and Eurasian Spoonbill (Platalea leucorodia) in South Korea // Waterbirds 40, 1: 77-81.
• Li S.H., Liu Y., Yeh C.F. et al. 2022. Not out of the woods yet: signatures of the prolonged negative genetic consequences of a population bottleneck in a rapidly re-expanding wader, the black-faced spoonbill Platalea minor // Molecular Ecology 31, 2: 529-545.
• Litvinenko N.M., Shibaev Y.V. 2000. Importance of Furugelm Island in the Sea of Japan for wetland birds: the first record of breeding colony of the Chinese egret Egretta eulophotes // Oryx 34, 4: 335-337.
• McCarthy E.M. 2006. Handbook of Avian Hybrids of the World. Oxford: 1-608.
• MacKinnon J., Phillips K.A. 2000. Field Guide to the Birds of China. Oxford: 1-450.
• Melville D.S., Leader P.J., Carey G.J. 2000. Movements and biometrics of Black-faced Spoonbills Platalea minor at Mai Po, Hong Kong in spring 1998 // Conservation and research of Black-faced Spoonbills and their Habitat. Proceeding of the International Workshop in Tokio, 12-16 June, 1997. 2nd ed.: 19-26.
• Shibaev Yu.V. 2010. Breeding of the Black-faced Spoonbill (Platalea minor) in the Peter the Great Bay (Primorye, Russia). Situation and prospects // Annual Report of Pro Natura Fund 19: 151-163.
• Sullender B.K., Barzen J., Silbernagel J. 2016. Foraging success and habitat selection of the Eurasian Spoonbill (Platalea leucorodia) at Poyang Lake, China // Waterbirds 39: 356-364.
• Tiunov I.M. 2021. Nesting of the black-faced spoonbill (Platalea minor) (Pelecaniformes: Threskiornithidae) and the hybrid partner on the coasts of Khanka Lake (the Russian Federation) // J. Asia-Pacific Biodiversity 14, 1: 111-115.
• Ueta M., Melville D.S., Wang Y. 2002. Discovery of the breeding sites and migration routes of Black-faced Spoonbills Platalea minor // Ibis 14: 340-342.
• Wood C., Tomida H., Kim J.H. et al. 2013. New perspectives on habitat selection by the Black-faced Spoonbill Platalea minor based upon satellite telemetry // Bird Conservation International 23: 495-501.
• Yu Y.-T., Fong H.H.N., Tse I.W.L. 2016. International Black-faced Spoonbill Census 2016. Black-faced Spoonbill Research Group, The Hong Kong Bird Watching Society, Hong Kong.
• Yu Y.-T., Yip K.Y., Li C.H. et al. 2022. International Black-faced Spoonbill Census 2022. Black-faced Spoonbill Research Group; The Hong Kong Bird Watching Society. Hong Kong
Юрий Николаевич Глущенко, Дмитрий Вячеславович Коробов. Тихоокеанский институт географии ДВО РАН, Владивосток, Россия. E-mail: yu.gluschenko@mail.ru; dv.korobov@mail.ru
Иван Михайлович Тиунов. ФНЦ биоразнообразия наземной биоты Восточной Азии ДВО РАН, Владивосток, Россия. E-mail: ovsianka11@yandex.ru
Олег Николаевич Катугин. Тихоокеанский филиал ФГБНУ «ВНИРО» («ТИНРО»), Владивосток, Россия. E-mail: okatugin@mail.ru
Дмитрий Анатольевич Беляев. Приморский государственный аграрно-технологический университет, Уссурийск, Приморский край, Россия. Объединённая дирекция государственного природного биосферного заповедника «Кедровая падь» и национального парка «Земля леопарда» им. Н.Н. Воронцова, Владивосток, Россия. E-mail: d_belyaev@mail.ru
Александр Эдуардович Врищ. Дальневосточный федеральный университет, Владивосток, Россия. E-mail: alexandr-vrisch@mail.ru
Игорь Олегович Катин. Национальный научный центр морской биологии им. А.В.Жирмунского ДВО РАН, Владивосток, Россия. E-mail: katinpelis@gmail.com
Источник
Русский орнитологический журнал 2026, экспресс-выпуск 2635. стр. 2945-3017.