

В процессе многолетнего изучения орнитофауны о-ва Сахалин исследовалась биология птиц местной фауны. Японская мухоловка — Ficedula narcissina Temm. — характерный, но до недавнего времени малоизученный вид данного района. Фрагментарные сведения о нем содержатся в немногих работах [Гизенко, 1955; Нечаев, 1969; Тамануки, 1942; и др.]. Наши исследования проводились с 1971 по 1981 г., а в 1978 г. мы специально занимались его биологией в условиях острова. В данной работе активное участие принимали В.Д. Куренков и Н.Н. Кудашова, которым автор искренне признателен. Помимо собственных материалов изучены доступные коллекции птиц, хранящиеся в отечественных музеях.
Распространение. Японская мухоловка — обычная, местами малочисленная гнездящаяся птица южной половины острова. Северная граница ареала проходит по северным отрогам Западно-Сахалинских (Камышовый хребет) и Восточно-Сахалинских гор (Набильский хребет). На западном побережье острова наиболее северное место ее встречи — долина р. Александровка, где 3 самца были добыты 1 июля 1881 г. [Никольский, 1889]. Не исключено, что птицы обитают и несколько севернее, однако в бассейнах рек Большая Уанги и Вагио нами они не встречены.
На восточном побережье самый северный пункт достоверного обитания вида — долина верхнего течения р. Набиль, где нами наблюдался выводок 3 августа 1977 г. В бассейне р. Тымь птицы распространены по всему течению реки: поющие самцы отмечались 23 июля 1980 г. в 40 км от устья. Указания А.И. Гизенко [1955] о гнездовании японской мухоловки в окрестностях г. Оха не подтверждены ни наблюдениями, ни коллекционным материалом.
Первое появление птиц на острове — середина мая. Местная популяция формируется к концу мая — началу июня. Птицы покидают остров с середины августа и в сентябре, а одиночные особи отмечались вплоть до 16 октября [Yamashina, 1927].
Места обитания, численность. В южных и центральных районах острова — это обычный вид как разнообразных долинных лесов, так и лесов горных склонов до 700—800 м над ур. м. На склонах мухоловка населяет хвойно-березовые и разреженные вследствие старых рубок елово-пихтовые леса. Однако наиболее оптимальные условия заселения вид находит в долинных тополево-ольхово-ивовых лесах с хорошо развитым подлеском. Населяют птицы и ольхово-лиственничные заболоченные леса. На северном пределе распространения вида птицы отмечались только в долинных лесах.
Наиболее высокая плотность популяции — до 10 пар на 1 км учетного маршрута — отмечена в долинных лесах, в частности в долинах рек Гюроыай и Тымь. На п-ове Крильон на склонах и в долинах рек Кузнецовка и Шебуинка мы учитывали от 6 до 8 пар на 1 км.
На северном пределе распространения в долине р. Тымь ниже устья р. Ныш и в долине этой реки в долинных лесах численность не превышает 1-2 пары на 1 км учетного маршрута.
Биология размножения. На местах гнездовий самцы, как взрослые, так и первогодки, появляются на несколько дней раньше самок. В этот период самцы очень заметны, много поют.
Песня японской мухоловки — это длительно звучащая громкая переливчатая трель. Она состоит как из мелодичных, флейтового характера строф, так и из маломузыкальных скрежещущих звуков. Очень типична имитация песен и позывов других птиц: соловья-красношейки, черного дятла, канюка и др. Наконец, необходимо отметить значительный индивидуальный характер песни у разных особей. Обычно песня повторяется почти без перерыва в течение 10—15 мин. Поющая птица чаще всего сидит на одной и той же ветви в течение 30 мин и более. Затем перелетает на другое место, где опять подолгу задерживается и энергично поет. Интенсивность пения заметно снижается в непогоду.
Территориальный агрессивный позыв — своеобразное скрежетаниe. Такие звуки самец издает при преследовании как другого самца, так и самки. Вокальная активность птиц заметно снижается к середине июля, но даже в конце августа нам случалось слышать тихие и короткие песенные трели. Слетки издают резкий писк, а позывка молодых птиц — отрывистое потрескивание, сходное с таковым у соловья-свистуна и синего соловья.
О готовности птиц к размножению можно судить по состоянию гонад. У взрослого самца от 26 .мая семенники имели размеры 6 х 3 и 5 х 2 мм, у другого — от 1 июня и самца-первогодка от 31 мая они были развиты незначительно. Максимально увеличенные гонады (8 х 3, 7 х 4 и 6,5 х 3,5 мм) были у взрослых птиц от 14 июня и 3 июля и у самца-первогодка от 11 июня. У самок, только что появившихся в местах гнездовий, фолликулы почти не увеличены. Через 2—3 дня после появления на гнездовом участке самка начинает поиски подходящего для постройки гнезда дупла; самец с песней сопровождает ее. Гнездо строит самка. Из 22 лнезд, найденных нами, 16 помещались в естественных дуплах и полудуплах, 3 — в старых, несколько разрушенных дуплах карликового дятла и пухляка, 1 — в углублении ствола пихты, выдолбленном черным дятлом, 1 — в изломе ствола ольхи и 1 —под коньком крыши брошенного строения. Из 21 гнезда на ольхе было найдено 12, на иве — 6 гнезд. Высота расположения гнезд варьировала от 1,2 до 8 м, причем 12 из них находились на высоте между 3 и 4 м.
Размеры дупел следующие:
леток (n = 10) — 3,2-7,0 х 4,0-8,0 (4,7±0,4 х 6,3±0,4);
высота от нижнего края летка (n = 11)—5,5—16,5(10,3±1,0);
ширина на уровне гнезда (n = 8)—6,5—13,0 (8,4±0,8) см.
Размеры помещенных в них гнезд:
ширина гнезда (n = 16) — 5,0—12,5×5,0—13,0 (8,2±0,5Х8,5±0,5);
диаметр лотка (n = 12)—4,5—6,7 (5,5±0,2);
высота гнезда (n = 8)—5,0—8,0 (6,4±0,3);
глубина лотка (n = 13)—2,0—6,0 (4,05±0,3) см.
Наиболее охотно заселяются достаточно просторные дупла с крышей и широким входом {форма которого не играет роли), но при их вероятном дефиците птицы поселяются и в очень тесных дуплах. В таком случае клюв, а иногда и голова сидящей на гнезде птицы видны снаружи.
Строительный материал гнезд и его количество значительно варьируют в зависимости от размеров дупла. Гнезда состоят преимущественно из лубяных волокон древесных и кустарниковых растений, кусочков бересты, талломов лишайника-бородача и зеленых мхов, корешков, сухих листьев древесных растений, осок и злаков. Иногда в среднем слое гнезда можно встретить остатки старых листьев березы, ольхи или ивы. Лоток выстилается эластичными полосками от стеблей травянистых растений, сухими листьями злаков и осок, корешками папоротников. Одно из гнезд было построено исключительно из веточек лишайников (Alectoria sp., Usnea sp. и др.), в лотке другого содержалось до 50 % шерсти енотовидной собаки. Одни гнезда состоят из трех слоев разных строительных материалов, другие — всего из нескольких переплетенных стеблей и листьев. Полностью законченные гнезда, но еще без яиц, найдены 12 и 17 июня.
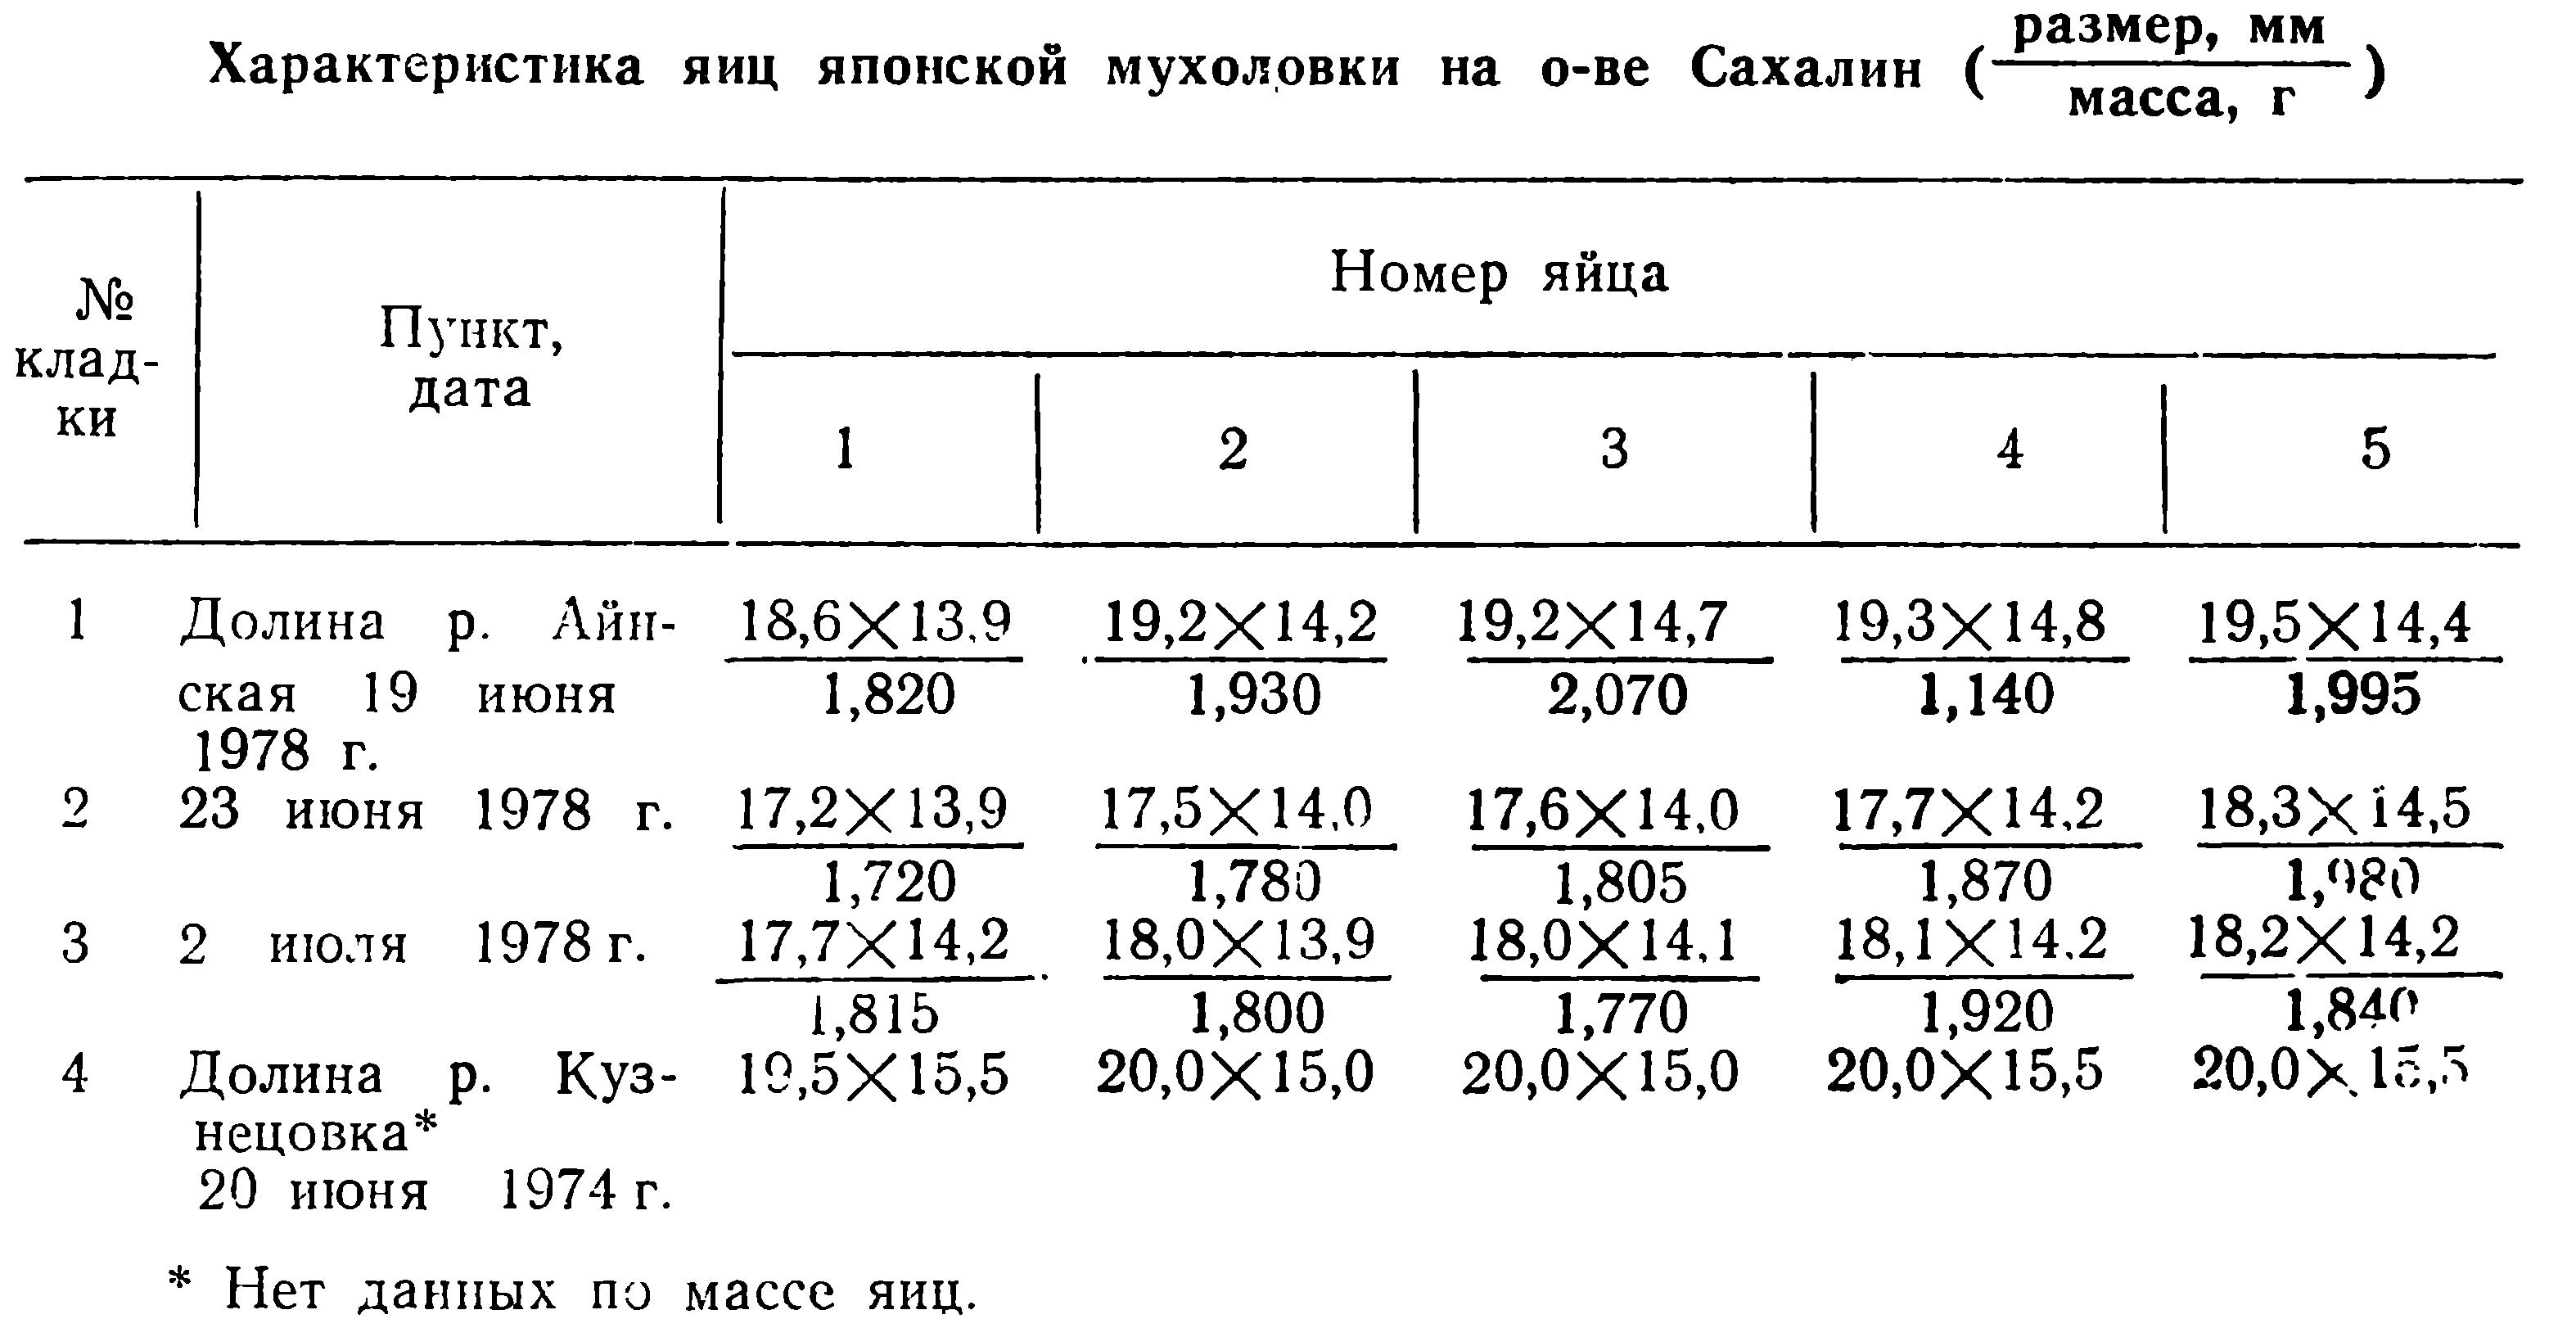
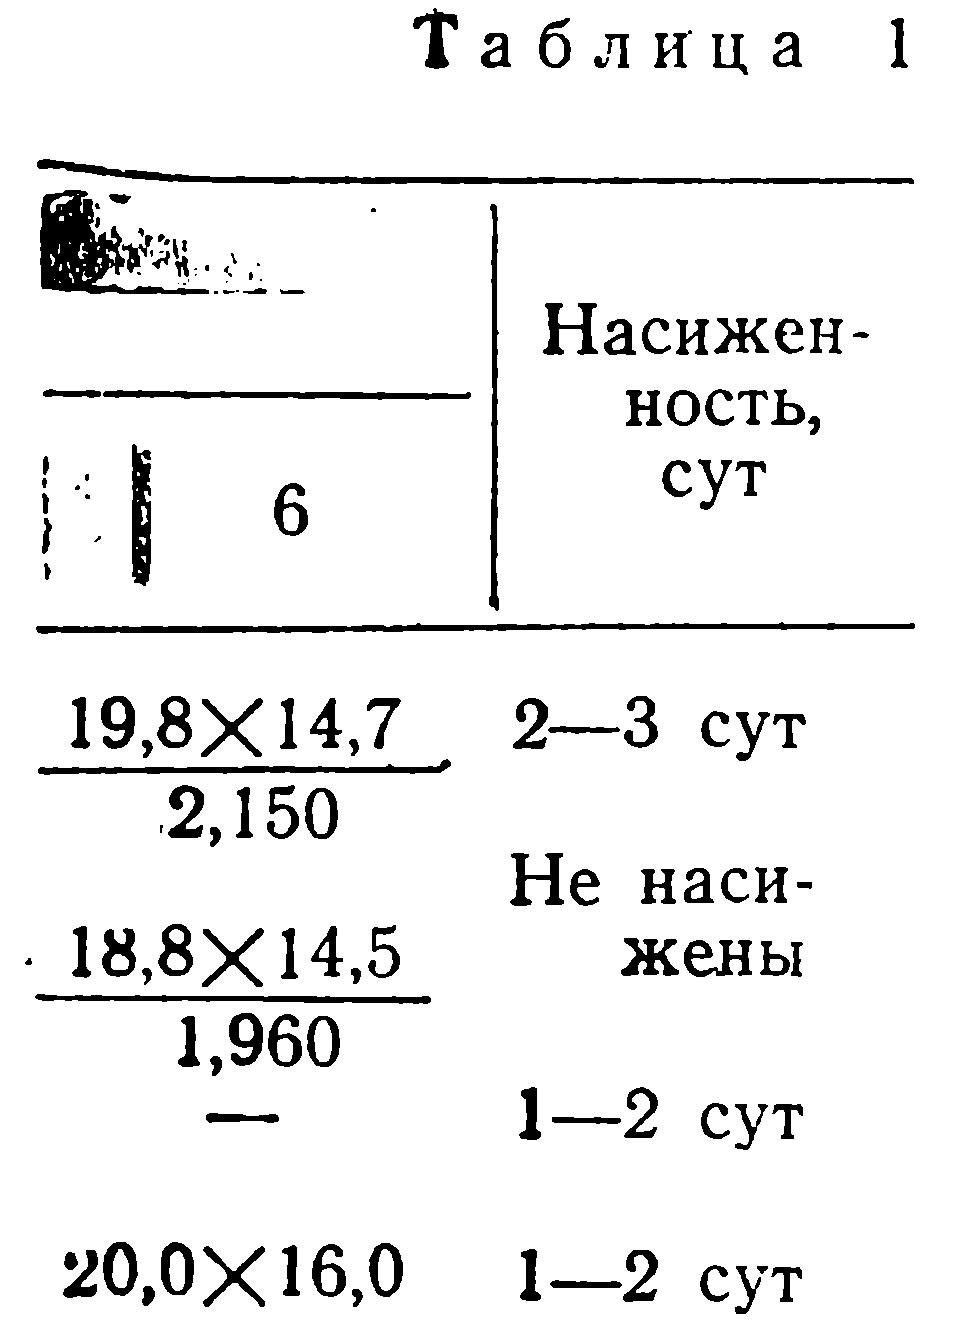
Полные кладки из ненасиженных яиц обнаружены 23 и 26 июня, повторная кладка — 7 июля. Из 10 полных кладок, найденных нами, в пяти было по 6 яиц, в четырех — 5, а в одной (повторной) — 4 яйца. Форма яиц — правильная яйцевидная, реже — укороченно-округлая. Как оказалось, у японской >мухоловки яйца бывают двух типов окраски: голубовато-зеленые со светло-бурыми пятнами, сконцентрированными на тупой половине яйца либо образующими венчик у тупого полюса, и розовато-белые с пятнами коричневого цвета, разбросанными более или менее равномерно по всей поверхности. В 6 случаях (из 10 осмотренных кладок) яйца имели первую окраску.
Размеры яиц (п = 56) :17,0-21,5 х 13,5-16,0 (18,20±0,1 х 14,15±0,07) мм. Размеры и масса яиц в некоторых кладках приведены в табл. 1. Описание гнезда с кладкой из 3 яиц данного вида давно известно в литературе [Munsterhjelm, 1922], на него ссылаются К.Н. Благосклонов [1954] и А.И. Гизенко [1955]. Однако, как нам удалось установить, это описание относится к гнезду и яйцам таежного сверчка — Locustella fasciolata, а не японской мухоловки.
К насиживанию самка приступает после откладки последнего, реже — предпоследнего яйца. Инкубационный период, судя по
наблюдениям за двумя пнездами, длится 11 дней. Самец в насиживании не участвует. Он изредка подкармливает самку, сидящую на кладке, однако не настолько часто, чтобы у нее не возникала необходимость оставлять гнездо в целях отыскивания пищи. Она делает это регулярно.
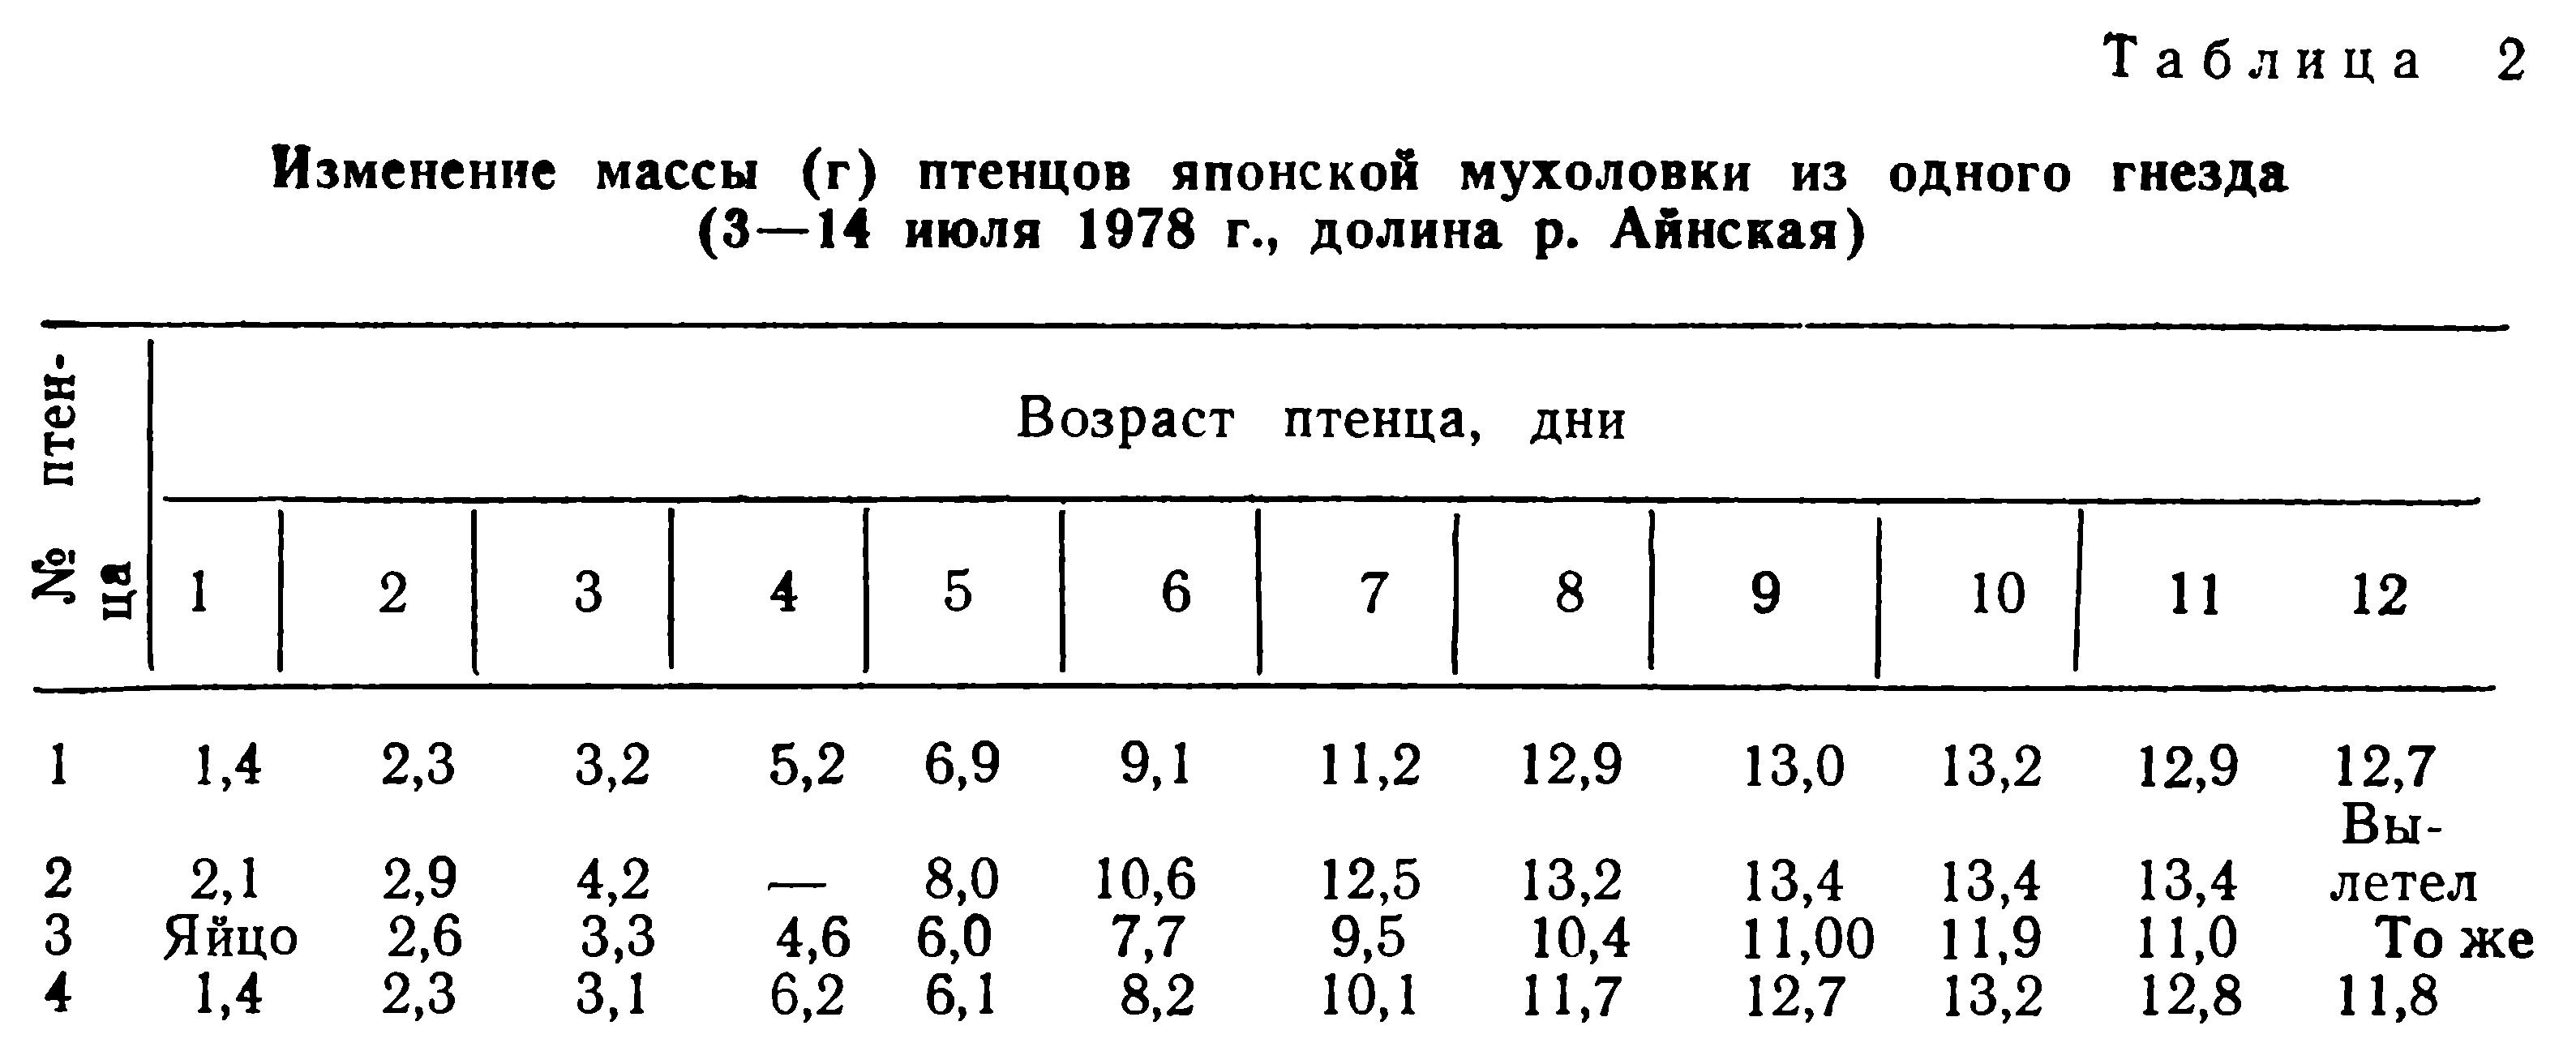
Птенцы появляются в течение суток. Описание пухового (наряда птенцов этого вида опубликовано нами ранее [Нечаев, 1983]. Изменение массы птенцов с первых и по 12-е сут их жизни продемонстрировано, на основе наблюдений Н.Н. Кудашовой, в табл. 2.
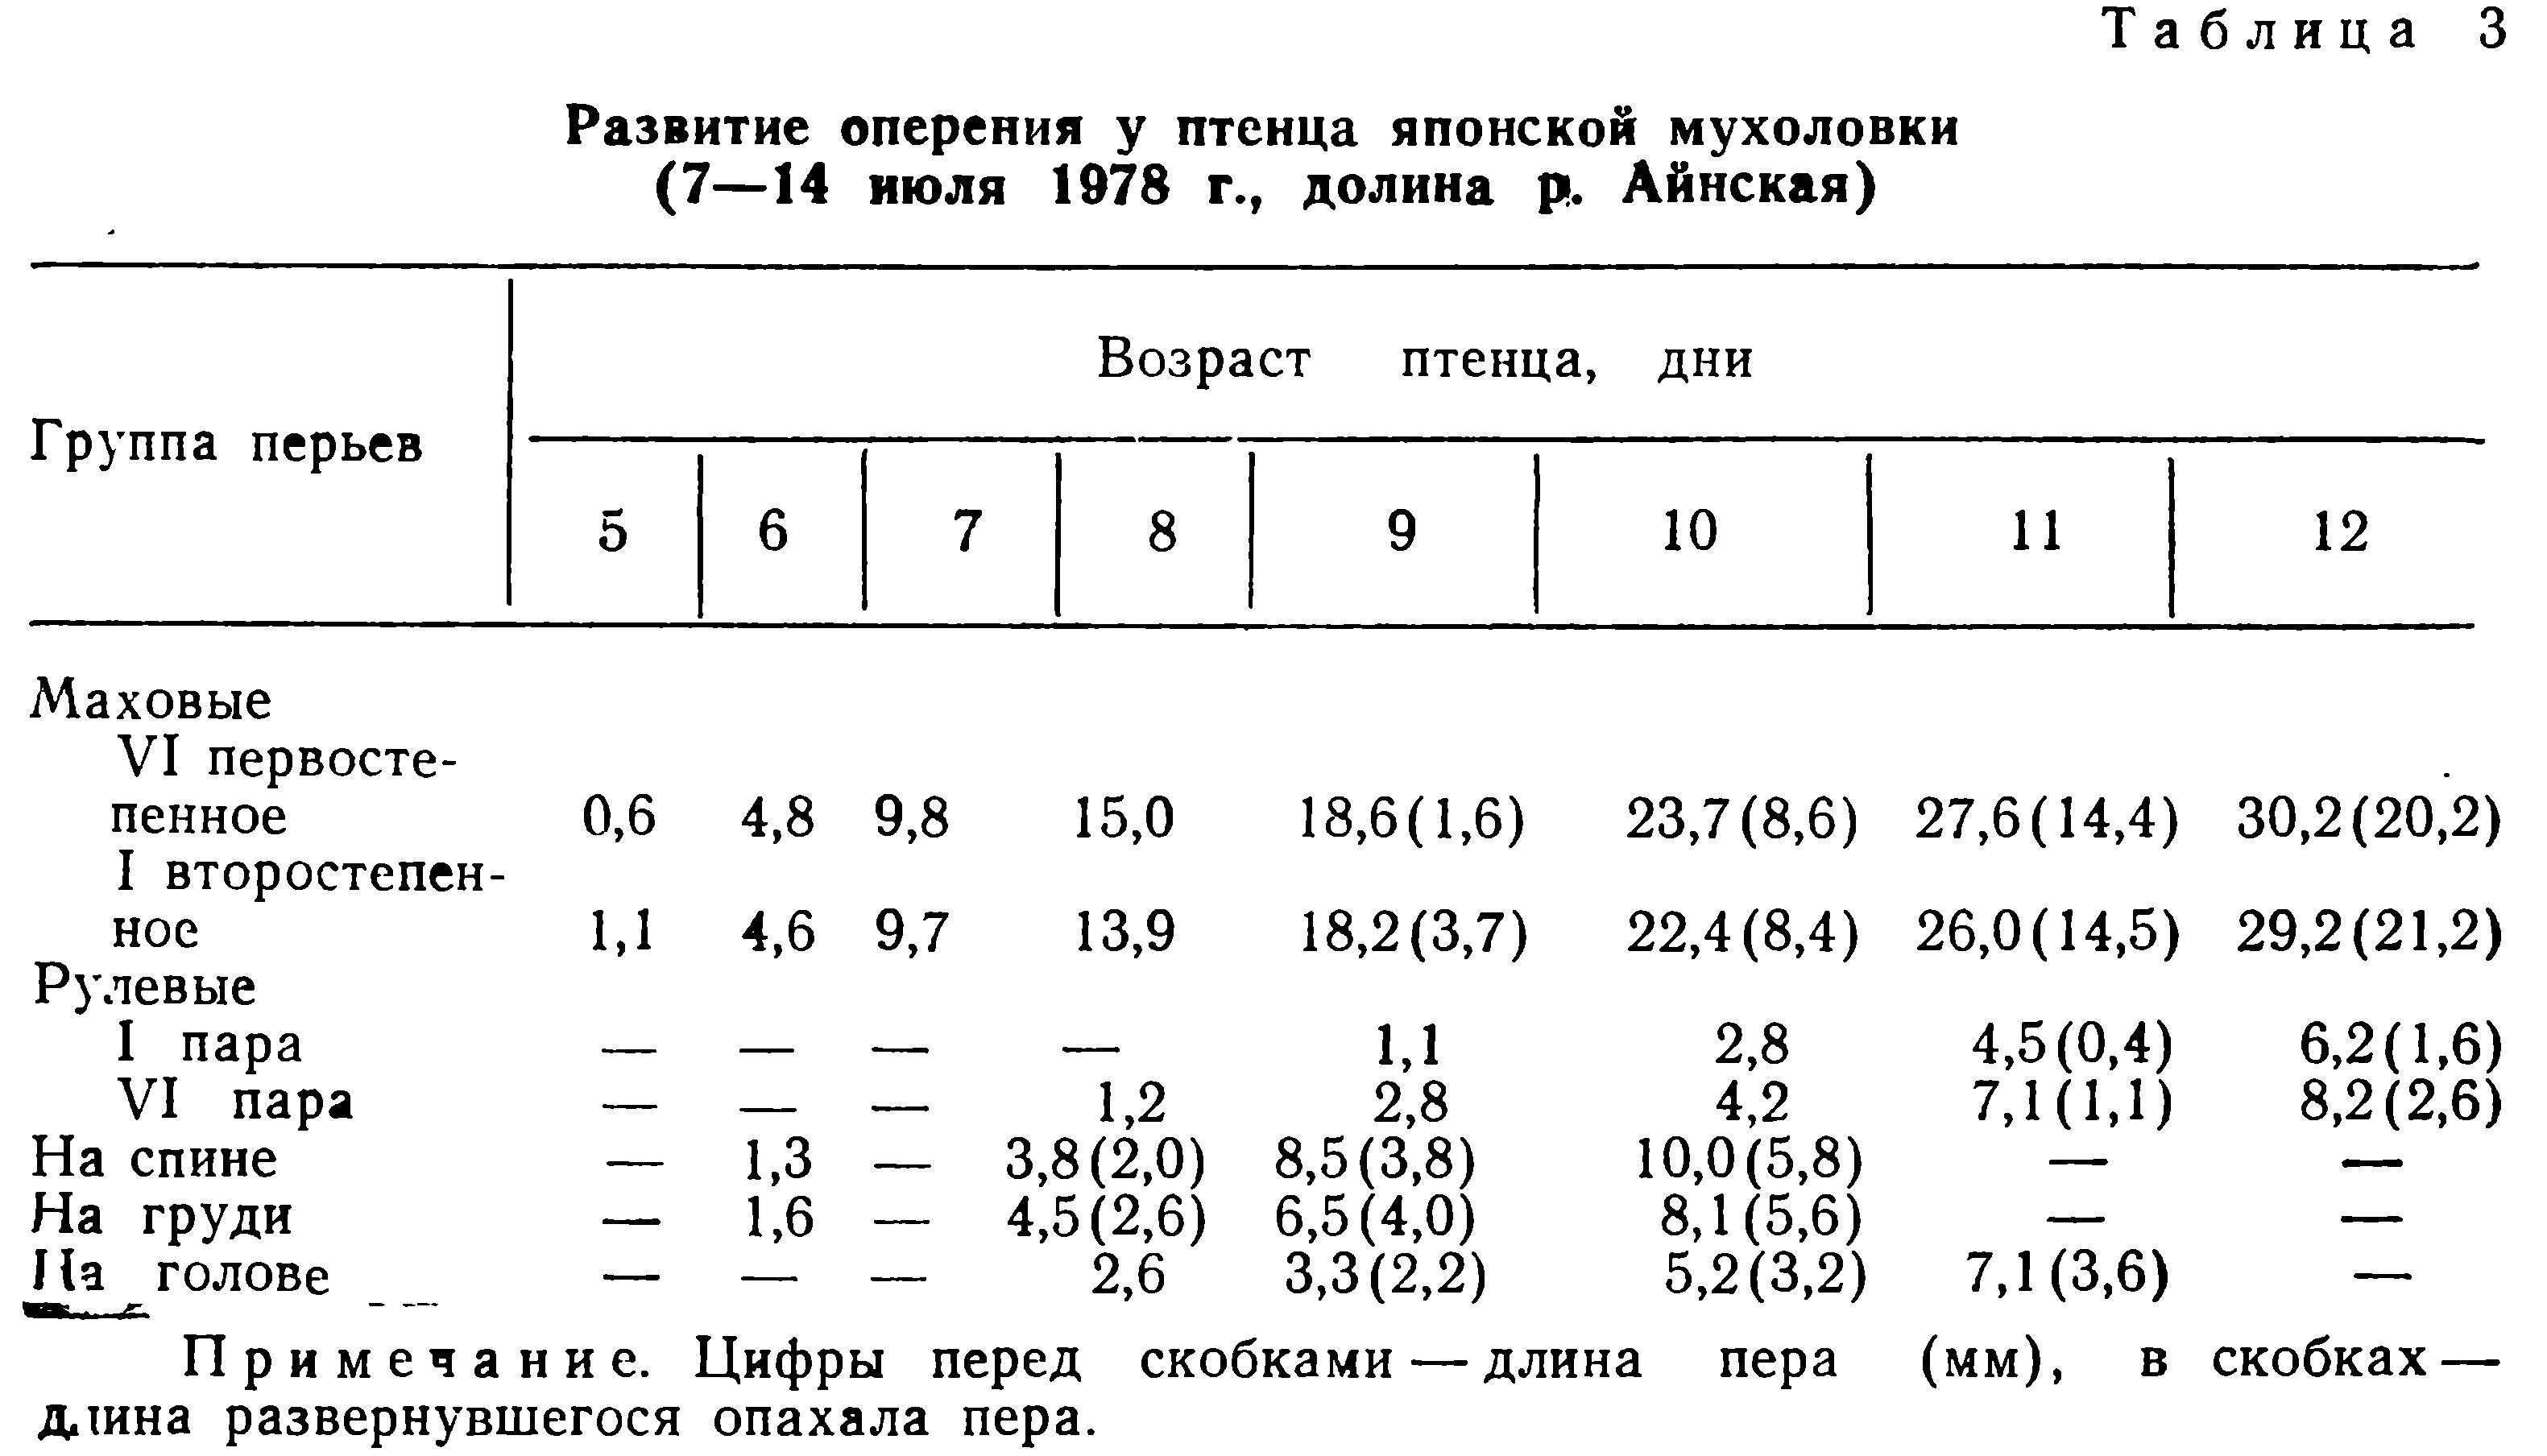
На 3-й сут у них прорезаются ушньие отверстия, на 5-е появляются пеньки маховых, а также перьев на плечах и предплечьях, на прочих птерилиях заметны лишь черные подкожные штрихи. Дальнейший рост некоторых групп перьев у птенцов представлен в табл. 3 (составлена Н.Н. Кудашовой). На 6-е сут веки начинают раскрываться, на 10-е — глаза полностью открыты. Клюв желтовато-белый с серым оттенком по гребню. На 12-е сут птенцы выскакивают из дупел.
В случае отсутствия фактора беспокойства птенцы находятся в гнезде 14—16 сут [Тамануки, 1942; наши наблюдения]. На вылете они отмечены 7 июля 1980 г., а первые слетки наблюдались 14 июля 1978 и 17 июля 1974 гг. Выводки с короткохвостыми слетками регистрировались нами 26 июля 1981 г., 1 августа 1974 г. и 3 августа 1977 г. Взрослые птицы с кормом отмечались 23 июля 1980, 27 июля 1977, 28 июля 1978, 1 августа 1977 и 12 августа 1980 гг. Таким образом, у отдельных пар гнездовой период продолжается до середины августа. В августе семьи распадаются, молодые и взрослые держатся одиночно или группами из 2—3 птиц. Иногда их можно наблюдать в смешанных стаях синиц, корольковых пеночек и ширококлювых мухоловок.
Отмечается значительная гибель гнезд японской мухоловки. Из 18 гнезд, находившихся под нашим наблюдением, лишь в 6 (30 %) птенцы благополучно вылетели. 5 пнезд было разорено в период откладки яиц и насиживания, 3 с законченными кладками были брошены, одно гнездо с птенцами было разорено, в одном случае взрослые птицы оставили гнездо в период его строительства. Основными врагами этого вида в наших условиях являются большеклювая и черная вороны. В одном случае птенцы были покусаны землеройкой-бурозубкой (гнездо находилось в 3 м от поверхности земли) и погибли.
Можно думать, что судьба найденных пнезд усугубилась тем, что они находились под наблюдением.
Линька, возрастные наряды. Гнездовой наряд у данного вида окончательно формируется через несколько дней после оставления птенцами гнезда. В этом наряде половой диморфизм не выражен. У птиц верхняя сторона головы и тела буровато-желтые с густыми черными пятнами на вершинах перьев; надхвостье буроватое, без пятен. На вершинах кроющих перьев крыла и по наружным краям темно-серых маховых выделяются желтовато-бурые каемки. Горло белое с редкими и слабо выраженными темными пятнами. Грудь и бока тела бледно-желтые с черными вершинами перьев, брюшко желтовато-белое. Рулевые серые с бурыми краями опахал. Надклювье светло-серое, подклювье желтоватое. Масса птиц в гнездовом наряде (n = 4):13,3; 13,6; 14,1 и 15,2 г. Длина, мм: крыла — 73, 74 и 75 (2 экз.), хвоста — 47, 48, 50 и 51.
Частичная линька из гнездового в первый осенний наряд, в ходе которой сменяются только мелкие контурные перья, начинается в последних числах июля — начале августа и заканчивается в первой половине сентября. У двух птиц, добытых 1 августа 1974 г. и 1 августа 1977 г., маховые и рулевые перья не достигли нормальной длины, а мелкое перо еще не обновлялось. Мухоловка от 3 августа 1974 г. была в свежем пере. В разгаре была линька у птиц от 17 августа 1974 и 26 августа 1972 г. У них на груди и спине появилось много новых перьев. В осеннем наряде у молодых голова серовато-зеленая; спина, кроющие маховых и поясница желтовато-зеленые; надхвостье бурое. Низ тела светло-желтый, на груди и боках тела заметны нерезкие серые пятна. Молодые птицы похожи на взрослых самок в осеннем наряде, но у них нижняя сторона тела более желтая, серые пятна на груди гуще и более заметны каемки на вершинах кроющих перьев маховых. В этом наряде самцы и самки, по-видимому, не различаются.
Масса трех птиц: 13,2; 14,3 и 15,0 г.
Длина: крыла — 73 (2 экз.) и 75, хвоста — 48 (2 экз.) и 49 мм.
На местах зимовок птицы-первогодки проходят частичную предбрачную линьку и приобретают комбинированный наряд, в котором самцы и самки хорошо различаются. Изучена окраска 9 самцов, добытых в мае—июне на о-ве Сахалин. У них маховые перья старые (от гнездового наряда), за исключением VII—IX (у двух птиц только IX) второстепенных, новых (отсчет первостепенных проводится от карпального сустава в дистальном направлении, второстепенных — в проксимальном, рулевых — от центра хвоста к краям). Рулевые перья у 5 самцов новые; у 2 — старые, из рогового чехла показалось только I перо на правой стороне хвоста; у 1 — I пара рулевых старая, остальные новые. У 1 самца отмечалась беспорядочная смена рулевых: на левой половине хвоста — I—IV и VI пары старые, V — новое; на правой — I—II — старые, III—VI — новые.
От двух генераций — мелкие кештурные перья. Так, у 2 самцов все оперение новое, за исключением нескольких старых перьев на затылке. У 4 —на верхней стороне головы и шее сохраняются перья от предыдущего наряда, желтая бровь короткая и заканчивается сразу за глазом, У 1 самца новых перьев мало: они располагаются на горле, зобе, верхней части груди, боках головы, лбу, передней части темени, пояснице, надхвостье, плечах и предплечьях; старые и новые перья растут вперемежку на затылке, шее и спине. Таким же пестрым выглядит и другой самец, но у него задняя часть спины и поясница не желтые, а заленовато-бурые; надхвостье — из старых коричневых и новых черных перьев. В комбинированном иаряде были и самцы, добытые 1 июня 1906 г. [Lonnberg, 1908] и 8 июня 1949 г. (сбор А.И. Гизенко, коллекция ЗИН АН СССР). У всех осмотренных самцов-первогодков четко обозначены такие видовые опознавательные признаки, как оранжевато-желтые брови, горло, грудь, задняя часть епшш и поясница (у большинства особей) и белые полоски на кроющих крыльях.
Масса самцов (n = 10):12,2-14,8 (13,6±0,2) г.
Длина крыла — 75-79 (77±0,4), хвоста — 47-56 (50±0,9) мм.
В комбинированном наряде первогодки успешно размножаются.
После завершения гнездового периода у них происходит полная линька и они надевают второй осенний наряд. В ходе этой линьки в первую очередь сменяются первостепенные и второстепенные (кроме VII—IX) маховые, затем мелкие покровные, внутренние второстепенные и некоторые рулевые перья. У самца, добытого 1 августа 1974 г., были перья трех нарядов: гнездового, первого осеннего и первого предбрачного. Сменялись первостепенные маховые: I — длиной 32 мм (кисточка 20), II — 23 (10) мм, III — пенек, 7 мм, IV — не менялось, V—X старые. Второстепенные и рулевые перья еще не линяли. Новые и растущие перья были на спине, груди и других участках тела. В отличие от самцов старше 2 лет у самцов в возрасте едва больше одного года низ тела желтый со слабым оранжевым оттенком.
Линька самок-первогодок не изучена. Птицы, заканчивающие линьку, наблюдались 28—30 августа 1974 г.
На местах зимовок у японских мухоловок протекает частичная предбрачная линька мелкого пера и, по-видимому, внутренних второстепенных маховых и некоторых рулевых перьев. На это указывает то, что весной у птиц, появившихся на местах размножения, мелкие контурные перья свежие; у самцов горло, брови и грудь желто-оранжевые, а на черных перьях головы выделяются зеленоватые каемки, тогда как маховые перья заметно обесцвечены и обношены.
Полная линька взрослых птиц начинается в конце июля, продолжается в течение августа и заканчивается в первой половине сентября. Самец, добытый 23 августа 1972 г., интенсивно линял. У него заканчивалась смена первостепенных от I к X: I—V были новые, VI—VII еще не достигли нормы, VIII—длиной 27 (кисточка 19) мм, IX — пенек, 8 мм, X — пенек, 5 мм. Второстепенные обновлялись от I к V и от IX к VI: I—III и VII—IX — новые, IV не доросло до нормы, V — 25 (кисточка 17), VI — 18 (8) мм. Рулевые еще не доросли; все перья имели роговые чехлики в основании. Подобное состояние линьки было у самца от 5 сентября 1972 г. У него I—VI — первостепенные новые, VII — не доросло, VIII — 44 (кисточка — 34) мм IX — 30 (20) мм, X — пенек, 5 мм; I и VIII—IX — второстепенные rioвые, II и VII — не доросли, III—33 (23), IV —28 (18) -мм, V и VI — пеньки, 10 и 2 мм. Рулевые перья, кроме двух наружных, не достигли нормальной длины. В линьке мелкие перья на горле, груди и спине. Интенсивно линяла самка от 28 августа 1972 г. У нее I—VI — первостепенные маховые новые, VII — не доросло, VIII — 25 (кисточка 15) мм, IX — пенек, 10 мм, X — старое; I и V—IX — второстепенные, новые, II — не доросло, III — длиной 20 (кисточка 8), IV — пенек, 2 мм. Все рулевые перья в росте, видимо, выпали одновременно. Новые перья и раскрывшиеся кисточки покрывали все тело.
Масса взрослых птиц: самцов (n = 15) — 13,3-16,5 (14,7±0,2), самки — 14,7 г.
Длина крыла: самцов (n = 13)— 76-82 (78±0,5); самок (n = 2) — 72 и 73 мм.
Длина хвоста: самцов (n = 13) — 48-56 (53±0,6), самок (n = 2) 47 мм.
Питание. Японские мухоловки охотятся на находящихся на субстрате и слабо летающих насекомых, а также на пауков. Сравнительно редко они ловят насекомых в воздухе на лету, подобно другим видам мухоловок. Во время поиска добычи птицы держатся чаще всего в нижних и средних, реже — в верхних частях древесных крон, нередко — на кустарниках и высоких травянистых растениях, изредка склёвывают добычу с поверхности почвы. Плоды бузины и других растений птицы срывают в трепещущем полете.
Весной и летом основная добыча японских мухоловок — насекомые, реже пауки. В содержимом 23 желудков взрослых птиц, добытых в мае-августе в различных районах о-ва Сахалин, обнаружены главным образом жуки — Coleoptera (Chrysomelidae—11 экз., Curculionidae — 3, Elateridae—1, Carabidae—1, Melandryidae — 3 экз. и др.) — 38 экз., 86,9 % встреч; двукрылые — Diptera (Muscidae — 2, Tipulidae — 3 и др.) — 13 экз., 30,4 % встреч; чешуекрылые (Lepidoptera), в основном гусеницы—17 экз., 30,4 % встреч; перепончатокрылые — Hymenoptera (Tenthredinidae — 7, Camponotus sp.— 1 и др.). — 10 экз., 30,4 % встреч; цикадки-пенницы (Aphrophoridae) — 10 экз., 21,7 % встреч; пауки (Aranei)—7 экз., 21,7 % встреч; многоножки (Chilopoda), сетчатокрылые (Neuroptera) и семена бузины — по 4,3 % встреч.
Жуки и цикадки-пенницы поедаются птицами чаще всего весной и в начале лета, чешуекрылые и двукрылые — летом. Иногда весной мухоловки кормятся в несвойственных им местах обитания: на лугах, болотах, в кустарниково-травянистых зарослях, вблизи строений и скал, на морском берегу. Так, 25 мая 1974 г. несколько раз наблюдались самцы, которые на приливнр-отливной полосе Японского моря ловили мух и мелких ракообразных (Amphipoda), образующих скопления на кучах водорослей и морской травы-взмор’ника, под камнями и бревнами.
В августе помимо насекомых мухоловки начинают поедать сочные плоды растений, главным образом плоды бузины сахалинской; в сентябре-начале октября эти плоды составляют до 80 % пищевого рациона. Желудки 2 птиц (28 сентября и 1 октября 1971 г.) содержали семена и оболочки плодов бузины (до 90 % объема содержимого) и остатки ос (Vespula sp.). У птицы, добытой 12 октября 1968 г. во время первого снегопада, обнаружены семена бузины (95 % объема содержимого) и мелкие остатки насекомых.
Молодые птицы питаются насекомыми, а в конце лета-осенью — плодами бузины. Желудки 5 мухоловок, добытых в августе, содержали остатки цикадок-пенниц (Aphrophora alpina) — 2 экз., долгоносиков — 4, в том числе Dorytomus sp.— 3, листоедов — 3, мух — 2, комара-долгоножку, перепончатокрылых — 6, имаго чешуекрылого и других насекомых (ближе не определены), а также семена бузины (в 2 желудках) — 14 экз.

Основная пища гнездовых птенцов — насекомые и пауки. В содержимом 87 порций, извлеченных из пищеводов птенцов 7-8-дневного возраста 8-12 июля 1978 г., обнаружены главным образом перепончатокрылые (личинки пилильщиков, крылатые формы муравьев-древоточцев и др.) — 59,7 % встреч, пауки — 43,6, чешуекрылые (в основном гусеницы) — 42,5 % встреч и жуки (табл. 4). Птенцы в гнезде, расположенном в тополево-ольхово-ивовом лесу, получали более разнообразную пищу из брюхоногих моллюсков, пауков и различных насекомых, чем в лиственничном лесу, где они питались пауками и гусеницами чешуекрылых. В порциях пищи содержалось от 1 до 8, чаще 3-5 пищевых компонентов. Крупные насекомые (жуки, имаго чешуекрылых) были представлены, как правило, по 1-2 экз. Масса порций колебалась от 10 до 355 мг и в среднем составляла 103,8±7,5 мг. Наблюдения за интенсивностью выкармливания
7-дневных птенцов (9 июля 1978 г.) показали, что в течение светлого времени суток наиболее активно родители кормили их в первую половину дня, с 8 до 14 ч, и вечером, с 16 до 21 ч. За 14 ч наблюдений самец приносил пищу 87, самка — 79 раз. Вместе они прилетали в гнездо 166 раз.
ЛИТЕРАТУРА
• Благосклонов К.Н. Семейство Мухоловковые — Muscicapidae.— В кн.: Птицы Советского Союза. М.: Сов. наука, 1954, т. 6, с. 73—126.
• Гизенко А.И. Птицы Сахалинской области. М.: Изд-во АН СССР, 1955. 327 с.
• Нечаев В.А. Птицы Южных Курильских островов. Л.: Наука, 1969. 246 с.
• Нечаев В.А. Новые сведения о пуховых птенцах воробьиных птиц.— Тр. ЗИН АН СССР, 1983, т. 116, с. 58—60.
• Никольский A.M. Остров Сахалин и его фауна позвоночных животных.— В кн.: Приложение к 9-му тому Записок императорской Академии наук. СПб., 1889, т. 9, ЛЬ 5. 334 с.
• Тамануки К. Заметки о птицах.— Карафуто сенринкай, Кайхо, 1942, № 53, с. 112—118 (на яп. яз.).
• Lonnberg E. Contributions to the ornis of Saghalin.— J. Coll. Sci., Imp. univer. Tokyo, 1908, v. 23, art. 14, p. 1—69.
• Munsterhjelm L. Some ornithological notes from a journey to Saghalien in 1914.— In.: Meddelanden fran Gotteborgs Musei Zoologiska Avdelning. Goteborg. 1922, N 13, p. 1—112.
• Yamashina Y. Notes on a collection of birds from southern Sakhalin (I). Tori, 1927, v. 5, N 24, p. 333—364.
Биолого-почвенный институт ДВНЦ АН СССР, Владивосток
Источник
ФАУНИСТИКА И БИОЛОГИЯ ПТИЦ ЮГА ДАЛЬНЕГО ВОСТОКА. СБОРНИК НАУЧНЫХ ТРУДОВ. 1984 г., стр. 87-95.