
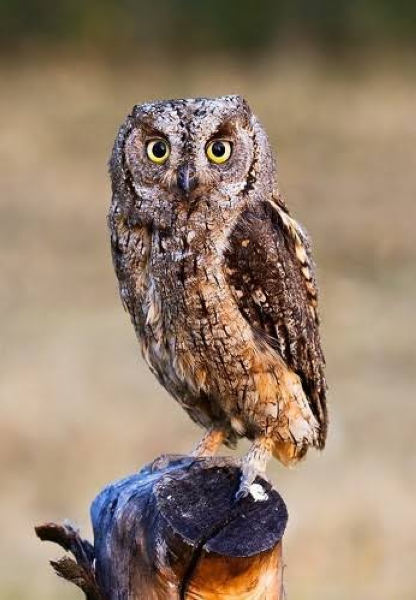
Семейство: Совиные Strigidae
Род: Совки Otus
Вид: Otus scops (Linnaeus, C 1758)
Протоним: Strix Scops.
Синоним: Otus scops, Otus scops [scops Group], Otus scops [scops], Otus scops scops, Scops ephialtes, Scops strauchi, Strix Scops.
Немецкое название: Zwergohreule
Испанское название: Autillo europeo.
Казахское название: Маубас жапалақ, маубас жапалақша, ұйқышыл қоңыр көбелек
Украинское название: Совка.
Другие названия: зорька, совка-сплюшка, обыкновенная совка.
Taxonomic Serial Number : 555376 | Global Biodiversity Information Facility : 4B8JH.
Список ПОДВИДОВ вида Сплюшка Otus scops (Linnaeus, 1758)
‐ Европейская сплюшка — Otus scops scops (Linnaeus, C 1758)
‐ Сибирская сплюшка — Otus scops pulchellus (Pallas, PS 1771)
ОСНОВНОЕ ОПИСАНИЕ ПО: . —
Очень велика индивидуальная изменчивость окраски, особенно по степени развития рыжеватого оттенка, крайние варианты окраски выражены в двух морфах. Для сибирской сплюшки Otus scops pulchellus особи с рыжей окраской не известны.
Пуховой птенец. Покрыт густым длинным белым пухом, на спине и брюхе просвечивает розовато-красная кожа. Клюв серовато-розовый с белым яйцевым зубом. Пальцы красновато-телесного цвета, когти серые. Веки сомкнуты, слуховые проходы закрыты. В Таджикистане изредка встречаются пуховые птенцы пепельного цвета (Абдусалямов, 1971). Мезоптиль отличается от наряда взрослых птиц более светлой окраской, брюшная сторона и грудь поперечно-полосатые, тёмные наствольные пятна слабо развиты. Ювенильный наряд очень похож на наряд взрослой птицы, отличается свежестью оперения, более короткими крыльями и хвостом, наличием остатков роговых чехликов на нижней стороне маховых и рулевых перьев, остатками пуха на спине и голове.
Строение и размеры. Первостепенных маховых 11, первое рудиментарное и скрыто под кроющими. Формула крыла: III-II-IV-V-I-VI. На наружном опахале II и III первостепенных маховых имеются вырезки. Рулевых 12.
длина крыла самцов 140–163 (в среднем 155), самок 146–165 (в среднем 158);
длина клюва самцов 14,4–17,1 (в среднем 16,0), самок 15–17,3 (в среднем 17);
длина цевки самцов 25,4–29,5 (в среднем 28), самок 25–30,8 (в среднем 29,2);
длина хвоста 60–80 (коллекция ЗИК РАН).
Масса самцов 60–125 граммов (в среднем 100), самок 64–135 (в среднем 110).
Масса довольно сильно изменяется по сезонам: весной 60–118 граммов, летом 80–91, осенью и зимой 100–135 (Smith, 1966; Glutz von Blotzheim, Bauer, 1980).
Половой диморфизм выражен очень слабо в общих размерах тела.
Размеры Otus scops pulchellus незначительно отличаются от размеров О. s. scops, достоверные различия отсутствуют (коллекция ЗИН РАН, по 10 экземпляров каждого пола).
Подвидовая систематика. В настоящее время выделяют пять подвидов (некоторые исследователи даже шесть), из которых территорию России и сопредельных регионов населяют два подвида.
— Otus scops scops — Strix scops Linnaeus, 1758, Syst. Nat., ed. 10; p. 92. Италия. Общая окраска буровато-серая; темнее, чем у Otus scops pulchellus, с ржавчатым оттенком особенно на спинной стороне тела; тёмный рисунок спины менее контрастирует с основным фоном. Беловатые пестрины на затылке и плечах менее развиты. Степень насыщенности ржавчатого оттенка на спине значительно варьирует — от светлой до тёмной тональности (Степанян, 1975).
— Otus scops pulchellus — Strix pulchella Pallas, 1771, Reise der versch. Prov. Russ. Reichs, 1, S. 456, Нижняя Волга, Нижний Урал. Общая окраска тела бледнее и серее, менее бурая, ржавчатый оттенок развит слабо или почти отсутствует. Тёмный рисунок на спине выражен более контрастно, беловатые пестрины на затылке и плечах более развиты. Индивидуальная изменчивость окраски выражена слабее.
Замечания по систематике. Существующие подвиды выделяются на основе различий в окраске основного фона оперения, степени развития рыжих оттенков (особенно на спинной стороне), в развитии тёмного рисунка и беловатых пятен на спинной стороне, а также в размерах. Индивидуальная изменчивость значительная и в ряде случаев перекрывает географические различия. Экологические различия сводятся к разной степени оседлости (от перелётных до, полностью оседлых популяций на юге ареала) и особенностям размножения.
Большинство зарубежных исследователей объединяет Otus sunia и Otus scops в один вид Otus sunia со множеством островных подвидов; не выделяют Otus scops в самостоятельный политипический вид, а придают ему ранг подвида (Peters, 1940; Sparks, Soper, 1970; Burton, 1973; Eck, Busse, 1973). Однако имеющиеся данные свидетельствуют об их видовой самостоятельности (Дементьев, 1951; Степанян, 1975; Пукинский, 1977).
Для Otus scops некоторые исследователи выделяют подвид Otus scops turanicus Loudon, 1905, обитающий в Северном Иране, Армении, Бухарской области и на юге Туркмении, но отрицают существование подвида Otus scops mallorcae (Burton, 1973). Однако большинство данных подтверждают правильность сведения Otus scops turanicus в подвид Otus scops pulchellus и неправомочность включения Otus scops mallorcae в номинальный подвид Otus scops scops.
Суточная активность, поведение. Обыкновенные сплюшки активны в тёмное время суток, но в период размножения их брачные крики раздаются и днем. Выделяется два пика кормовой активности: вечерний и утренний, в тёмные безлунные ночи активность резко падает или полностью прекращается. В период выкармливания птенцов частота приноса им пищи меняется в разные часы. Первый прилёт отмечается в июле в 20 часов 23-40 минут, последний — в 4 часа 15–50 минут. Период кормления составляет в среднем 6 часов. За это время оба родителя приносят пищу 76–105 раз, в среднем 91 раз. Максимальное количество прилётов зарегистрировано вечером (22 раза/ч), минимальное — ночью (9 раз/ч), утром — 15 раз/ч. Интервал между кормлениями составил вечером 0,5–18 (в среднем 3 минуты), ночью 0,5–35 (в среднем 8 минут), утром 0,5–30 (в среднем 4 минуты). За один прилёт приносится обычно одна жертва (Терновский, Терновская, 1959), Вне периода гнездования молодые сплюшки держатся поодиночке, взрослые, во всяком случае часть — парами. Возможно, часть птиц отлетают нераспавшимися парами и на зимовки. На зимовках держатся поодиночке.
Спят сплюшки в дневное время, прячась в укрытиях (дуплах, скворечниках, древесных нишах, расщелинах скал, в гуще ветвей). Спящая птица прикрывает глаза, прижимает «ушки» к голове, нахохливается, клюв упирает в оперение груди. По-видимому, в природе сплюшки нередко купаются под дождём, возможно в лужах и ручьях. В неволе они делают это регулярно и очень охотно (Хроков, Кошелев, 1985). В начале они мочат голову, затем заходят в воду и замачивают ноги, погружаются целиком в воду (кроме головы), плещут крыльями и промокают полностью, так что не способны летать, затем обсыхают в течение нескольких часов.
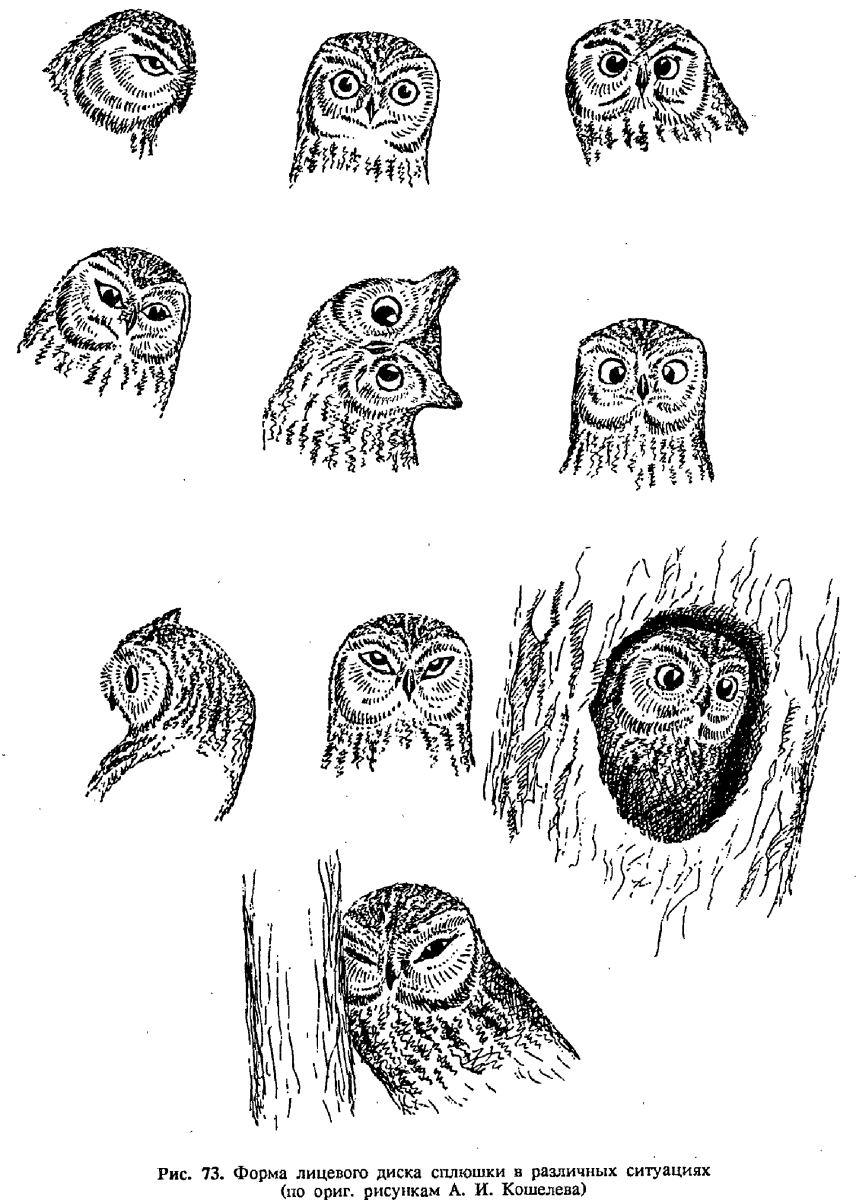

Враги, неблагоприятные факторы. От многочисленных врагов с плюшка спасается днем в укрытиях, где затаивается. Ночью становится жертвой таких крупных сов, как филин, ушастая сова и неясыти, а в Западной Европе и домовый сыч. Гнёзда сплюшек разоряются сороками, крупными куньими, реже воронами, а вблизи сел подростками, которые нередко забирают и выращивают в неволе птенцов. В Узбекистане острые конкурентные отношения из-за мест гнездования возникают с майной (Acridotheres tristis). Часто сплюшки не выдерживают постоянных нападений майны и бросают кладку. Из пяти контрольных кладок по этой причине погибло четыре (80%) (Салихбаев и др., 1970). В Казахстане отмечались случаи столкновения сплюшек из-за нор с сизоворонками (Coracias garrulus) и из-за дупел с обыкновенными скворцами (Sturnus vulgaris) и сизоворонками, причём сплюшка успешно изгоняет скворцов, но уступает сизоворонкам (Шнитников, 1949; Гаврин, 1962). Взрослые сплюшки гибнут весной в горах при внезапных похолоданиях и обильном снегопаде, осенью — от голода и снегопадов (Ковшарь, 1966). Известны случаи гибели пролётных сплюшек ранней весной от заморозков, например 1 мая 1984 года (Дементьев, 1951).
Во время перелётов часть совок гибнет при столкновении на шоссе с автомобилями (ослеплённые светом фар), часть налетает и разбивается о провода НЭП (Ковшарь, 1966), разбивается о стекла маяков и телевизионные башни (Lovassy, 1927). В гнездовое время при неблагоприятной кормовой ситуации (похолодание, затяжные дожди) самка иногда убивает младшего птенца и скармливает его старшим, то есть имеет место каннибализм, характерный для крупных сов и дневных хищных птиц (Приклонский, 1958; Кадочников, 1963). Сокращение численности сплюшек на Украине, в Приднепровье, связано со строительством каскада водохранилищ, сокращением площади лесов (Колесников, 1965, 1979). По данным кольцевания, в природе сплюшки живут до 6 лет, а в неволе — до 12,5 (Хроков, Кошелев, 1985) (Glutz von Blotzheim, Bauer, 1980).
Хозяйственное значение, охрана. Несомненно полезная птица, уничтожает большое количество насекомых и мышевидных грызунов в лесах и садах. Доля полезных насекомых и насекомоядных птиц в её рационе незначительна. Как немногочисленный вид нуждается во многих районах для привлечения на гнездовье в развесках искусственных дуплянок-скворечников с диаметром летка 5–8 см. В Алма-Ате охотно в них селится. Учитывая, что птенцы-слётки плохо летают первое время, необходимо устанавливать скворечники на деревьях, под которыми растут густые кусты, где птенцы спасаются от многочисленных бродячих кошек и собак (Бородихин, 1968). Следует отметить, что в Средней Азии и Западной Европе сплюшка стала настоящей синантропной птицей. Заслуживает внимания эстетическое значение этой совки, песня которой оживляет лес, городские парки и скверы. Специальных мер охраны обыкновенной с плюшки не предусмотрено.
За Уральским хребтом граница проходит у Тюмени, до 56° северной широты, Томска, село Шегарки, Кривощеино, Красноярска (Гынгазов, Миловидов, 1977), до Ангары и нижнего течения Чикоя. Южная граница совпадает с государственной границей бывшего СССР. Гнездится во всем Копетдаге и смежных районах, где по предгорьям проходит граница ареала (Мишенко, 1982). В Туркмении населяет также центральные и восточные горные районы, Кугитанг, долины Мургаба и Амударьи в предгорьях, Большие Балханы (Дементьев, 1952). В Киргизии редка, на гнездовании была обнаружена только в городе Фрунзе (ныне Бишкек) (Янушевич и др., 1960). В Таджикистане гнездится в горах до высоты 1 000 — 2 500 метров над уровнем моря, в садах и лесах Зеравшанского, Гиссарского, Туркестанского хребтов, в хребтах Нуратау, Каратау до 2 300 — 2 500 метров над уровнем моря, в районе Хорога, в бассейне Кашкадарьи (Иванов, 1969; Абдусалямов, 1971).
В Казахстане распространена крайне неравномерно и спорадично, встречается в северных и центральных частях, в восточных и юго-восточных районах от Семипалатинска, Юго-Западного Алтая до Тарбагатая, в Джунгарском Алатау, в Заилийском Алатау, Прибалхашье, Каратау, верховьях Сырдарьи, в садах и парках Алма-Аты, Джамбула, Чимкента, в сёлах и кишлаках. Полностью отсутствует на огромных пространствах арало-каспийских пустынь, в Бетпак-Дале и Кызылкумах (Шнитников, 1949; Гаврин, 1962); Восточнее область распространения проходит по государственной границе до Юго-Западного Забайкалья (Измайлов, Боровицкая, 1973). Обнаружена у Кяхты, у мыса Рытый озера Байкала, на.реке Темник, берегах реки Джиды (кол. ЗИН РАН). На европейской территории встречается неравномерно. Малочисленна в Чёрноземном центре (Барабаш-Никифоров, Семаго, 1963), спорадична в лесах Приднепровья, Молдавии, Крыма, в Карпатах, Полесье и Волыно-Подолье (Колесников, 1965, 1979; Щеголев, 1976), на Кавказе (Беме, 1958; Жордания, 1962). Граница между двумя подвидами проходит по долине Урала и южным частям Тянь-Шаня, существует широкая зона перекрывания их гнездовых областей (рис. 71, 72).


Исторические изменения ареала прослежены недостаточно. Отмечается расширение ареала на европейской территории в северо-восточном направлении в последние десятилетия (Пукинский, 1977). В Марийской республике численность обыкновенной сплюшки несколько возросла после сильных пожаров 1920 года (Кулаева, 1977).
Численность. Обычна на Кавказе, Украине, в Молдавии, немногочисленна в Белоруссии, Крыму, средней полосе России, Западной Сибири, Казахстане. На Украине в лесах Приднепровья в 1954 году плотность достигала 0,02 ос./100 га, в 1964, году — только 0,01 ос./100 га (в Комиссаровских лесах — до 0,8) (Колесников, 1965, 1979). В Чернозёмной зоне России гнездится в ольшанниках, борах, смешанных лесах, парках и лесополосах с плотностью 0,01 пар/100 га, в байрачных лесах — 0,001; в сёлах и осиновых лесах не обнаружена (Щеголев, 1976). На территории Латвии встречается единично (Граубиц, 1983).
Численность в северных областях России резко меняется по годам: в Псковской области в большие ловушки в 1958–1968 годах было отловлено 14 сплюшек, в том числе в 1960 году — 10, в 1961–1963 и в 1968 — по 1 (Мешков, Урядова, 1972). Редка в горном Алтае. В Алма-Ате численность непостоянна: в парке ежегодно гнездится 7–8 пар (Бородихин, 1968), в Ботаническом саду — 11 пар на 107 га; всего в городе — около 500 особей (Хроков, Кошелев, 1985). В 1980 году в дикоплодовых лесах в Каратау на площади 100 га учтено 15, а в Джунгарском Алатау — 7 сплюшек. В пихтовых лесах Рудного Алтая пара от пары встречается на расстоянии более одного километра (Хроков, Кошелев, 1985). В Туркмении немногочисленна в горных лесах Копетдага, где во всех обследованных местах было обнаружено не более чем по 1–2 пары (Мищенко, 1982). В Таджикистане обычна в оптимальных биотопах, но распространена пятнисто. В Узбекистане в ущельях хребта Нуратау многочисленна, в гнездовое время на маршруте протяжённостью 3 км насчитывается до 12 особей, в горных садах — до одной пары на 3,3 га (Салихбаев и др., 1970). В Таласском Алатау на гнездовье редка, обычна на осеннем пролёте; численность резко колеблется по годам: сплюшек было очень много в 1959 году, средняя численность — в 1963 и 1964 годах, очень, мало в 1962 и совсем не было в 1960 году (Ковшарь, 1966).
В Казахстане и лесостепи населяет берёзово-осиновые колки, сосновые и берёзово-сосновые леса, негустые смешанные и лиственные боры, кустарниковые острова со старыми дуплистами деревьями (Хроков, Кошелев, 1985). В горах обитает в яблоневых садах, даже в безлесых долинах и ущельях, склоны которых покрыты кустарниками. В долинах южных рек встречается в лиственных тугаях с преобладанием ясеня, в долине реки Урал предпочитает урему с преобладанием тополя и ив. В культурном ландшафте заселяет старые парки, сады, зелёные насаждения вдоль улиц, дорог и арыков (Гаврин, 1962; Бородихин, 1968).
В горах Средней Азии селится в горных яблоневых лесах по ущельям, в арчевниках, лиственных лесах, садах кишлаков, ореховых и тутовниковых, фисташковых лесах (Потапов, 1959; Янушевич и др., 1960; Иванов, 1969; Абдусалямов, 1971). В Туркмении гнездится также в горных посёлках, арчевниках, широколиственных лесах. На пролёте встречается в лесах различного типа, в кустарниковых зарослях на равнине и в горах, даже в пустыне. В горах встречается до высоты 1 500 — 2 500 метров над уровнем моря. На зимовках обитает в саванных и тропических дождевых лесах (Smith. 1966).
Птенцов выкармливает преимущественно насекомыми. В пищевых пробах обнаружены бабочки, жуки, крупные пауки (Кадочников, 1963). При нехватке пищи в холодные ночи приносит мелких птиц (Parus major), мышевидных грызунов. В Окском заповеднике птенцов выкармливали насекомыми 18 видов (крупными жуками, такими как навозник, чёрный усач, кожевники, майские жуки, щелкуны; стрекозами, медведками), мелкими птицами (дрозд-белобровик (Turdus iliacus), обыкновенная овсянка (Emberiza citrinella), щегол (Carduelis carduelis), лесной конёк (Anlhus trivialis), мухоловка-пеструшка (Muscicapa hypoleuca)), лягушками. Мышевидных грызунов, несмотря на их высокую численность в 1954 году, не ловили (Приклонский, 1958). В Крыму под гнездом были обнаружены надкрылья крупных жуков, в желудке у взрослой птицы — крупные голые гусеницы и 1 экземпляр краснотела-инквизитора (Костин, 1983). На юге Западной Сибири в корме для птенцов оказались (по 94 экз. жертв): стрекозы — 2,1 %, кузнечики — 54,4, жуки — 5,3, чешуекрылые — 33, пауки —3,2 %; за сутки каждый птенец получал в среднем 30 порций массой около 20 граммов, что составляло до 30 % его массы.
За период выкармливания одна пара сплюшек приносит свыше 2 000 насекомых. Взрослые птицы дважды поедали мелких птиц, а также насекомых (Терновский, Терновская, 1959). В Таджикистане у взрослых птиц в желудках были обнаружены исключительно остатки насекомых (Попов, 1959; Абдусалямов, 1971), в долине Зеравшана в 23 погадках обнаружены жуки-навозники (20 экземпляров), кузнечики (43), остатки других жуков (96) (Сагитов и др., 1979). В Казахстане в желудках обнаружены остатки уховёрток (Anechura asiatica). жуков и прямокрылых, саранчовые.(в основном кобылки), растительные остатки (Ковшарь, 1966). На Алтае в погадках и желудках выявлены исключительно одни насекомые, главным образом кузнечики (Кучин,. 1967, 1976). При содержании в неволе сплюшки охотно поедают сочные ягоды (клубнику, малину, крыжовник и др.), виноград, яблоки и мякоть арбуза; возможно, используют их и в природе. Охотно едят листья салата. Непосредственные наблюдения показывают, что нередко ловит и поедает дождевых червей, различных голых гусениц (Хроков, Кошелев, 1985).
Партнёры очень привязаны друг к другу и держатся вместе вплоть до отлёта, возможно и на пролёте. Образование пар происходит на местах гнездования. Первыми прилетают самцы, которые занимают гнездовые участки, начинают петь привлекая самок, самки прибывают через несколько дней. Интенсивность пения составляет 20–27 сигналов в минуту. Самец издаёт крики сидя на суку, реже в полете. После образования пары песня выполняет не только брачную функцию, но является звуковым маркером занятности территории и связующим элементом в паре. Прекращают с плюшки петь в Алма-Ате в августе, в Таджикистане — в конце июля—начале августа, незадолго до отлёта (Бородихин, 1968; Абдусалямов, 1971). В Западной Европе известны случаи полигамии, когда на гнездовом участке одного самца выводят птенцов две самки. При этом соседние гнезда располагаются всего в 8–10 м друг от друга. При высокой численности в оптимальных местообитаниях плотность гнездования во Франции достигает 1,8-2,3, до 5 пар/100 га, в Чехословакии — 12 пар/150 км2 и 44 пары/60,5 км2, в Румынии и Югославии при «колониальном» гнездовании — 5 пар/10 га и 10 пар/12 га в парках (Glutz von Blotzheim, Bauer, 1980).
На местах гнездования сплюшки появляются сравнительно поздно, с наступлением устойчивого тепла и переходом среднесуточной температуры через 10–12° С. Время прилёта определяется местными погодными условиями, на Алтае оно совпадает со временем массового лета майских хрущей (Кучин, 1976). В северных областях появляется на 2–3 недели позднее, чем в южных. В горах Средней Азии также отмечается на 1–2 нед позднее, чем на равнине. Для гнездования предпочитает разреженные леса, опушки, лесные поляны и прогалины. Каждая пара обитает на постоянном гнездовом участке, где располагается гнездо и собирается корм. Подмечено, что даже при низкой численности соседние пары стремятся гнездиться на расстоянии, позволяющем поддерживать между ними звуковой контакт.
Гнездовые пары очень консервативны и постоянно из года в год возвращаются в одно и то же дупло. Удивительное постоянство к месту гнездования отмечено под Алма-Атой, где пара сплюшек в течение 14 лет подряд выводила по 4–6 птенцов на чердаке дачи (Хроков, Кошелев, 1985). Границы гнездового участка строго охраняются от других совок (Салихбаев и др., 1970), самец преследует нарушителей в полете, нападает и бьёт в воздухе лапами. Картина брачных игр не изучена. В неволе партнёры часто перебирают друг другу оперение на зашейке, возможно это один из элементов брачного ритуала. Копуляция происходит вне дупла на суку, во время откладки яиц она наблюдается до 7–10 раз за ночь, максимально в вечерние часы, её продолжительность 2–3 секунды.
Гнездо сплюшки устраивают в хорошо укрытых местах: естественных дуплах, дуплах дятлов, скворечниках, в норах сизоворонок, расщелинах и нишах скат, в старых гнёздах сорок и хищных птиц, реже в постройках человека (за обшивкой стен), в Старых гнёздах скалистых поползней (Sitta tephronota) (Зарудный, 1896; Потапов, 1959; Абдусалямов, 1971; и др.). В Прикуринской низменности гнезда сплюшки были обнаружены в дуплах (4), в норах глинистых обрывов (1), развалинах строений (1), в старом сорочьем (1) и вороньем (1) гнёздах (Мустафаев, 1963). В Казахстане в горах Бостандыка найдено открытое гнездо в развилке ствола ореха на высоте 2 м, яйца лежали на скудной подстилке из сухих стеблей трав и перьев (Корелов, 1956). При выборе места для гнезда порода дерева значения не имеет, высота расположения гнезда составляет 1,5–8 м и более.
Предпочитаются места с густыми зарослями кустов высотой 2–3 м, в том числе колючих кустов шиповника и боярышника. В дуплах и скворечниках гнездо как таковое отсутствует, подстилкой служат остатки старых гнёзд воробьиных птиц-дуплогнездников, или же яйца откладываются на древесную труху. Сведения о том, что сплюшки могут строить гнезда самостоятельно, наподобие горлиц, на ветках деревьев или перестраивать старые сорочьи гнезда (Зарудный, 1896; Шнитников, 1949), документально не подтверждены и нуждаются в проверке; гнездостроение для совок не характерно. Сплюшки предпочитают небольшие дупла диаметром 18–20 см и глубиной 40–80 см, с летком диаметром 8–16 гм, охотно занимают дупла желны (Dryocopus marus). В Казахстане известно гнездо- ямка в стекловате на чердаке дачи (Хроков, Кошелев, 1985).
Откладка яиц на европейской территории начинается в конце апреля — начале мая. В Белоруссии кладки обнаружены в конце мая — июне, до 10 июля (Аверин, Ганя, 1970; Федюшин, Долбик, 1967). В Подмосковье — с 22 мая по 5 июня, в Псковской области — в начале июня, в Окском заповеднике — в начале июня (Приклонский, 1958; Птушенко, Иноземцев, 1968; Зиновьев, 1980), в Крыму — в середине июня (Костин, 1983). На юге Западной Сибири и Алтае откладка проходит в мае — июне, самки с готовыми к сносу яйцами добывались 2–30 мая, свежая кладка найдена 14 июня (Кучин, 1976; Гынгазов, Миловидов, 1977; Смехова, 1979). В Казахстане в южных районах откладка яиц начинается в первой половине мая, в массе идёт в конце мая и заканчивается во второй половине июня, в Алма-Ате — в конце мая—первой половине июня, до 30 июня (Шнитников, 1949; Гаврин, 1962), характерен крайне растянутый цикл размножения даже в одном месте. В Туркмении яйцекладки проходят в последней декаде мая — 22–29 мая (Зарудный, 1896); в Узбекистане, в горах Нуратау — с начала и до конца мая (Салихбаев и др., 1970); в Таджикистане — с конца апреля и до конца июня (Иванов, 1969; Абдусалямов, 1971).
Нормально — одна кладка в году, но при её потере в начале инкубации птицы могут отложить повторную кладку. Интервал между откладкой яиц 24 часа, реже 48–72 часов (Glutz von Blotzheim, Bauer, 1980). Полная кладка состоит: из 4–5 яиц (Аверин, Ганя, 1970); из 3–4, редко 5 (Приклонский, 1958; Костин, 1983); из 4–6 (Кучин, 1976; Смехова, 1979); в Казахстане — из 2–6, в среднем 4,1 (n = 9) (Гаврин, 1962), в Туркмении — из 3–6, чаще 4 (Зарудный, 1896); в Узбекистане в долине Зеравшана — из 3–5 (Сагитов и др., 1979), в горах Нуратау — из 4–6 (Салихбаев и др., 1970), в Таджикистане — из 4–5 (Потапов, 1959; Иванов, 1969; Абдусалямов, 1971). По форме яйца тупо овальные или эллипсоидные, скорлупа мелкозернистая, чисто-белая с блеском, заметно усиливающимся по мере насиживания.
в Белоруссии 31,5 × 26;
в горном Алтае 25,5-28,5 × 23,5-24,0 (Смехова, 1979);
в Казахстане 27,5-31 × 25-27,5 (в среднем 30,5 × 26,5) (Гаврин, 1962), причём средние размеры варьируют как в отдельных кладках, так и географически с юга на север;
в Узбекистане 29,7-30,1 × 26-26,3 (n = 4), 31 × 28 мм (n = 59), 29,6-32,9 × 26,3-32,8 (в среднем 31,9 × 30,8) (Салихбаев и др., 1970; Абдурахманов, 1972; Сагитов и др., 1979).
Масса свежих яиц 9,5–10,3 грамма (n = 19), 10,9–12,6 (в среднем 11,9).
Насиживание начинается с первого яйца, реже после появления второго яйца. Насиживает только самка, к этому времени у неё развивается наседное пятно размером 45×25 мм. Сидит она на яйцах очень плотно, согнать её невозможно. При осмотре гнезда самка отодвигается в сторону, но не покидает дупло, рассерженно шипит и щёлкает клювом, позволяет дотрагиваться до себя, даже взять из-под себя яйца или птенцов. Самец приносит ей 6–15 раз за ночь пищу, вызывает свистом наружу и отдаёт. Днем он сидит по-соседству в кроне дерева или в другом дупле. По некоторым данным, он иногда находится в дупле на яйцах или обогревает птенцов на время отсутствия самки, покинувшей дупло для дефекации или приведения в порядок оперения. Такие данные приводятся и для птиц, размножающихся в неволе (Glutz von Blotzheim, Bauer, 1980). Окончательный ответ об участии самца в насиживании и обогревании яиц дать пока невозможно. В отдельных случаях поведение самца у гнезда отличается крайней агрессивностью по отношению к человеку, осматривающему дупло: он в сумерках нападает на него сзади, с силой бьёт когтями по голове (Кадочников, 1963). Интенсивность насиживания высокая: за 14 часов наблюдений самка сидела в гнезде 12 часов 30 минут, отсутствовала 1 час 30 минут, в период с 20 часов до 6 часов она выходила из дупла 4 раза по 2–3 минуты и получала корм от самца 14 раз (Абдурахманов, 1972).
Длительность инкубации 24–25 суток, реже 23–25 суток с момента откладки первого яйца (Кадочников, 1963, Салихбаев и др., 1970; Абдурахманов, 1972; Сагитов и др., 1979). В Западной Европе продолжительность инкубации составляет 20–31 сут, в среднем 24,4 ± 3,1 дней (Glutz von Blotzheim, Bauer, 1980). Усушка яиц за период инкубации составляет 19–23% (Сагитов я др., 1979). Птенцы рождаются асинхронно в течение 4–7 сут, разница в их размерах сохраняется вплоть, до вылета из гнезда. Масса однодневного птенца 8,0–10,3 грамма. После появления птенцов самка первые 7–10 дней практически не покидает дупло, обогревает их, самец кормит её и птенцов, приносит корм до 44 раз за ночь. Маленьких птенцов самка кормит из клюва и корм подаёт частями, птиц предварительно ощипывает от перьев. Птенцы сплюшки рождаются с закрытыми глазами и ушными проходами. Первые 1–3 дня они лежат пассивно на дне дупла, в возрасте 4–5 дней уже могут сидеть вертикально, опираясь на пяточную мозоль. С 7-дневного возраста они активно перемещаются в дупле, выпрашивают корм у родителей, громко верещат; с 10-дневного возраста выхватывают энергично из клюва самки мелких насекомых и проглатывают.
В 14-дневном возрасте они уже свободно ходят, активно выхватывают насекомых и глотают их целиком, пытаются самостоятельно разделывать более крупную добычу. Погадки они отрыгивают с 6—9-дневного возраста. С 18-дневнрго возраста птенцы начинают высовываться вечером в леток и оглядываются вокруг, в 21–25 дней они в сумерках покидают дупло, родители подлетают к летку и явно выманивают птенцов. К этому времени самка также активно подключается к добыче насекомых, охотится она в районе гнезда в радиусе 50–100 м (Терновский, Терновская, 1959; Кадочников, 1963; Пукинский, 1977). В окрестностях Алма-Аты при обилии насекомых оба родителя ловили их рядом с дуплом и приносили птенцам с интервалом 1–2 мин. Изобилие пищи явилось, по-видимому, причиной отсутствия разницы в размерах птенцов этого выводка (Зверев, Шнаревич, 1947). Вылетев из дупла, птенцы пролетают 4–5 м и садятся на ветки, цепляясь когтями, затем передвигаются по веткам. Уже на 2–3-ю ночь они удаляются от гнезда на 15–20 м. Родители продолжают их докармливать в течение 2–3 недель, после чего выводки распадаются (Кадочников, 1963). Развиваются птенцы сплюшки быстро. Уже на 4–5-й день у них образуются глазные щели, на 8-й. день глаза открываются полностью. Масса однодневного птенца составляет около 10 граммов, 7-дневного — 25–40, 14-дневного — 60–75, 21-дневного — 80–85 граммов. В первую неделю жизни они прибавляют в массе на 7–11 граммов ежедневно, позднее темпы роста замедляются. В день вылета птенцы сбавляют массу на 1,2–2,9 грамма. В процессе онтогенеза масса вырастает более чем в 10 раз. Выделяются несколько пиков интенсивного прироста массы: на 6-й и 12–15-й дни. На 6-й день прирост составляет 40 %, на 15-й — 6–7 %. Линейный прирост крыла на 3–4-й день жизни достигает 95 %, на 15-й день — 8–10 %, интенсивный прирост рулевых крыльев на 8–9-й день — 70–85 %, на 15-й — 8–12 %. Трубочки первостепенных маховых появляются на 3-й, а рулевых перьев — на 10-й день (Сагитов и др., 1979; Кучин, 1983). Вылет птенцов из разных гнёздах происходит на 21— 29-й день после вылупления и приходится на вторую половину июля в средней полосе Россия, кг конец июня — начало июля в южных областях Средней Азии.
В августе выводки распадаются и молодые сплюшки переходят к самостоятельному одиночному образу жизни. Запоздалые нераспавшиеся выводки были встречены в Белоруссии ещё 16 и 17 октября (Федюшин, Долбик, 1967), в Западной Сибири — 13 августа (Кучин, 1976; Гынгазов, Миловидов, 1977). Величина гнездовой смертности для территории Восточной Европы и Северной Азии не известна. В выводках 2–4, в среднем 3,3 слётка (n = 6), то есть постэмбриоиальная смертность составляет 15–20 % (Гаврин, 1962).
Ночная птица, днем прячется в гуще кустов или на ветвях у ствола дерева, при опасности вытягивается столбиком, поднимает «ушки» и становится удивительно похожа на обломанный засохший древесный сучок. Малоосторожна, доверчива по отношению к человеку, подпускает днем вплотную, когда её случайно встретишь в лесу. Днём видит также хорошо, как и в сумерках, в полной темноте не видит и натыкается в полёте на предметы. В вечерних сумерках летящая сплюшка напоминает крупную бабочку, летает бесшумно и маневренно, часто использует планирующий полет. Большую часть года молчалива. В брачный период издаёт громкий, немного грустный односложный свист «сплю—ю», монотонно повторяющийся в течение 10–30 мин. Этот же крик является и видовым, с помощью которого самец и самка поддерживают в паре связь между собой; самки кричат так исключительно редко. Соседние самцы весной подолгу перекликаются, меняя тональность песни.
Для этою вида характерно также парное, или антифональное, пение, когда два самца кричат одновременно и слаженно. Гораздо реже в разгар тока согласованным дуэтом поют самец и самка. У самки голос не такой звонкий, крик её как бы сдвоенный «сплю—голо». В целом песня-дуэт звучит следующим образом: «сплю — сплю — плю». Самец выкрикивает «сплю», а самка вторит грустным голосом «сплю — шпо». В пасмурную тёплую погоду весной самцы поют не только ночью, но и днем. Максимальная песенная активность отмечается в утренние и вечерние часы (Кадочников, 1963; Пукинский, 1977), При опасности, особенно у гнезда с птенцами, сплюшка издаёт верещащий крик, отдалённо напоминающий крик испуганной кошки. Ориентировочным криком является негромкое «чук — чук». Новорождённые птенцы слабо пищат «пи — пи — пи», а в возрасте 8–10 дней при выпрашивании корма громко верещат. Подросшие птенцы при опасности шипят и щёлкают клювом. Потревоженная на гнезде самка также шипит. В целом набор криков сплюшки необычайно широк, особенно за счёт изменения тональности криков, но изучены они недостаточно.
Гнездится одиночными парами. Вне периода размножения ведёт одиночный образ жизни. От других видов совок отличается полностью оперённой цевкой, но растущие на ней перья не заходят на основания пальцев. От ошейниковой совки отличается меньшими размерами и отсутствием светлого зашейка. От буланой совки, с которой встречается в общих местах, отличается более интенсивной окраской, иным строением крыла, гнездованием в горных, а не равнинных лесах. От уссурийской совки отличается также строением крыла, оперённой нижней частью цевки.
Для Otus scops pulchellus известны три зимних встречи на территорий Восточной Европы и Северной Азии: 10 февраля 1843 года самец добыт на Алтае в горах верховий Катуни (коллекция ЗИН РАК), одна птица добыта 18 декабря 1906 года в Джетысу Таласского Алатау (колл. ЗИН РАН), самец добыт в Таласском Алатау 3 февраля 1937 года (Ковшарь, 1966).
Область пролёта. В целом очень обширна, пролётные сплюшки встречаются в лесах повсеместно к югу от области гнездования, даже в безлесых пустынях и безлесых горных ущельях с зарослями кустарников. Летят также вдоль побережья и над островами Каспийского и Чёрного морей.
Миграции. Сезонные миграции обыкновенной сплюшки изучены совершенно недостаточно. По-видимому, птицы мигрируют широким фронтом в южном и юго-западном направлениях без отчётливо выраженных мест концентрации. Пролёт проходит только в тёмное время суток, на пролёте с плюшки держатся поодиночке, скрытно, наблюдаются относительно редко.
Осенью отлетает сравнительно рано: в Молдавии — в сентябре (предположения Остерман о её зимовке не подтвердились; Аверин, Ганя, 1970), в Белоруссии — в августе — начале сентября, в западных областях Украины — в сентябре (Страутман, 1963), в Крыму — в сентябре (самая поздняя встреча под Симферополем — 17 ноября; Костин, 1983), в лесной зоне России пролёт, идёт с конца августа (Зиновьев, 1980), на Кавказе отлетает в сентябре. На юге Западной Сибири у села Шегарка встречена 12 сентября, у Томска — 6–15 сентября, на Алтае у села Новенское — до 15 октября, в Горном Алтае — до конца августа (Кучин, 1976; Гынгазов, Миловидов, 1977). Из Казахстана отлетает в массе с середины августа до середины сентября, заканчивается пролёт в середине октября, он проходит незаметно и очень растянут (Сушкин, 1908; Гаврин, 1962). Под Алма-Атой тоже отлетает со второй половины августа, пик пролёта — с 25 сентября до 15 октября (Шнитников, 1949; Бородихин, 1968). В горах Таласского Алатау летит с 3–7 августа по 15 октября, пик в середине сентября (Ковшарь, 1966). В Таджикистане улетает на равнине с 21 августа по 4 октября, в горах — в сентябре — начале октября, встречается на пролёте на высотах 3 000 — 3 200 метров над уровнем моря на перевалах (Потапов, 1959; Попов, 1959; Иванов, 1969; Абдусалямов, 1971). В Узбекистане отлёт проходит в третьей декаде августа и заканчивается в конце сентября (Сагитов и др., 1979). Летит в ночное время поодиночке, очень редко небольшими группами (Гаврин, 1962; Мешков, Урядова, 1972).
Весной в южных районах Восточной Европы и Северной Азии появляется в начале — середине апреля: в Молдавии — с 3–20 апреля по 5 мая, в Крыму — в начале — середине апреля (самая ранняя встреча — 3 апреля), в Белоруссии — с 5–10 мая, на Кавказе — даже в конце марта (Жордания, 1962), в Подмосковье — в конце апреля — начале мая (Птушенко, Иноземцев, 1968), в Мордовии — 11–15 мая (Луговой, 1975), в Калининской (ныне Тверской) области — даже в конце мая — начале июня (Зиновьев, 1980). На юге Туркмении отмечена с 20–23 апреля, в один год даже 19 марта (Дементьев, 1952), в Киргизии — с 16 апреля, в Таджикистане — 4–10 апреля, обычно 18–20 апреля в горах и 9 марта — 16 апреля на равнине (Потапов, 1959; Абдусалямов, 1971).
В ущельях Каратау появляется в начале апреля, в массе в середине апреля, образование пар происходит в начале мая (Салихбаев и др., 1970). В Казахстане отмечена сравнительно поздно, когда распускается первая зелень и в массе встречаются насекомые: на юге — с 7 апреля (в среднем 23 апреля), в северных районах — в начале — середине мая, то есть сроки пролёта запаздывают на 1,5 месяца (Гаврин, 1962). Сроки весеннего прилёта под Алма-Атой в разные годы растянуты более чем на 45 дней (Шнитников, 1949; Бородихин, 1968) — с конца марта до начала мая. На равнинах и в долинах Алтая появляется в середине мая (16–18 мая), в горы проникает на 7–15 дней позднее (Кучин, 1976), у Омска встречена 24 апреля — 1 мая, у Томска — 4–12 мая (Гынгазов, Миловидов, 1977).
В 16-дневном возрасте рисунок мезоптиля приобретает характерный окончательный вид («ястребиная» окраска), в 18–19 дней уже оформляется лицевой диск. В возрасте 20–21 дня отрастают контурные перья и птенец становится похожим на взрослую птицу, отличаясь более короткими маховыми и рулевыми перьями (Кадочников, 1963). Мезоптиль сохраняется до августа и к вылету из гнезда заменяется телеоптилем. В августе телеоптиль заменяется на первый зимний наряд: меняются первостепенные Маховые, контурное перо, а рулевые, второстепенные маховые и часть плечевых перьев остаются до следующей полной годовой линьки. На зимовках у молодых птиц в возрасте 6 мес отрастают в течение 7 нед средние кроющие крыла, частично контурные перья на спине и брюхе и вибриссы у клюва (Glutz von Blotzheim, Bauer, 1980).
Полная годовая линька взрослых сплюшек начинается через 2–3 нед после вылупления птенцов: в конце июня — начале июля или даже в начале августа. На смену маховых и рулевых перьев уходит 52–55 дней, они меняются постепенно. Бурная линька происходит по окончанию размножения. Линька- крыльев идёт симметрично, реже асимметрично. Вначале выпадают I и II первостепенные маховые перья и по мере их отрастания последующие, перья в строгом порядке, X меняется через 52–55 дней после выпадения; I. Через 1–3 дня после выпадения I первостепенного махового пера начинается линька второстепенных маховых, также с первого пера; к выпадению III–V маховых перьев приурочено начало линьки рулевых перьев. Наседное пятно у самки, достигающее размеров 6 см, зарастает через несколько дней после вылупления птенцов. На период миграции линька прерывается, обычно на стадии смены III–VII первостепенных маховых, и заканчивается на зимовках в январе — феврале. Контурное перо также интенсивно меняется, начиная с головы и груди, ещё в гнездовой области и заканчивается на зимовках (Пукинский, 1977; Хроков, Кошелев, 1985; Glutz von Blotzheim, Bauer, 1980). Окончательный зимний период является одновременно и брачным нарядом.
Подробнее о сокращениях можно прочесть здесь.
Песня
…
Позывка
…
Электроманок
…
Литература
• «Птицы Советского Союза». Дементьев Г.П., Гладков Н.А., Исаков Ю.А., Карташев Н.Н., Кириков С.В., Михеев А.В., Птушенко Е.С. Под общей редакцией Г.П. Дементьева и Н.А. Гладкова. Изд. «Советская наука» Москва. 1952 г. том 4. стр. .
Литература
• Коблик Е.А. 2025. Фауна птиц стран Северной Евразии в границах бывшего СССР: Списки видов.
• IOC World Bird List v15.2 (Updated April 13, 2026) by Frank Gill, David Donsker & Pamela Rasmussen.
• Н.Н. Балацкий. Птицы Северной Евразии. Таксономический список: август 2023 г.
• «Птицы России и сопредельных регионов: Рябкообразные, Голубеобразные. Кукушкообразные, Совообразные». т.5. Гаврилов Э.И., Иванчев В.П., Котов А.А. и др. Москва. Издательство «Наука», 1993 г. стр. 325-340.
Сайты
• zmmu.msu.ru
• www.balatsky.ru
• www.worldbirdnames.org
• сайт Василия Вишневского
• www.xeno-canto.org
• www.featherbase.info, www.pbase.com, www.macaulaylibrary.org